

MiR-103a-3p Im lặng cải thiện sự lắng đọng canxi oxalate trong thận chuột bằng cách kích hoạt trục UMOD/TRPV5
Jul 22, 2024
2.10. Phân tích tin sinh học và xét nghiệm Luciferase.
UMOD-việc nhắm mục tiêu miRNA, miR-103a-3p, đã được phân tích theo dự đoán bởiTrang web TargetScan(http://www.targetscan.org/vert_71/)và sau đó được xác nhận thông qua xét nghiệm luciferase. điều khiển pGL3-vectơ (E1741) được mua từ Promega (Mỹ) choxây dựng kiểu UMOD hoang dã (UMOD-WT, 5′-AGCCUGUGUCUUUAAAUGCUGCU-3′) và kiểu đột biếncủa UMOD (UMOD-MUT, 5′-AGCCUGUGUCUUUAAAUGAUCCU-3′). NRK-52Các tế bào E đã được đồng truyền bằngmiR-103a-3p bắt chước và UMOD-WT hoặc miR-103a-3pbắt chước và UMOD-MUT với sự trợ giúp của Lipofectamine2000. Quy trình tương tự được thực hiện trong mô phỏngđiều khiển (vectơ pRL-TK, VT1568, YouBio, Trung Quốc). Sau đórằng, chúng tôi đã xác định hoạt động luciferase trong tế bào bằng cách sử dụngBộ xét nghiệm báo cáo Dual-Luciferase (E1910, Promega, USA).2.11. Thành lập mô hình tăng oxy máu ở Vivo.Đối vớitrong cơ thể sốngnghiên cứu, chúng tôi đã thiết lập mô hình chuột tăng oxalat niệubằng cách thêm 1% ethylene glycol (EG) (324558, Sigma-Aldrich,Mỹ) vào nước uống. Thí nghiệm trên động vật đãđược phê duyệt bởi Ủy ban Động vật Thí nghiệm của TheThứ ba AffiBệnh viện Đại học Y Tân Hương(IHRM20200510). Tổng cộng có 40 nam Sprague Dawley (SD)chuột (8 tuần tuổi, 180–210 g) mua từ sông CharlesCác phòng thí nghiệm (Bắc Kinh, Trung Quốc) đã được sử dụng trongtrong cơ thể sốnghọc. Tất cảchuột được chia thành 4 nhóm đối chứng, EG, EG + antagomir và EG + antagomir-NC, với mười con chuột trong mỗi nhóm.Trong thời gian nuôi ở nhóm đối chứng, chuột chỉ được cung cấpbằng nước máy; trong nhóm EG, chuột được điều trịvới 1% EG; trong nhóm antagomir EG +, chuột đượcđược điều trị bằng 1% EG và tiêm tĩnh mạch miR-103a-3p antagomir; và trong nhóm EG + antagomir-NC,chuột được điều trị bằng 1% EG và tiêm tĩnh mạchvới miR-103a-3p antagomir-NC. Sau 4 tuần, tất cả chuộtđã hy sinhfiđược phẫu thuật do trật khớp cổ tử cung dưới gây mê(natri pentobarbital, 40 mg/kg, P-010, Merck, USA) vàcác mô thận được thu thập để nghiên cứu mô học. cácchất đối kháng miR-103a-3p được sử dụng trong thí nghiệm này làthu được từ Ribobio (Quảng Châu, Trung Quốc).

CÔNG THỨC THẢO DƯỢC MỚI CHOVẤN ĐỀ THẬN
2.12. Nhuộm Hematoxylin-Eosin (HE).
Các mô thận được cố định bằng formalin được nhúng vào parafin để đánh giá sự lắng đọng CaOx. Các mẫu đã cắt được khử sáp và ngậm nước trước khi nhuộm HE. Sau đó, Bộ nhuộm HE (C{6}}105S, Beyotime, Trung Quốc) được sử dụng để xử lý các mẫu được hướng dẫn vận hành. Sau khi niêm phong các mô, vùng lắng đọng tinh thể được quan sát dưới kính hiển vi phân cực (Axio Scope.A1, Dụng cụ chính xác, Trung Quốc) ở độ phóng đại × 100 và được định lượng bằng ImageJ (tầm nhìn 1.8.0, Viện Y tế Quốc gia, Hoa Kỳ).

Hình 5: Tiếp theo.
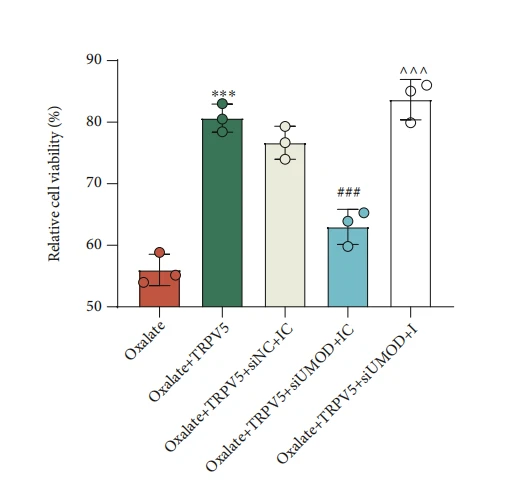
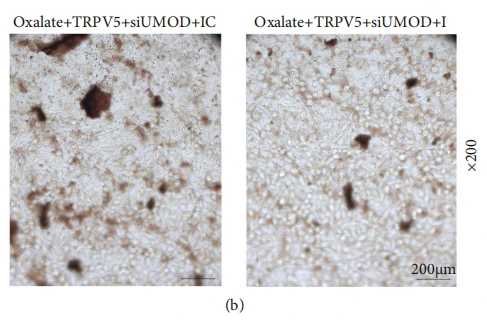
Hình 5: Quá trình im lặng miR-103a-3p đã kích hoạt trục UMOD/TRPV5 để làm suy giảm các tế bào NRK-52E khỏi tổn thương do oxalate gây ra. (a) Đã xác định được tác dụng của chất ức chế miR-103a-3p đối với khả năng sống sót của tế bào trong các tế bào NRK-52E được xử lý bằng oxalate, TRPV5-biểu hiện quá mức plasmid và siUMD bằng xét nghiệm MTT. (b) Xét nghiệm độ bám dính của tế bào tinh thể được sử dụng để định lượng sự lắng đọng CaOx trong các ô được chỉ định (độ phóng đại × 200, thanh tỷ lệ=200 μm). (c) Bộ công cụ Fluo{12}} AM đã phân tích phép đo hàm lượng Ca2+ trong các nhóm khác nhau. ∗∗∗p < 0:001 so với oxalate; ###p < 0:001 so với oxalate + TRPV5 + siNC + IC; ∧∧p < 0:01 và ∧∧∧p < 0:001 so với oxalate + TRPV5 + siUMOD + IC. TRPV5: phân nhóm kênh cation tiềm năng thụ thể tạm thời V thành viên 5; UMOD: uromodulin; MTT: metyl thiazolyl diphenyl-tetrazolium bromua; NC: đối chứng âm; siUMOD: RNA can thiệp nhỏ chống lại UMOD; Tôi: chất ức chế; IC: kiểm soát chất ức chế.
2.13. Hóa mô miễn dịch (IHC).
Để nghiên cứu sự phân bố TRPV5 trong các mô thận, chúng tôi đã sử dụng Bộ hóa mô miễn dịch nhanh và nhạy cảm cao Super Plus™ (E-IR R221, Elabscience, Trung Quốc) để tiến hành IHC. Nói tóm lại, các phần thận (4 μm) được xử lý bằng Bộ đệm thu hồi Dewaxing/Kháng nguyên trong 30 phút khi đun nóng và sau đó được ủ với Bộ đệm chặn Peroxidase SP Reagent B ở nhiệt độ phòng trong 15 phút. Sau khi rửa PBS, các phần được phản ứng với kháng thể kháng TRPV5 (ab137028, 1/100, Abcam, UK) ở 37 độ C trong 2 giờ, sau đó là ủ kháng thể thứ cấp. Sau đó, các phần này được yêu cầu phát triển màu sắc trong dung dịch làm việc DAB và nhuộm màu trong dung dịch đệm hematoxylin. Sau khi xử lý lại, hình ảnh nhuộm màu được chụp bằng kính hiển vi (CX23, Olympus, Nhật Bản) ở độ phóng đại × 100.
2.14. Phân tích thống kê.
Tất cả các thí nghiệm được lặp lại ba lần riêng lẻ, với dữ liệu đo được mô tả là độ lệch chuẩn trung bình ±. Sự khác biệt so sánh giữa nhiều nhóm được phân tích bằng phân tích phương sai một chiều. GraphPad Prism 8.0 (GraphPad Software, USA) đã được sử dụng để phân tích dữ liệu và giá trị p < 0.05 cho thấy sự khác biệt có ý nghĩa thống kê.

CÔNG THỨC THẢO DƯỢC MỚI CHOVẤN ĐỀ THẬN
3. Kết quả
3.1. Tái điều chỉnh TRPV5
Các tế bào NRK{0}}E được bảo vệ khỏiChấn thương do oxalate gây ra. Dựa trên vai trò then chốt của TRPV5 trong việc điều hòa vận chuyển Ca2+ trongtế bào ống thận, lần đầu tiên chúng tôi thực hiện biểu hiện quá mức TRPV5 trong các ô E NRK-52. Như được minh họa trong Hình 1(a), qRT-PCR đã phát hiện sự gia tăng đáng kể về mức độ mRNA TRPV5 (p < 0:001). Western blot cũng đã đo hàm lượng protein TRPV5 cao trong các tế bào được chuyển hóa (Hình 1(b), p < 0:001). Sau khi xử lý bằng oxalate trong các tế bào E NRK-52, chúng tôi nhận thấy rằng sự biểu hiện của TRPV5 đã được điều chỉnh giảm so với nhóm đối chứng, điều này đã bị đảo ngược bằng cách truyền TRPV5-biểu hiện quá mức plasmid (Hình 1(c), p < 0:001). Ngoài ra, việc phát hiện Western blot cho kết quả tương tự (Hình 1(d), p < 0:001). Xét nghiệm MTT sau đây chỉ ra rằng sự tham gia của oxalate và khả năng sống sót của tế bào, đã bị đảo ngược một phần saubiểu hiện quá mức TRPV5(Hình 1(e), p < 0:05). Việc phát hiện độ bám dính của tinh thể cho thấybiểu hiện quá mức TRPV5ức chế đáng kể độ bám dính của CaOx do oxalate tạo ra trong tế bào E NRK-52 (Hình 1(f)).
 .

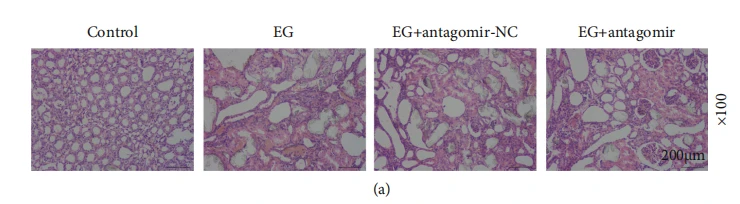
Hình 6: miR-103a-3p làm im lặng giảm thiểu sự lắng đọng CaOx do EG gây ra trong các mô thận in vivo bằng cách kích hoạt trục UMOD/TRPV5. (a, b) Sự lắng đọng CaOx được đo bằng phương pháp nhuộm H&E trong mô thận của chuột được điều trị bằng EG hoặc EG và miR-103a-3p antagomir (×100 độ phóng đại, thanh tỷ lệ=200 μm). (c) Western blot được sử dụng để đo nồng độ protein UMOD và TRPV5 trong mô thận của chuột được điều trị bằng EG hoặc EG và miR{{10}}a-3p antagomir. -Actin đóng vai trò kiểm soát nội bộ. ( d ) Phân tích IHC về biểu hiện TRPV5 được thực hiện trong các mô của các nhóm khác nhau (độ phóng đại × 100, thanh tỷ lệ=200 μm). ∗∗∗p < 0:001 so với kiểm soát; #p < 0:05, ###p < 0:001 so với EG + antagomir-NC. HE: hematoxylin và eosin EG, ethylene glycol; TRPV5: phân nhóm kênh cation tiềm năng thụ thể tạm thời V thành viên 5; UMOD: uromodulin; NC: đối chứng âm; IHC: hóa mô miễn dịch

3.2. Cảm ứng oxalat
Biểu hiện UMOD được điều hòa giảm có liên quan tích cực đến sự phong phú của TRPV5 trên bề mặt tế bào. Biểu hiện mRNA của UMOD được phát hiện là bị điều hòa quá mức trong các tế bào E NRK-52được tạo ra bởi oxalate (Hình 2(a), p < 0:001), cũng như mức protein của nó (Hình 2(b), p < 0:01). Kết quả của CoIP đã xác minh rằng UMOD được kết tủa đồng miễn dịch đáng kể bởi TRPV5 được gắn cờ và ngược lại, TRPV5 bị kết tủa đồng miễn dịch bởi chất chống UMOD (Hình 2(c)). Tiếp theo, chúng tôi điều chỉnh lại biểu hiện UMOD trong các tế bào NRK{15}}E đã được xác minh bằng qRT-PCR và Western blot. Mức độ biểu hiện UMOD tăng đáng kể được xác định trong mRNA (Hình 2(d), p < 0:001) và mức protein (Hình 2(e), p < 0:001) biểu thị quá trình chuyển đổi thành công. Hơn nữa, kết quả của xét nghiệm phản ứng biotin hóa bề mặt tế bào cho thấy TRPV5 có rất nhiều trên bề mặt của các tế bào E NRK{25}} được bảo vệ bằng sự biểu hiện quá mức của UMOD và TRPV5, so với đối chứng âm tính của nó (Hình 3(a)).
3.3. UMOD
Quy định vai trò bảo vệ của TRPV5 trong các tế bào được tạo ra bởi oxalate. (Hình 3(a)). Để làm sáng tỏ mối tương tác giữa UMOD và TRPV5 trong các tế bào E NRK-52 do oxalate gây ra, chúng tôi đã tiến hành chuyển đổi siUMOD. QRT PCR xác định rằng UMOD mRNA được biểu hiện ở mức độ thấp trong các tế bào được chuyển hóa siUMOD (Hình 3(b), p < 0:001) và kết quả tương tự trong mức protein của nó được đo bằng Western blot (Hình 3(c), p < 0:001). Sau đó, các thử nghiệm về độ bám dính của MTT và tinh thể đã chứng minh rằng siUMOD bù đắp đáng kể tác dụng thúc đẩy của TRPV5 đối với khả năng sống của tế bào (Hình 3(d), p < 0:01) và tác dụng ức chế của TRPV5 đối với độ bám dính của CaOx (Hình 3(e)) trong các tế bào E NRK-52được tạo ra bởi oxalate. Ngoài ra, chúng tôi còn đo hàm lượng Ca2+ sau khi chuyển đổi khác nhau. Như các kết quả được mô tả trong Hình 3(f), TRPV5 đã hạn chế rõ rệt sự giảm oxalate gây ra nồng độ Ca2+ nội bào của các tế bào NRK-52E, được phục hồi một phần khi bổ sung Simon (p < 0: 001).
3.4. miR-103a-3p
UMOD được nhắm mục tiêu và được điều hòa trong Quy định của Trục UMOD/TRPV5 trong các tế bào được tạo ra bởi oxalate. Với sự hỗ trợ của trang web TargetScan, kết quả dự đoán gen cho thấy miR-103a-3p có thể chứa các trang web liên kết với UMOD (Hình 4(a)). Sau đó, xét nghiệm luciferase đã phát hiện hoạt động luciferase bị ức chế trong các tế bào được đồng chuyển hóa bằng miR-103a-3p bắt chước và UMOD WT (Hình 4(b), p < 0:{{21 }}01). Để hiểu rõ tác dụng điều chỉnh của miR{{10}}a-3p trên UMOD, chúng tôi đã triển khai sự ức chế miR- 103a-3p trong NRK{{14} }Tế bào E, với khả năng phát hiện qRT-PCR xác nhận rằng biểu hiện của miR-103a-3p đã được điều hòa giảm mạnh sau khi chuyển chất ức chế miR- 103a-3p ( Hình 4(c), p < 0:001). Điều thú vị là, biểu hiện mRNA của UMOD đã được chứng minh là tăng lên sau khi ức chế miR-103a{24}}p, điều này đã bị đảo ngược rõ ràng khi bổ sung chế độ im lặng UMOD (Hình 4(d), p < 0:01 ). Bằng cách phát hiện Western blot, người ta thấy sự thay đổi biểu hiện protein UMOD giống như những thay đổi xảy ra trong biểu hiện UMOD mRNA (Hình 4(e), p < 0:01). Hơn nữa, chúng tôi đã tiến hành các thí nghiệm giải cứu liên quan đến chức năng của tế bào. Như đã chứng minh, vai trò điều chỉnh của trục UMOD/TRPV5 đối với khả năng tồn tại của tế bào (Hình 5(a), p < 0:001), độ bám dính CaOx (Hình 5(b)) và nồng độ Ca2+ nội bào (Hình 5(c), p < 0:01) đã bị đảo ngược đáng kể bởi chất ức chế miR- 103a-3p.
3.5. miR-103a-3p
Làm im lặng sự lắng đọng CaOx được giảm nhẹ do EG gây ra trong các mô thận ở cơ thể sống bằng cách kích hoạt Trục UMOD/TRPV5. Để củng cố hơn nữa những phát hiện của chúng tôi trong ống nghiệm, chúng tôi đã xây dựng mô hình chuột tăng oxy máu cho nghiên cứu in vivo. Như được minh họa trong Hình 6(a) và 6(b), sự lắng đọng đáng kể của tinh thể CaOx trong các mô thận của nhóm EG đã được quan sát so với nhóm đối chứng và xu hướng này bị đảo ngược bởi miR-103a{{ 5}}p Santiagomir (p < 0:001). Sau đó, kết quả của Western blot chỉ ra rằng EG đã điều hòa giảm mạnh cả mức protein UMOD và TRPV5, được phục hồi rõ rệt nhờ miR-103a- 3p antagomir (Hình 6(c), p < 0:05 ). Bằng IHC, chúng tôi nhận thấy rằng biểu hiện TRPV5 đã được điều chỉnh giảm trong nhóm EG so với nhóm đối chứng và nó được điều chỉnh tăng trong nhóm antagomir EG + so với nhóm EG + antagomir-NC (Hình 6(d)).
4. Thảo luận
Trong bối cảnh các phương pháp điều trị phẫu thuật chống sỏi thận ngày càng đa dạng, điều cần được nhấn mạnh nằm ở các phương pháp nổi bật để ngăn ngừa sự xuất hiện và tái phát của chúng [27]. Thành phần phổ biến nhất của sỏi thận là tinh thể CaOx. Nhiều yếu tố ảnh hưởng đến sự phát triển của sỏi thận chứa Ca2+-, trong đó chứng tăng sỏi niệu cho đến nay là yếu tố nguy cơ chính được công nhận [28]. Tsuruoka và cộng sự. đã chứng minh rằng thông qua ống thận, việc giảm tái hấp thu Ca2+ là công cụ gây ra tình trạng tăng canxi niệu và việc tái hấp thu canxi tích cực có thể được điều chỉnh bởi nhiều yếu tố khác nhau [29]. Sau đó, Worcester và cộng sự. đề xuất rằng nồng độ Ca2+ trong nước tiểu sau bữa ăn cao hơn rõ rệt ở những bệnh nhân bị tăng canxi niệu so với nhóm chứng, ngay cả khi sự tiết hormone tuyến cận giáp trong máu và tải lượng thận ở cùng mức [30]. Nói chung, người ta lưu ý rằng sự suy giảm tái hấp thu ở ống thận có thể là nguyên nhân hàng đầu gây tăng canxi niệu. Do đó, nghiên cứu này đã khám phá cơ chế phân tử cơ bản điều chỉnh nồng độ Ca2+ trong nước tiểu từ góc độ tái hấp thu Ca2+, nhằm tạo ra các kênh quan trọng nhằm ngăn ngừa và điều trị sỏi thận.
TRPV5 hoạt động như một kênh Ca2+ của biểu mô ống thận làm trung gian vận chuyển và tái hấp thu Ca2+ ở thận [31]. Jang và cộng sự. chỉ ra rằng biểu hiện protein TRPV5 đã được điều hòa quá mức trong các mô thận của chuột uric tăng canxi máu nhưng đã được phục hồi bằng cách sử dụng hydrochlorothiazide, cho thấy rằng cơ chế điều trị tăng canxi niệu bằng hydrochlorothiazide có thể đạt được thông qua việc điều chỉnh tăng biểu hiện protein TRPV5 trong các mô thận [32]. Các nghiên cứu đã xác nhận rằng lượng oxal niệu cao gây ra sự sản sinh các loại oxy phản ứng (ROS), làm tổn thương các tế bào biểu mô ống thận và làm thay đổi cấu trúc của phosphatidylserine trong màng tế bào, dẫn đến sự kết dính của CaOx với bề mặt tế bào biểu mô ống thận [33]. Trong nghiên cứu trước đây, chúng tôi đã phát hiện ra rằng TRPV5 được điều hòa giảm đáng kể xuất hiện sau khi gây ra tổn thương tế bào NRK-52E do oxalate, xu hướng này đã bị đảo ngược sau khi truyền biểu hiện quá mức TRPV5. Ngoài ra, việc điều hòa tăng TRPV5 đã tăng cường khả năng sống sót của tế bào và ức chế sự kết dính CaOx trong các tế bào E NRK-52 gây ra bởi oxa muộn, cho thấy rằng TRPV5 tạo ra tác dụng phòng ngừa quan trọng đối với sự hình thành sỏi CaOx do oxalate gây ra ở thận.

CISTANCHE ĐỂ TĂNG CƯỜNG CANXI OXALATE
Là kênh chính để tái hấp thu Ca2+, hoạt động và biểu hiện của TRPV5 có thể được điều chỉnh bởi nhiều yếu tố [34]. Ví dụ, một nghiên cứu gần đây đã xác nhận rằng UMOD ngăn ngừa sự hình thành sỏi thận bằng cách kích thích tái hấp thu Ca2+ thông qua TRPV5 [35]. Hơn nữa, cần lưu ý rằng 87,5% số chuột bị loại bỏ UMOD đã hình thành sỏi canxi oxalate và canxi photphat trong CNT, tủy thận và nhú khi được 15 tháng tuổi. Tất cả những phát hiện này cho thấy UMOD có thể tương tác với TRPV5 trong việc hình thành sỏi thận, hiện tượng này vẫn chưa được xác định rõ ràng. Tuy nhiên, nghiên cứu của chúng tôi lần đầu tiên xác định được sự tồn tại của sự tương tác mà UMOD điều chỉnh tích cực hoạt động biểu hiện TRPV5 trong các tế bào NRK{11}}E bị tổn thương bằng cách tăng cường khả năng tồn tại của tế bào, giảm độ bám dính CaOx và tăng cường tái hấp thu Ca{{12} }.
miRNA có liên quan đến sự phát triển và tiến triển của bệnh thận thông qua việc điều chỉnh các mRNA có mục tiêu. miR-21 được phát hiện là góp phần gây tổn thương tế bào ống thận do oxalate gây ra bằng cách điều chỉnh tăng PPARA [36]. Ngoài ra, Jiang và cộng sự. báo cáo rằng việc ức chế miR-155-5p để điều chỉnh tăng biểu hiện MGP có thể làm giảm đáng kể tổn thương do stress oxy hóa do oxalate gây ra ở thận [37]. Tuy nhiên, một số nghiên cứu đã được dành cho việc xác định cơ chế điều chỉnh miRNA trên UMOD ảnh hưởng đến sự hình thành sỏi thận. Để hiểu rõ hơn về cơ chế bệnh sinh của căn bệnh này, nghiên cứu này đã sử dụng phân tích tin sinh học và xét nghiệm luciferase để tìm ra miRNA, miR-103a-3p, có khả năng điều chỉnh UMOD. Trong nghiên cứu về bệnh thận, chu kỳ miR-103a{9}}p đã được xác nhận là có tác động sâu sắc đến tình trạng viêm và xơ hóa thận [38]. Peters và cộng sự. cũng gợi ý rằng miR-103a-3p có thể được coi là một dấu ấn sinh học tiềm năng trong bệnh thận mãn tính [39]. Thật thú vị, trong nghiên cứu của chúng tôi, chúng tôi đã xác minh cơ chế phân tử của miR-103a-3p trong sỏi thận mà việc làm im lặng miR- 103a-3p có thể làm giảm tổn thương do oxalate gây ra trong NRK-52tế bào E bằng cách kích hoạt trục UMOD/TRPV5. Hơn nữa, chúng tôi đã chứng minh cơ chế điều tiết này thậm chí còn mạnh mẽ hơn thông qua các thí nghiệm in vivo trên mô hình chuột do EG gây ra. Tuy nhiên, nghiên cứu này thiếu sự cân nhắc vì nó liên quan đến một loại tế bào duy nhất và một số lượng tương đối nhỏ các biến nghiên cứu trong các thí nghiệm in vitro.

CISTANCHE ĐỂ TĂNG CƯỜNG CANXI OXALATE
5. Kết luận
Nhìn chung, nghiên cứu hiện tại của chúng tôi đã làm sáng tỏ rằng quá trình im lặng miR-103a-3p cải thiện sự lắng đọng CaOx trong thận chuột bằng cách kích hoạt trục UMOD/TRPV5, trục này đặt nền tảng lý thuyết mới cho các chiến lược phòng ngừa, chẩn đoán và điều trị hướng tới sỏi thận từ góc độ tái hấp thu Ca2+.
Tính sẵn có của dữ liệu Các bộ dữ liệu được phân tích được tạo ra trong quá trình nghiên cứu có sẵn từ tác giả tương ứng theo yêu cầu hợp lý.
Xung đột lợi ích Các tác giả tuyên bố rằng không có xung đột lợi ích liên quan đến việc xuất bản bài viết này.
Tài liệu tham khảo
[1] RE Hautmann và M. Straub, "Sỏi tiết niệu. Chuyển hóa và chẩn đoán," Urologe A, tập. 45, không. 4, trang 181–184, 2006. [2] Z. Kirkali, R. Rasooly, RA Star, và GP Rodgers, "Bệnh sỏi tiết niệu: tiến triển, tình trạng và nhu cầu," Tiết niệu, tập. 86, không. 4, trang 651–653, 2015.
[3] AL Rodgers, "Chủng tộc, sắc tộc và sỏi tiết niệu: một đánh giá quan trọng," Sỏi tiết niệu, tập. 41, không. 2, trang 99–103, 2013.
[4] K. Sakhaee, "Những tiến bộ gần đây trong sinh lý bệnh của bệnh sỏi thận," Kidney International, tập. 75, không. 6, trang 585–595, 2009.
[5] T. Knoll, AB Schubert, D. Fahlenkamp, DB Leusmann, G. Wendt-Nordahl và G. Schubert, "Sỏi tiết niệu qua các thời đại: dữ liệu trên hơn 200,000 phân tích sỏi tiết niệu," Tạp chí tiết niệu, tập. 185, không. 4, trang 1304–1311, 2011. [6] T. Mitchell, P. Kumar, T. Reddy, và cộng sự, "Chế độ ăn uống oxalate và hình thành sỏi thận," Tạp chí Sinh lý học Hoa Kỳ. Sinh lý thận, tập. 316, không. 3, trang F409–f413, 2019. [7] SR Khan, MS Pearle, WG Robertson, và những người khác, "Sỏi thận", Nature Reviews. Mồi bệnh, tập. 2, không. 1, tr. 16008, 2016.
[8] CY Pak, HJ Heller, MS Pearle, CV Odvina, JR Poindexter và RD Peterson, "Ngăn ngừa hình thành sỏi và mất xương trong chứng tăng canxi niệu hấp thụ bằng các biện pháp can thiệp kết hợp giữa chế độ ăn uống và dược lý", Tạp chí Tiết niệu, tập. 169, không. 2, trang 465–469, 2003.
[9] GC Curhan, WC Willett, EL Knight và MJ Stampfer, "Các yếu tố về chế độ ăn uống và nguy cơ mắc bệnh sỏi thận ở phụ nữ trẻ: nghiên cứu sức khỏe của y tá II", Archives of Internal Medicine, tập. 164, không. 8, trang 885–891, 2004.
[10] MC Nirumand, M. Hajialyani, R. Rahimi, và những người khác, "Thực vật trong chế độ ăn uống để ngăn ngừa và kiểm soát sỏi thận: bằng chứng lâm sàng và tiền lâm sàng cũng như cơ chế phân tử", Tạp chí Khoa học Phân tử Quốc tế, tập. 19, không. 3, tr. 765, 2018.


