Tinh dầu có chứa citral là chất ức chế tyrosinase tiềm năng: Phương pháp tiếp cận phân đoạn có hướng dẫn sinh học
Mar 19, 2022
Liên hệ: Audrey Hu Whatsapp / hp: 0086 13880143964 Email:audrey.hu@wecistanche.com
Trừu tượng:
Sản xuất melanin quá mức gây ra các tình trạng da liễu nghiêm trọng cũng như các vấn đề về thẩm mỹ (ví dụ như tàn nhang và nám da mặt). Quá trình điều hòa tyrosinase được phổ biến rộng rãi để điều trị các chứng rối loạn như vậy, và các chất chiết xuất từ thực vật thường được chứng minh là nguồn có giá trị củatyrosinasechất ức chế. Citral (một hỗn hợp của neral và geranial) là một chất tạo mùi thơm quan trọng đã cho thấy khả năng chống lại tyrosinase. Nó tập trung nhiều trong tinh dầu (EO) của Cymbopogon schoenanthus (L.) Spreng., Litsea cubeba (Lour.) Pers., Melissa officinalis L., và Verbenaofficinalis L. Tuy nhiên, chỉ L. cubeba EO mới được nghiên cứu về sử dụng như một chất làm trắng da tiềm năng. Công việc này đánh giá ống nghiệmtyrosinasehoạt động ức chế của các EO này và các nghiên cứu, sử dụng phân đoạn theo định hướng xét nghiệmbio, liệu các thành phần hóa học khác nhau của chúng có ảnh hưởng đến các hoạt động ức chế tổng thể của chúng thông qua các tương tác hiệp đồng, phụ gia và / hoặc cạnh tranh có thể có giữa các thành phần củaEO hay không. Hoạt động ức chế của C. schoenanthus EO và của M. officinalis EO, với lượng không đủ điều kiện (cộng) -citronellal, phù hợp với hàm lượng citral của chúng. Mặt khác, L. cubebaand V. officinalis EOs ức chếtyrosinaseở phạm vi lớn hơn đáng kể vì chúng chứa -myrcene, đóng góp vào các hoạt động EO nói chung. Các quan sát tương tự cũng được thực hiện đối với M. officinalis EO, mang hàm lượng cao (cộng thêm) -citronellal làm tăng hoạt động của citral.
Từ khóa:tyrosinaseức chế; tinh dầu; citral

cistanche có chức năng làm trắng
Giới thiệu
Tyrosinaselà enzym quan trọng trong quá trình sinh tổng hợp các sắc tố melanin ở một số vi khuẩn, nấm, thực vật, động vật và người. Ở người, tyrosinase xúc tác các bước giới hạn tốc độ trong quá trình sinh tổng hợp melanin. Quá trình sinh tổng hợp này được đặc trưng bởi một số phản ứng hóa học và enzym dẫn đến sự hình thành melanin từ axit theamino L-tyrosine, với tyrosinase xúc tác quá trình hydroxyl hóa của nó thành o-dopaquinone thông qua các hoạt động mycophenolate và diphenol. Mặc dù có các enzym khác tham gia vào quá trình hình thành hắc tố, nhưng chỉ các phản ứng do tyrosinase xúc tác không thể xảy ra một cách tự phát, trong khi các bước còn lại có thể tiến hành mà không cần hoạt động của enzym ở pH sinh lý [1]. sản xuất và sử dụng các chất ức chế tyrosinase làm thuốc làm trắng da đã chứng tỏ sự nổi bật đáng kể về mặt lâm sàng và mỹ phẩm [2].
Tại thị trường EU,tyrosinaseCác chất ức chế được sử dụng làm chất làm trắng da có thể được nhóm lại thành hai loại chính: những chất bị cấm theo quy định mỹ phẩm của EU1223 / 2009 (tức là hydroquinone và mono benzyl ether hydroquinone) do tác dụng của chúng, nhưng chúng vẫn được sử dụng để điều trị chứng tăng sắc tố trong y tế giám sát; và các chất ức chế tyrosinase được phép sử dụng trong các sản phẩm mỹ phẩm (ví dụ: arbutin, aloesin, axit kojic) [2,3]. Tuy nhiên, nhóm thứ hai này vẫn được đặc trưng bởi các tác dụng phụ đáng kể; các nghiên cứu lâm sàng về axit kojic đã thực sự làm nổi bật các trường hợp ban đỏ, cảm giác châm chích và chàm tiếp xúc sau khi thoa. Tương tự, Ủy ban Khoa học Châu Âu về An toàn Người tiêu dùng đã đưa ra những lo ngại về việc sử dụng arbutinas một thành phần mỹ phẩm [2], do khả năng thủy phân liên kết glycosidic của nó làm giảm hydroquinone. Do đó, nhu cầu về các mẫu phân tử mới và / hoặc hỗn hợp các hợp chất hoạt tính sinh học để điều trị chứng tăng sắc tố.
Thực vật là nguồn cung cấp chất làm trắng da có giá trị và ba trong số năm chất được sử dụng nhiều nhất, cả về mặt y tế và mỹ phẩm, là các chất chuyển hóa chuyên biệt của thực vật (tức là hydroquinone, -arbutin, aloesin). Cho đến nay, các hợp chất phenolic chủ yếu được nghiên cứu là có tiềm năngtyrosinasechất ức chế, và những chất này bao gồm flavonoid (ví dụ, quercetin [4]), stilbenes (ví dụ, resveratrol [1]), phenylpropanoid (ví dụ, cinnamaldehyde [5], và eugenol [6]), và axit phenolic (ví dụ, axit anisic và axit benzoic [7]). Sự quan tâm đối với forterpenoids đã thấp hơn đáng kể và chúng tương đối được nghiên cứu như những tác nhân chống tyrosinase.
Citral là một trong số ít các dẫn xuất terpenoid có đặc tính chống tyrosinase đã được nghiên cứu. Nó là hỗn hợp của hai đồng phân, cis- và trans -3, 7- dimethyl -2, 6- octadienal (tức là neral và geranial), đã được chứng minh là có thể chặn hoạt tính enzym trong ống nghiệm của nấmtyrosinase[số 8]. Ngoài tầm quan trọng của nó như một thành phần có mùi trong đồ uống, thực phẩm và mỹ phẩm, citral đã cho thấy các hoạt động sinh học trong ống nghiệm đầy hứa hẹn bao gồm các tác dụng chống nấm, chống vi khuẩn, chống oxy hóa và chống viêm [9-11]. nhấn mạnh rằng citral có ý nghĩa điều trị tiềm năng như một chất giãn cơ trơn và gây tê cục bộ, vì nó thúc đẩy sự thư giãn ở các cơ trơn khí quản, tử cung và động mạch chủ và ức chế sự hưng phấn thần kinh ở các mô hình động vật [12–15].
Citral thu được từ tinh dầu (EOs) của một số loài thực vật, bao gồm Cymbopogon schoenanthus (L.) Spreng., Litsea cubeba (Lour.) Pers., Melissa officinalis L., và Verbena officinalis L. kiến thức, chỉ L. cubeba EO đã được điều tra vềtyrosinasehoạt động ức chế [16]. Do đó, nghiên cứu này nhằm mục đích đánh giá các hoạt động ức chế tyrosinase của C. schoenanthus, L. cubeba, M. officinalis và V.officinalis EOs, sử dụng xét nghiệm đo màu trong ống nghiệm, để đánh giá xem các thành phần hóa học khác nhau có ảnh hưởng đến các hoạt động ức chế EO tổng thể thông qua bất kỳ các tương tác hiệp đồng, phụ gia và / hoặc cạnh tranh có thể có giữa các thành phần của chúng. Nghiên cứu này sử dụng phương pháp phân đoạn có hướng dẫn abioassay để đánh giá toàn diện các thành phần cấu tạo EO và các chất đối quang của chúng, khi đối xứng, góp phần vào hoạt động ức chế EO chống lại nguồn tyrosinase từ nấm, đây là một hệ thống mô hình tốt để sàng lọc sơ bộtyrosinasechất ức chế [17].
2. Kết quả và thảo luận
2.1. Thành phần hóa học và hàm lượng citral của tinh dầu được khảo sát
Trong nỗ lực của chúng tôi để mô tả một cách toàn diện tất cả các thành phần EO tiềm năng đóng góp vào hoạt động sinh học được xem xét, các EO được điều tra đã được phân tích bằng GC, với cả phát hiện FID và MS. Độ dư phần trăm tương đối chuẩn hóa (được tính từ diện tích tuyệt đối được chuẩn hóa theo tiêu chuẩn nội C13 bằng cách sử dụng hệ số phản ứng [18,19]) của tất cả các hợp chất được phát hiện được xác định và sử dụng để so sánh các chế phẩmEO. Hình 1 báo cáo hồ sơ GC-MS của các EO được điều tra được phân tích bằng một cột thông thường. Bảng 1 liệt kê, đối với mỗi EO được khảo sát, các hợp chất thể hiện mức độ phong phú theo phần trăm chuẩn hóa ở trên 0. 1, trong khi các thành phần hóa học EO hoàn chỉnh được báo cáo trong Tài liệu Bổ sung (Bảng S1 – S5).
Tất cả các EO được điều tra đều giàu neral (cis {{0}}, 7- dimethyl -2, 6- octadienal) andgeranial (trans -3, { {5}} đimetyl -2, 6- octadienal), là những hợp chất phổ biến nhất. Tỷ lệ tang / tuổi rất giống nhau trong tất cả các EO được điều tra và tương ứng với 0. 74 ± 0,05. C. schoenanthus và L. cubeba EOs hiển thị neral và geranialcontent cao nhất, chiếm trung bình 60% trong toàn bộ chế phẩm EO của chúng và lớn hơn 1. 5- lần so với V. officinalis EO và trong ba M. officinalis EO (tức là Mẫu 1, 2 và 3). Các hợp chất oxy hóa bổ sung phổ biến cho tất cả các EO là 6- metyl -5- hepten -1- một, linalool và citronellal. Loại thứ hai có nhiều hơn đáng kể trong M. officinalis EO 1 so với các EO được khảo sát khác, bao gồm M. officinalis EO2 và 3.
Sự phong phú của phần hydrocacbon thay đổi đáng kể ở các EO khác nhau. officinalis EO 1 chỉ chứa trans - - caryophyllene và -humulene dưới dạng sesquiterpenehydrocarbons, lần lượt chiếm 2,7 phần trăm và 0. 13 phần trăm tổng số EO. C.schoenanthus EO trình bày một phần hydrocacbon giàu hơn một chút so với M. officinalis EO 1 (tức là 7. 0 phần trăm), chứa cả hai monoterpen (tức là, camphene, cis {{1 {{2 0 }}}} ocimene, limonene, -pinene, trans - - ocimene, -thujene) và sesquiterpenes (tức là trans - - caryophyllene, -cadinene, δ-cadinene, germacrene D, -elemene) ở mức vừa phải lượng. Trong các EO của L. cubeba và V.officinalis, phần hydrocacbon chiếm 2 0 phần trăm của tổng số EO và limonene là hợp chất phổ biến nhất (tức là 15,0 và 10,9 phần trăm tương ứng), tiếp theo là -pinene, pinene , sabinene, trans - - caryophyllene, -myrcene, camphene và -copaene. Cuối cùng, M.officinalis EO 2 và 3 được đặc trưng bởi hàm lượng phần hydrocacbon cao nhất (tương ứng là 38,8% và 31,8% trong tổng số EO). Trong cả hai mẫu, phần hydrocacbon chủ yếu chứa sesquiterpenes, cụ thể là trans - - caryophyllene (lần lượt là 27,8 phần trăm và 20,0 phần trăm) và -humulene (3,0 phần trăm và 2,6 phần trăm), và một phần monoterpene giảm mà chủ yếu được biến hóa bởi limonene ( 4,2 phần trăm và 3,2 phần trăm, tương ứng).
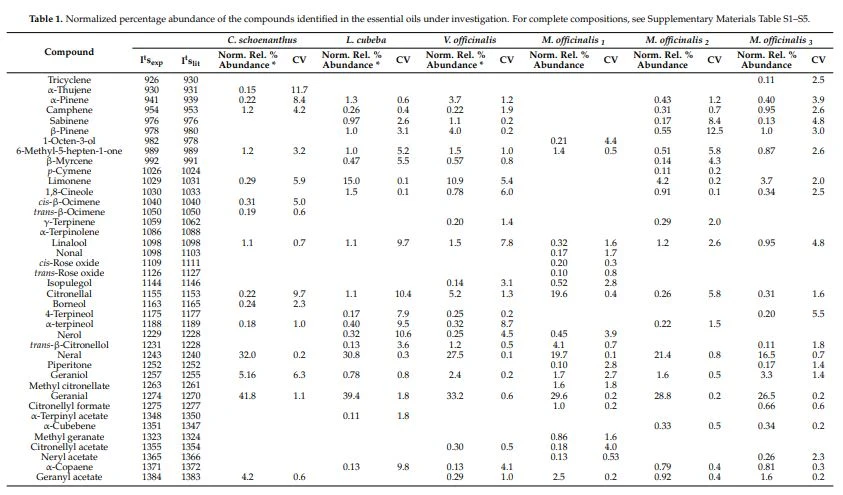
Ba mẫu L. cubeba, V. officinalis, và C. schoenanthus Eos được sản xuất trong các năm khác nhau cũng như ba mẫu M. officinalis EOs từ các nhà sản xuất khác nhau đã được khảo sát. Các phân tích GC-MS đối với C. schoenanthus, L. cubeba, M. officinalis và V. officinalis đã không phát hiện ra sự khác biệt đáng kể về định lượng và định lượng trong thành phần hóa học của ba mẫu ở các năm sản xuất khác nhau. Điều này có thể được quy cho các điều kiện tồn tại tối ưu, tức là, trong một vật chứa bằng thủy tinh màu hổ phách ở 4 ◦C trong bóng tối với không gian đầu không đáng kể. }} caryophyllene trong ba EO M. officinalis được điều tra. Citronellalamount lần lượt là 19,6 phần trăm, 0. 26 phần trăm và 0. 31 phần trăm trong M. officinalis EO 1, 2 và 3. Như đã mô tả trước đây, trans - - caryophyllene có nhiều hơn đáng kể trong M. officinalis EOs 2 và 3 so với M. officinalis EO 1. Những kết quả này phù hợp với những phát hiện được báo cáo bởi Seidler-Lozykawska et al., người đã nêu bật sự khác biệt đáng kể về sự phong phú caryophyllene citral, citronellal và trans - - trong các EO thu được từ 22 kiểu gen M. officinalis được chọn có nguồn gốc từ các vườn thực vật châu Âu [20].
Một phép định lượng thực được thực hiện bởi hiệu chuẩn bên ngoài để đánh giá chính xác sự phong phú của các hợp chất chuyên biệt có hoạt tính sinh học tiềm năng (ví dụ: neral, geranial, limonene, -myrcene và citronellal. Bảng 2 và 3 báo cáo các ion chẩn đoán (m / z) được sử dụng cho SIM- Định lượng MS của các hợp chất đánh dấu đang được khảo sát cùng với dải hiệu chuẩn, phương trình đường chuẩn, giá trị tương quan và sai số chuẩn hồi quy của từng chất phân tích và kết quả định lượng tương ứng.

2.2. Hoạt động ức chế trong ống nghiệm của các loại tinh dầu được khảo sát chống lại Tyrosinase của nấm
Như đã mô tả trước đây, các EO của C. schoenanthus, M. officinalis, L. cubeba và V.officinalis có hàm lượng citral cao, được đặc trưng bởi hoạt tính ức chế không cạnh tranh chống lại nguồn nấm tyrosinase [8,16,21] . Nghiên cứu này nhằm mục đích kiểm tra ống nghiệmtyrosinasecác hoạt động ức chế của các EO này để khám phá xem liệu hoạt tính ức chế của chúng có thể được chỉ cho hàm lượng citral của chúng hay không, hoặc liệu có các hợp chất hoạt tính sinh học khác ảnh hưởng đến tác dụng ức chế của các EO hay không.
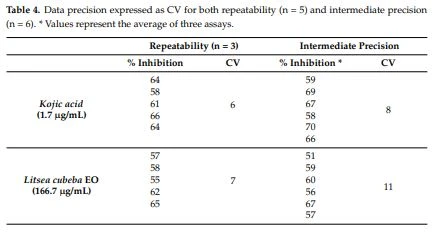
Nấmtyrosinaseở đây đã được chấp nhận vì tính tương đồng cao của nó với humantyrosinase, chi phí tương đối thấp và tính sẵn có của nó, làm cho nó trở thành một hệ thống mô hình tốt để sàng lọc sơ bộ các chất ức chế tyrosinase [17]. Độ chính xác của ống nghiệmtyrosinaseThử nghiệm ức chế được đánh giá về độ lặp lại (bằng cách thực hiện xét nghiệm ức chế enzym năm lần trong cùng một ngày) và độ chính xác trung gian (bằng cách lặp lại xét nghiệm ức chế enzym năm lần mỗi bốn tuần trong khoảng thời gian sáu tháng). Bảng 4 báo cáo hệ số biến thiên (CV) đối với các thử nghiệm ức chế được thực hiện với axit kojic, được sử dụng như một đối chứng dương tính và với L. cubeba EO. Kết quả rất khả quan vì CV không bao giờ vượt quá 7% đối với độ lặp lại và 10% đối với độ chính xác trung bình. Bảng 4 báo cáo hệ số biến thiên đối với các thử nghiệm ức chế được thực hiện với axitkojic, được sử dụng làm đối chứng dương tính, và với L. cubeba EO. Các giá trị chính xác tương tự đã được duy trì cho tất cả các EO được thử nghiệm.
Đường cong nồng độ citral-phản ứng được nghiên cứu bằng cách vẽ biểu đồ hoạt tính ức chế quan sát được như một hàm của nồng độ của nó trong hỗn hợp phản ứng. Tất cả các EO đều được thử nghiệm ở nồng độ 166,7 µg / mL, cung cấp, bất kể EO, tạo ra nồng độ citral trong phạm vi tuyến tính của đường cong nồng độ-đáp ứng của nó (y=0. 3956x cộng với 1,8094, R {{7} } .9951, lỗi hồi quy: 2.08448, phạm vi tuyến tính: 6.7–166.7 µg / mL) và không tạo ra các vấn đề về độ hòa tan trong hỗn hợp phản ứng.
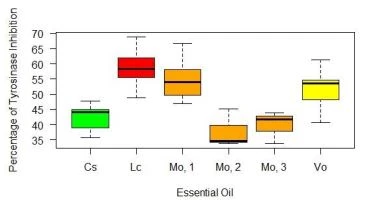
Biểu đồ hộp được báo cáo trong Hình 2 trình bày tỷ lệ phần trăm củatyrosinaseức chế đối với mỗi EO. Đối với các EO của L. cubeba, V. officinalis và C. schoenanthus, kết quả được báo cáo trong Hình 2 tương ứng với hoạt động ức chế tyrosinase của nấm của các EO của 2 0 20 bởi vì phân tích phương sai cho thấy không có sự khác biệt có ý nghĩa thống kê giữa các EOsof khác nhau năm sản xuất (p> 0,05). Đối với các EO của L. cubeba và C. schoenanthus, những kết quả này phù hợp tốt với kết quả thu được từ các phân tích GCMS định lượng cho thấy một lượng citral gần như giống hệt nhau trong các EO của các năm sản xuất khác nhau. Lô V. officinalis EO năm 2020 chứa lượng citral cao hơn một chút so với lô 2019 và 2018. Tuy nhiên, theo nồng độ citral – đáp ứng, lượng citral dư thừa trong lô 2020 không đủ để xác định tỷ lệ phần trăm ức chế enzym cao hơn có ý nghĩa thống kê nếu xét ngẫu nhiên lỗi liên quan đến các phép đo. Để biết thêm chi tiết, hãy xem Hình S1 trong Tài liệu Bổ sung. Mặt khác, phân tích phương sai (ANOVA) được thực hiện theo bài kiểm tra sau Tukey – Kramer cho thấy ba EO M. officinalis được thử nghiệm, được cung cấp bởi các nhà sản xuất khác nhau, đã ức chế nấmtyrosinasevới các phạm vi khác nhau, sẽ được mô tả kỹ hơn trong các đoạn sau. Các hoạt động ức chế lớn nhất được quan sát thấy đối với các EO của L.cubeba, M. officinalis 1 và V. officinalis, ức chế 59 ± 6%, 55 ± 7% và 52 ± 6%tyrosinasehoạt động, tương ứng, khi thử nghiệm ở nồng độ 166,7 µg / mL. Các hoạt động thấp hơn có ý nghĩa thống kê (p <0. 05)="" được="" quan="" sát="" thấy="" đối="" với="" các="" eo="" của="" c.="" schoenanthus="" và="" m.officinalis="" 2="" và="" 3="" có="" hoạt="" tính="" ức="" chế="" enzym="" là="" 42="" ±="" 5%,="" 40="" ±="" 5%="" và="" 38="" ±="" 6="" phần="" trăm,="" tương="" ứng.="" bảng="" 5="" cung="" cấp="" nồng="" độ="" chất="" ức="" chế="" làm="" giảm="" một="" nửa="" hoạt="" động="" của="" enzym="" trong="" các="" điều="" kiện="" thí="" nghiệm="" nhất="" định="" (ic50)="" đối="" với="" mỗi="" chất="" ức="" chế="" được="" khảo="" sát="" (ví="" dụ:="" eo,="" hợp="" chất="" đơn="" và="" axit="" kojic).="" tất="" cả="" các="" eo="" đều="" ức="" chế="" hiệu="" quả="" tyrosinase="" của="" nấm="" và="" thể="" hiện="" hoạt="" động="" ức="" chế="" trung="" bình="" thấp="" hơn="" 100-="" lần="" so="" với="" kojicacid,="" được="" sử="" dụng="" làm="" chất="" kiểm="" soát="" tích="">
2.3. Xác định các thành phần hoạt tính sinh học bổ sung, bên cạnh Citral, bằng phân đoạn sinh học được hướng dẫn bằng phương pháp sinh học Biểu đồ được báo cáo trong Hình 3 so sánh tỷ lệ phần trăm ức chế enzym được đo bằng thực nghiệm với các giá trị được mong đợi nếu neral và geranial (lệch thành tổng, tức là citral) là chỉ các hợp chất hoạt động trong các EO được khảo sát. Các giá trị này được đo bằng phép nội suy từ đường cong nồng độ citral-phản ứng. Như có thể lưu ý, C. schoenanthus, M. officinalis 2 và M. officinalis 3 thể hiện khả năng ức chế ac phù hợp với hàm lượng citral của chúng, trong khi L. cubeba, M. officinalis 1 và V. officinalis EOs ức chế nấm tyrosinase ở mức độ lớn hơn mong đợi. Một phương pháp tiếp cận hướng dẫn sinh học đã được áp dụng để xác định các hợp chất bổ sung liên quan đến hoạt động của citral. Các phân đoạn oxy hóa và hydrocacbon của L. cubeba, M. officinalis 1, và V. officinalis EO được phân lập bằng sắc ký nhanh và được kiểm tra riêng cho nấm của chúngtyrosinasecác hoạt động ức chế. Các phân đoạn được kiểm tra phytohemical cho các hoạt động ức chế tyrosinase của nấm. Các phân đoạn phytohemical được thử nghiệm ở cùng nồng độ với nồng độ kết quả của chúng khi kiểm tra 166,7 µg / mL EO tương ứng (xem phần Vật liệu và Phương pháp tại Phần 3.2). Bảng 6 báo cáo nồng độ của neral, geranial, citronellal, limonene, và -myrcen trong các phân đoạn hydrocacbon và oxy hóa của các EO được phân đoạn.
Đối với L. cubeba và V. officinalis EOs, cả hai phần oxy và hydrocacbon đều ức chế tyrosinase của nấm, mặc dù ở các mức độ khác nhau. Hoạt động của các phân số được oxy hóa (tương ứng là 53 ± 3 phần trăm và 44 ± 5) chiếm hầu hết các EOsanti-tyrosinasetiềm năng và phù hợp với hàm lượng citral tương ứng, cho thấy rằng các hợp chất đóng góp vào hoạt tính của citral thuộc về các phân đoạn hydrocacbon. Các phân đoạn hyđrocacbon của L. cubeba và V. officinalis EO có thành phần hóa học khá giống nhau. Limonene (lần lượt là 68,4 và 5 0. 3 phần trăm), trans - - caryophyllene (12. 0 và 7,8 phần trăm, tương ứng), -pinene (1,7 và 7,5 phần trăm, tương ứng), -pinene (tương ứng là 2,5 và 12,9 phần trăm), sabinene (2,7 và 3,8 tương ứng), và -myrcene (tương ứng là 2,0 và 2,4 phần trăm) là những hợp chất phong phú nhất ở cả hai phần và có mặt với lượng khá giống nhau, ngoại trừ -pinene và -pinene, chiếm ưu thế trong phân đoạn carbon hydro của V. officinalis EO.
The chiral recognition revealed high enantiomeric purities in favor of the (-)-configured enantiomers for trans-β-caryophyllene (>99 phần trăm ở cả hai EO), limonene (97 và 94 phần trăm ở L. cubeba và V. officinalis EO, tương ứng) và sabinene (87 phần trăm trong cả hai EO), trong khi quan sát thấy sự dư thừa đối quang ent khác nhau đối với -pinene ((-) - enantiomer: 38% trong L. cubebaEO và 73% trong V. officinalis EO) và -pinene ((-) - enantiomer: 67% trong L. cubeba EO và 88% trong V. officinalis EO). Trong cả hai EO, (-) - limonene chiếm hơn 50 phần trăm toàn bộ phần. Tuy nhiên, mặc dù các nghiên cứu trước đây đã báo cáo hoạt động ức chế tyrosinase của nấm vì sự phong phú của nó [22,23], (-) - limonene ở đây không cho thấy hoạt động ức chế tyrosinase. Các kết quả tương tự cũng thu được đối với (cộng) -limonene, hỗn hợp raxemic và các hợp chất (-) - trans - - caryophyllene, (±) - - pinene và (±) - - pinene . Sabinene không được thử nghiệm vì nó đã được chứng minh là có phòng vệ sinh không đáng kểtyrosinasetác dụng ức chế [8]. Phù hợp với những phát hiện trước đây [8], myrcene làm giảm hoạt động tyrosinase của nấm. Khi thử nghiệm ở nồng độ quan sát được trong EOs của L. cubeba và V. officinalis là 166,7 µg / mL, hoạt tính -myrcene đã bắc cầu khoảng cách giữa các tác dụng ức chế dự kiến của EO nếu citral là hợp chất hoạt động duy nhất và các kết quả thử nghiệm. Trái ngược với các quan sát của Matsuura et al. [8], -myrcene được chứng minh là chất ức chế tyrosinase của nấm mạnh hơn citral, vì IC50 của nó thấp hơn gần gấp đôi (13,3 µg / mL so với 121,8 µg / mL). Sự khác biệt này có thể được quy cho các chất nền khác nhau được sử dụng; Matsuura và cộng sự. chỉ nghiên cứu khả năng diphenolat của nấm vì họ sử dụng L-DOPA làm chất nền, trong khi trong nghiên cứu này, L-tyrosine đã được sử dụng. Các phát hiện hiện tại cho thấy rằng -myrcene có thể có hiệu quả hơn trong việc ức chế hoạt động của men tyrosinase monophenolase trong phòng vệ sinh hơn là diphenolase.
M. officinalis EO 1 hiển thị một phần nhỏ hydrocacbon chiếm 3% tổng số ít hơn và không có hoạt tính ức chế tyrosinase. Tuy nhiên, phân đoạn được oxy hóa M. officinalisEO 1 ức chế tyrosinase của nấm ở mức độ lớn hơn dự kiến từ hàm lượng citral của nó (Hình 3). Phân đoạn này chứa một lượng đáng kể citronellal ngoài neral và geranial và phân tích chiral cho thấy độ tinh khiết đối xứng cao hơn của citronellal có lợi cho enantiomer (cộng) (98,3 phần trăm). Khi được thử nghiệm độc lập, ở nồng độ 166,7 µg / mL, (cộng) -citronellal ức chế nấm ở mức độ không đáng kể, mặc dù hoạt tính của nó đã được tăng cường đáng kể khi được tiêu hóa khi kết hợp với citral. Những kết quả này có thể giải thích sự khác biệt quan sát được về tỷ lệ phần trăm của nấmtyrosinaseức chế ở các EO M. officinalis khác nhau. M.officinalis EO 2 và 3 có hàm lượng citronellal rất thấp, có thể là lý do tại sao hoạt động ức chế của chúng thấp hơn đáng kể so với M. officinalis EO 1.
3. Vật liệu và Phương pháp
3.1. Thuốc thử
Dimethyl sulfoxide (DMSO), tyrosinase nấm từ nấm Agaricus bisporus (JE Lange) Imbach, L-tyrosine, axit kojic, citral, citronellal, -myrcene, (cộng) -limonene, (-) - limonene, (±) -limonene, ( ±) -, và cây thông được mua từ Merck Life Science Srl (Milan, Ý). Litsea cubeba, Verbena officinalis và Cymbopogon schoenanthus EOs được cung cấp bởi Erboristeria Magentina Srl (Poirino, Ý). Ba lô của các năm khác nhau (tức là năm 2020,2019, 2018) đã được thử nghiệm cho mỗi đợt. Ba mẫu Melissa officinalis EO đã được điều tra; một mẫu do Agronatura (Spigno Monferrato, Alessandria) cung cấp, một mẫu do ErboristeriaMagentina Srl cung cấp, trong khi mẫu cuối cùng được mua từ một cửa hàng địa phương và từ SpecchiasolS.rl (Bussolengo, Ý). Trong văn bản, các tác giả gọi các EO khác nhau của Melissaofficinalis tương ứng là M. officinalis EOs 1, 2 và 3. Các EO đã cung cấp đã được thu thập theo các quy trình được mô tả trong Dược điển Châu Âu [24]. Melissa officinalis và Verbena officinalis EOs được sản xuất bằng cách chưng cất hydro từ lá và các bộ phận của cây, tương ứng; tương tự, các EO của Litsea cubeba và Cymbopogon schoenanthus được tạo ra bằng cách chưng cất hơi nước của các loại trái cây tươi và các bộ phận trên không tương ứng. MỗiEO được phân tích riêng biệt bởi GC-MS ngay sau khi nó được mua / cung cấp bởi nhà sản xuất tương ứng, mỗi năm bảo quản, và ngay trước khi nghiên cứu về hoạt động ức chế nấm của nó.
3.2. Thử nghiệm ức chế Tyrosinase trong ống nghiệm
Cáctyrosinasecác hoạt động ức chế của EO và các hợp chất phân lập được nghiên cứu trong ống nghiệm bằng cách sử dụng một xét nghiệm enzyme dựa trên phép đọc so màu được tối ưu hóa bởi Zengh và cộng sự. [25], với những sửa đổi nhỏ. Các hoạt động ức chế tyrosinase của EO, cũng như các phân đoạn hydrocacbon và oxy tương ứng của chúng và các hợp chất tinh khiết đã được nghiên cứu trong ống nghiệm trong một thử nghiệm enzyme dựa trên phép đo màu được tối ưu hóa bởi Zengh et al. [25], với những sửa đổi nhỏ: thử nghiệm được thực hiện ở nhiệt độ phòng vàtyrosinaseSự ức chế được đo có xét đến sự kiểm soát và độ hấp thụ của mẫu sau 6 phút ủ, thay vì sau 20 phút, để hoạt động dưới phần tuyến tính của phản ứng enzym, điều này mang lại kết quả ức chế chính xác hơn [26,27]. Nấm tyrosinasefrom Agaricus bisporus (JE Lange) Imbach đã được chọn cho nghiên cứu này. L-Tyrosine được sử dụng làm chất nền, có nghĩa là hoạt động ức chế tyrosinase tổng thể đã được khảo sát mà không phân biệt giữa hoạt động của men tyrosinase monophenolase và diphenolase. Các giải pháp của các chất ức chế tiềm năng được khảo sát (EO, các phân đoạn cô lập EO, các hợp chất riêng lẻ EO, và kojicacid) đã được chuẩn bị trong DMSO. Bảng 7 báo cáo các nồng độ được thử nghiệm đối với từng chất ức chế tiềm năng được đầu tư. Cây nấmtyrosinasedung dịch 2 0 0 U / mL (27,9 µg / mL) được chuẩn bị trong dung dịch đệm natri phosphat (pH 6,8) và các lượng 9 mL được bảo quản ở -18 ◦C và được rã đông ngay trước khi thí nghiệm. Dung dịch tyrosine 0. 1 mg / mL được chuẩn bị trước trong dung dịch đệm natri photphat (pH 6,8) và thay mới hàng ngày. Các thành phần của hỗn hợp phản ứng được cho vào lọ theo thứ tự sau: 1 mL nấm tyrosinasesolution 2 0 0 U / mL; 1 mL dung dịch đệm natri phosphat; 10 µL dung dịch axit EO / com pound / kojic đơn lẻ; và cuối cùng là 1 mL dung dịch tyrosine 0,1 mg / mL. Phần trăm DMSO cuối cùng trong hỗn hợp phản ứng là 0,3 phần trăm. Thử nghiệm được thực hiện trong một lọ 4 mL đậy kín để tránh thất thoát bất kỳ thành phần EO nào vào môi trường xung quanh và giảm thiểu sự giải phóng chúng vào khoảng trống phía trên hỗn hợp phản ứng. Hỗn hợp phản ứng được ủ trong bể nước ổn nhiệt ở 25 ◦C trong 6 phút. Sau đó, độ hấp thụ ở bước sóng 475 nm đã được đăng ký, vì bước sóng này cho phép xác định quang phổ. Độ hấp thụ tương ứng với 100 phần trăm hoạt tính tyrosinase được đo bằng cách thay thế EO / hợp chất riêng lẻ / dung dịch axit kojic bằng 10 µL DMSO nguyên chất. / axit kojic / dung dịch DMSO, và 1 mL dung dịch tyrosinesolution 0,1 mg / mL. Phần trăm ức chế tyrosinase được đo theo phương trình dưới đây: phần trăm ức chế=∆A (Kiểm soát) - ∆A (Mẫu) / ∆A (Kiểm soát) × 100, ∆A (Kiểm soát) hoặc (Mẫu) {{ 33}} A475 (Đối chứng) hoặc (Mẫu) - A475 (Mẫu trắng) hoặc (Mẫu trống).
3.3. Sắc ký cột đèn flash
Phân đoạn EO được thực hiện trên hệ thống sắc ký cột nhanh PuriFlash45 0 của Sepachrom (Rho, Milan, Ý), được trang bị cả máy dò UV và ELSD. Lượng EO phân đoạn: 900,0 mg. Pha tĩnh: các hạt silica gel hình cầu, 50 µm, 25 mg (Purezza®-Sphera Cartridge Stationary) từ Sepachrom; pha động: Petrolete (A) và etyl axetat (B); tốc độ dòng chảy 25 mL / phút. Rửa giải gradient tuyến tính được pha từ 100 phần trăm A đến 80 phần trăm A và 20 phần trăm B trong 20 phút.
3.4. Điều kiện phân tích
Các dung dịch EO và những phần nhỏ tương ứng của chúng được chuẩn bị trong xyclohexanat có nồng độ 5. 0 mg / mL và được phân tích bởi GC-MS. Citral, citronellal, -myrcene và limonene được định lượng trong mỗi EO và các phân đoạn cô lập tương ứng bằng cách sử dụng phương pháp hiệu chuẩn tiêu chuẩn bên ngoài. Các mức hiệu chuẩn thích hợp đã được chuẩn bị sẵn incyclohexane và được phân tích bởi GC-MS. Tridecane (C13) 1. 0 mg / mL được sử dụng làm chất chuẩn nội để chuẩn hóa các tín hiệu của chất phân tích. Bảng 2 tóm tắt khoảng nồng độ được xem xét cho mỗi hợp chất được định lượng.
Các phân tích GC-MS được thực hiện bằng cách sử dụng bộ lấy mẫu đa năng Gerstel MPS -2 (Mülheim an der Ruhr, Đức) được cài đặt trên Agilent 689 0 N GC được kết hợp với MSD 5975 và được trang bị ChemStation Phiên bản E. 0 2. 0 Hệ thống xử lý dữ liệu 2.1431 (AgilentTechnologies, Santa Clara, CA, USA). Điều kiện GC: nhiệt độ kim phun: 25 0 ◦C; injectionmode: chia nhỏ; tỷ lệ: 1/20; khí mang: helium; tốc độ dòng không đổi: 1 mL / phút; cột: Mega5 (95 phần trăm polydimethylsiloxan, 5 phần trăm phenyl) df 0,25 µm, dc 0,25 mm, dài 25 m, từ MEGA (Legnano, Ý). Chương trình nhiệt độ: 50 ◦C // 3 ◦C / phút // 180 ◦C // 10 ◦C / phút // 250 ◦C (5 phút). Điều kiện MSD: MS hoạt động ở chế độ EI (70 eV); phạm vi quét: 35 đến 350 amu; thời gian dừng 40 ms; nhiệt độ nguồn ion: 230 ◦C; nhiệt độ tứ cực: 150 ◦C; nhiệt độ dòng truyền: 280 ◦C. Các điểm đánh dấu EO được xác định bằng cách so sánh cả chỉ số lưu ý tuyến tính (CNTT) của chúng, được tính toán so với hỗn hợp hydrocacbon C 9- C25 và massspectra của chúng với chỉ số của các mẫu xác thực hoặc từ các thư viện massspectral có bán trên thị trường (Adams, 2007). Phân tích bất đối EO được thực hiện bằng cách áp dụng các điều kiện phân tích tương tự trên đĩa CD 2, 3- di-O-metyl -6- Ot-butyldimethylsilyl - - (2,3DM6TBDMS -CD) df 0,25 µm, dc 0,25 mm, chiều dài 25 m từ MEGA. Các chương trình nhiệt độ: 40 ◦C (1 phút) // 2 ◦C / phút // 220 ◦C (5 phút).
Phân tích GC-FID được thực hiện trên cùng một thiết bị. Điều kiện GC: nhiệt độ kim phun: 250 ◦C; chế độ tiêm: tách; tỷ lệ: 1/20; khí mang: hydro; tốc độ dòng: 1 mL / phút. Các chương trình nhiệt độ: 40 ◦C (1 phút) // 2 ◦C / phút // 220 ◦C (5 phút).
4.Kết luận
Mục đích của cuộc điều tra này là (1) để kiểm tra toàn diện phòng vệ sinh trong ống nghiệmtyrosinasecác hoạt động ức chế của Cymbopogon schoenanthus, Litsea cubeba, Melissa officinalis và Verbena officinalis EOs và (2) để xác định xem hoạt tính sinh học của chúng chỉ được quy cho hàm lượng citral của chúng hoặc nếu có thêm các monoterpen hoạt tính sinh học góp phần vào hoạt tính sinh học được khảo sát bằng cách sử dụng phương pháp tiếp cận phân đoạn sinh học có hướng dẫn. Nghiên cứu này đã xác định rằng trong L. cubeba và V. officinalis EOs, -myrcene góp phần vào các hoạt động ức chế EOs mặc dù số lượng ít và nó đã được chứng minh là có khả năng ức chế citral nhiều hơn. Phát hiện chính thứ hai là nấm citral tăng cường (cộng với) -citronellaltyrosinasesức mạnh ức chế, khả năng tương tác mạnh mẽ vì nó không hiển thị hoạt động của riêng mình. Phát hiện thứ hai đã giải thích tại sao ở M. officinalis EO có lượng -citronellal không đáng kể (cộng thêm), các hoạt động ức chế lại phù hợp với hàm lượng citral của chúng trong khi điều ngược lại đúng với M. officinalis EO với sự phong phú -citronellal tương đối cao (cộng thêm). mặc dù các nghiên cứu sâu hơn vẫn được yêu cầu để xác định chính xác loại tương tác xảy ra giữa -myrcen và citral và giữa citronellal và citral, và để đánh giá các hoạt động ức chế của các EO này và các hợp chất riêng lẻ trên ngườityrosinase, kết quả của nghiên cứu này có thể giúp thiết kế một cách hợp lý các hỗn hợp EO hoặc các sản phẩm được làm giàu để cải thiện hiệu quả sinh học của chúng và tăng tiềm năng của chúng như là chất bổ trợ trong việc điều trị chứng tăng sắc tố.

Người giới thiệu
1. Pillaiyar, T.; Manickam, M.; Namasivayam, V. Chất làm trắng da: Quan điểm hóa dược của chất ức chế tyrosinase.J. Enzym. Ức chế. Med. Chèm. 2017, 32, 403–425. [CrossRef]
2. Desmedt, B.; Courselle, P.; Bia De, JO; Rogiers, V .; Grosber, M.; Deconinck, E.; De Paepe, K. Tổng quan về các chất làm trắng da với cái nhìn sâu sắc về thị trường mỹ phẩm bất hợp pháp ở Châu Âu. J. Eur. Acad. Dermatol. Venereol. 2016, 30, 943–950. [CrossRef] [PubMed]
3. Desmedt, B.; Van Hoeck, E.; Rogiers, V .; Courselle, P.; Bia De, JO; De Paepe, K .; Deconinck, E. Đặc điểm của mỹ phẩm làm trắng da bị nghi ngờ. J. Pharm. Sinh học. Hậu môn. 2014, 90, 85–91. [CrossRef] [PubMed]
4. Kubo, tôi; Ikuyo, KH Flavonols từ hoa nghệ tây: Cơ chế ức chế và hoạt động của tyrosinase. J. Agric. Food Chem. 1999, 47, 4121–4125. [CrossRef]
5. Chang, C.-TT; Chang, W.-LL; Hsu, J.-CC; Chết tiệt; Chou, S.-TT Thành phần hóa học và hoạt tính ức chế tyrosinase của tinh dầu quế. Người máy. Đinh tán. 2013, 54, 2–8. [CrossRef]
6. Garcia-Molina, MDM; Muñoz-Muñoz, JL; Garcia-Molina, F.; García-Ruiz, PA; Garcia-Canovas, F. Hoạt động của các phenol thay thế bằng tyrosinase onortho: Có thể ảnh hưởng đến quá trình tạo màu nâu và hình thành hắc tố. J. Agric. Chem chép thực phẩm. 2012, 60, 6447–6453. [CrossRef]
7. Kubo, tôi; Kinst-Hori, I. Chất ức chế Tyrosinase từ Thì là. J. Agric. Chem chép thực phẩm. 1998, 46, 5338–5341. [CrossRef]
8. Matsuura, R .; Ukeda, H.; Sawamura, M. Tyrosinase ức chế hoạt động của tinh dầu cam quýt. J. Agric. Chem chép thực phẩm. 2006,54, 2309–2313. [CrossRef]
9. Lertsatitthanakorn, P.; Taweechaisupapong, S .; Chất thơm, C.; Khunkitti, W. Hoạt tính sinh học in vitro của các loại tinh dầu được sử dụng để kiểm soát mụn trứng cá. Int. J. Hương thơm. 2006, 16, 43–49. [CrossRef]
10. Bouzenna, H.; Hfaiedh, N.; Giroux-Metges, M.-A.; Elfeki, A. .; Talarmin, H. Đặc tính sinh học của citral và tác dụng bảo vệ tiềm năng của nó chống lại độc tính tế bào do aspirin gây ra trong tế bào IEC -6. Sinh học. Dược phẩm khác. 2017, 87, 653–660. [CrossRef]
11. Lee, HJ; Jeong, HS; Kim, DJ; Không, YH; Yuk, DY; Hong, JT Tác dụng ức chế của citral đối với việc sản xuất NO bằng cách ức chế biểu hiện củaiNOS và kích hoạt NF-κB trong các tế bào RAW264.7. Vòm. Dược phẩm. Res. 2008, 31, 342–349. [CrossRef]
12. Carvalho, PMM; Macêdo, CAF; Ribeiro, TF; Silva, AA; Da Silva, RER; de Morais, LP; Kerntopf, MR; Menezes, IRA; Barbosa, R. Tác dụng của tinh dầu Lippia alba (Mill.) NE Brown và các thành phần chính của nó, citral và limonene, trên cơ răng khí quản của chuột. Công nghệ sinh học. Bản tái bản 2018, 17, 31–34. [CrossRef] [PubMed]
13. Pereira-de-Morais, L.; Silva, AdA; da Silva, RER; Costa, RHSd; Monteiro, Á.B .; Barbosa, CRdS; Amorim, TdS; deMenezes, IRA; Kerntopf, MR; Barbosa, R. Hoạt tính gây độc của tinh dầu Lippia alba và các thành phần chính của nó, citral andlimonene, trên tử cung bị cô lập của chuột. Chèm. Biol. Tương tác. 2019, 297, 155–159. [CrossRef]
14. Da Silva, RER; de Morais, LP; Silva, AA; Bastos, CMS; Pereira-Gonçalves, Á .; Kerntopf, MR; Menezes, IRA; Leal-Cardoso, JH; Barbosa, R. Tác dụng điều hòa mạch máu của tinh dầu Lippia alba và thành phần chính của nó, citral, đối với sự co bóp của động mạch chủ cô lập. Sinh học. Dược phẩm khác. 2018, 108, 792–798. [CrossRef] [PubMed]
15. Sousa, DG; Sousa, SDG; Silva, RER; Silva-Alves, KS; Ferreira-da-Silva, FW; Kerntopf, MR; Menezes, IRA; Leal-Cardoso, JH; Barbosa, R. Tinh dầu Lippia alba và thành phần chính citral của nó ngăn chặn sự hưng phấn của dây thần kinh tọa ở chuột. Braz. J. Med.Biol. Res. 2015, 48, 697–702. [CrossRef] [PubMed]
16. Huang, X.-W .; Feng, Y.-C.; Hoàng, Y .; Li, H.-L. Ứng dụng mỹ phẩm tiềm năng của tinh dầu chiết xuất từ quả bời lời đỏ từ Trung Quốc. J. Tiểu luận. Dầu Res. 2013, 25, 112–119. [CrossRef]
17. Zolghadri, S.; Bahrami, A.; Hassan Khan, MT; Munoz-Munoz, J.; Garcia-Molina, F.; Garcia-Canovas, F.; Saboury, AA Đánh giá toàn diện về các chất ức chế tyrosinase. J. Enzim. Ức chế. Med. Chèm. 2019, 34, 279–309. [CrossRef]
18. Bicchi, C.; Liberto, E.; Matteodo, M.; Sgorbini, B.; Mondello, L. .; Zellner, Bd; Costa, R .; Rubiolo, P. Phân tích định lượng dầu tiềm năng: Một nhiệm vụ phức tạp. Hương vị Fragr. J. 2008, 23, 382–391. [CrossRef]
19. Rubiolo, P.; Sgorbini, B.; Liberto, E.; Cordero, C.; Bicchi, C. Tinh dầu và chất bay hơi: Chuẩn bị và phân tích mẫu. Một đánh giá. Flavour Fragr. J. 2010, 25, 282–290. [CrossRef]
20. Seidler-Łozykowska, K .; Bocianowski, J .; Król, D. Đánh giá sự biến đổi của các đặc điểm hình thái và hóa học của các kiểu gen cây tía tô đất đã chọn (Melissa officinalis L.). Ind. Sản phẩm cây trồng. 2013, 49, 515–520. [CrossRef]
21. Kubo, tôi; Kinst-Hori, I. Hoạt động ức chế tyrosinase của các hợp chất hương vị dầu ô liu. J. Agric. Chem chép thực phẩm. 1999, 47, 4574–4578. [CrossRef] [PubMed]
22. Fiocco, D.; Arciuli, M.; Đấu trường, MP; Benvenuti, S.; Gallone, A. Thành phần hóa học và khả năng chống tạo hắc tố của các loại tinh dầu khác nhau. Hương vị Fragr. J. 2016, 31, 255–261. [CrossRef]
23. Hu, JJ; Li, X.; Liu, XH; Zhang, WP Tác dụng ức chế của tinh dầu chanh đối với hoạt động tyrosinase của nấm trong ống nghiệm. Mod. FoodSci. Technol. 2015, 31, 97–105. [CrossRef]
24. Hội đồng Châu Âu. Dược điển Châu Âu, xuất bản lần thứ 10; Hội đồng Châu Âu: Strasburg, Pháp, 2020; ISBN 978-92-871-8921-9.
25. Zheng, ZP; Tân, HY; Chen, J .; Wang, M. Đặc điểm của chất ức chế tyrosinase trong cành cây Cudrania tricuspidata và nghiên cứu mối quan hệ cấu trúc-hoạt động. Fitoterapia 2013, 84, 242–247. [CrossRef] [PubMed]
26. Williams, KP; Scott, JE Thiết kế Thử nghiệm Enzyme để Sàng lọc Thông lượng Cao. Trong sàng lọc thông lượng cao. Phương pháp sinh học phân tử (Phương pháp và quy trình); Janzen, WP, Paul, B., Eds .; Humana Press: Clifton, NJ, Hoa Kỳ, 2009; Tập 565, pp. 107–126.
27. Brooks, HB; Geeganage, S.; Kahl, SD; Montrose, C.; Sittampalam, S .; Smith, MC; Weidner, JR Kiến thức cơ bản về thử nghiệm enzyme cho HTS. Trong Sổ tay Hướng dẫn Xét nghiệm; Markossian, S., Sittampalam, S., Grossman, A., Eds .; Eli Lilly & Company và Trung tâm Quốc gia về Tiến bộ Khoa học Dịch thuật: Bethesda, MD, USA, 2004