

Hệ thống kháng vi-rút nấm men đa dạng ngăn chặn mầm bệnh gây chết người do LA Mycovirus gây ra
Dec 01, 2023
Các nghiên cứu gần đây cho thấy các hệ thống chống vi-rút được bảo tồn đáng kể từ vi khuẩn đến động vật có vú, chứng tỏ rằng có thể thu được những hiểu biết độc đáo về các hệ thống này bằng cách nghiên cứu các sinh vật vi sinh vật. Tuy nhiên, không giống như ở vi khuẩn, nơi nhiễm thể thực khuẩn có thể gây tử vong, không có hậu quả do virus gây độc tế bào ở nấm men Saccharomyces cerevisiae đang chớm nở mặc dù nó bị nhiễm mãn tính với loại mycovirus RNA sợi đôi có tên là LA. Điều này vẫn xảy ra bất chấp việc xác định trước đó các hệ thống chống vi-rút được bảo tồn nhằm hạn chế sự sao chép LA. Ở đây, chúng tôi cho thấy rằng các hệ thống này hợp tác để ngăn chặn sự sao chép LA tràn lan, nguyên nhân gây chết tế bào phát triển ở nhiệt độ cao. Khai thác khám phá này, chúng tôi sử dụng màn hình biểu hiện quá mức để xác định các chức năng chống vi-rút đối với các chất tương đồng nấm men của protein liên kết polyA (PABPC1) và miền La chứa protein Larp1, cả hai đều liên quan đến khả năng miễn dịch bẩm sinh của vi-rút ở người. Sử dụng phương pháp tiếp cận mất chức năng bổ sung, chúng tôi xác định các chức năng chống vi-rút mới cho các exonuclease RNA được bảo tồn REX2 và MYG1; phức hợp điều hòa nhiễm sắc SAGA và PAF1; và HSF1, bộ điều chỉnh phiên mã chính của phản ứng căng thẳng do ổn định protein. Thông qua việc điều tra các hệ thống chống vi-rút này, chúng tôi cho thấy rằng sinh bệnh học LA có liên quan đến phản ứng căng thẳng kìm hãm protein được kích hoạt và sự tích tụ các tập hợp protein gây độc tế bào. Những phát hiện này xác định stress gây độc cho protein là nguyên nhân cơ bản gây ra bệnh LA và thúc đẩy hơn nữa nấm men như một hệ thống mô hình mạnh mẽ để phát hiện và mô tả đặc tính của các hệ thống chống vi-rút được bảo tồn.
Tất cả các chủng trong phòng thí nghiệm và hầu hết các chủng nấm men S. cerevisiae phân lập được trong môi trường đều bị nhiễm vi rút RNA sợi đôi (dsRNA) có tên là LA (1, 2). LA thuộc họ virus DSRNA nội sinh phân tán rộng rãi Totiviridae. Giống như tất cả các loại virus thuộc họ này, bộ gen LA dsRNA được đóng gói bên trong một virion để bảo vệ nó khỏi quá trình tiêu hóa qua trung gian vật chủ. Các lỗ trong virion cho phép đẩy các bản phiên mã RNA vào bào tương để mã hóa protein capsid, Gag, bao gồm phần lớn hạt. Bản phiên mã LA cũng mã hóa protein tổng hợp Gag-pol, được sản xuất ở mức độ thấp hơn nhiều so với protein Gag, có hoạt tính RNA polymerase phụ thuộc RNA. Mỗi virion chứa một protein Gag-pol, đảm nhận vai trò sao chép và phiên mã LA bên trong hạt. Việc đóng gói các bản phiên mã của virus trong các hạt mới sinh và sự tổng hợp chuỗi RNA âm tính bằng Gag-pol để tạo thành bộ gen DSRNA hoàn thành chu trình sao chép LA (2). Để tạo ra các protein này, LA sử dụng các đặc điểm điển hình của virus RNA được tìm thấy ở người, bao gồm cơ chế "chộp lấy nắp" cung cấp các bản phiên mã LA có nắp 5′-methyl và cơ chế dịch khung ribosome để tạo ra các protein tổng hợp Gag và Gag-pol từ một bảng điểm duy nhất (3, 4).

cistanche tubulosa-cải thiện hệ thống miễn dịch
Các nghiên cứu gần đây về hệ thống kháng virus của vi khuẩn đã chỉ ra rằng chúng có chung đặc tính bảo tồn tiến hóa đáng chú ý với con người, cho thấy tiềm năng của các sinh vật vi sinh vật trong việc cung cấp những hiểu biết mới về khả năng miễn dịch bẩm sinh của virus (5–11). Thật vậy, các nghiên cứu ban đầu liên quan đến LA đã dẫn đến việc phát hiện ra hai hệ thống chống vi-rút mà sau đó đã được chứng minh là góp phần tạo ra khả năng miễn dịch bẩm sinh chống lại các loại vi-rút RNA khác nhau ở động vật có vú (12–17). Hệ thống chống virus đầu tiên bao gồm các gen SKI2, 3 và 8, mã hóa các tiểu đơn vị của phức hợp liên quan đến ribosome được bảo tồn, chống lại việc dịch mã các bản phiên mã thiếu đuôi poly(A) giống như các mã hóa bởi LA (18–23). Một con đường suy giảm LA riêng biệt xảy ra thông qua Xrn1 (còn được gọi là SKI1), một exoribonuclease 5′-3′ làm suy giảm các mRNA chưa được khai thác (24–26).
Gần đây, chúng tôi đã phát hiện ra rằng Nuc1 DNA/RNA ty thể ức chế sự tích tụ LA trong các tế bào sinh bào tử, đại diện cho một con đường kháng virus nấm men mới (27). Nuc1 là một chất tương đồng của endonuclease G (EndoG) được tìm thấy ở tất cả các sinh vật nhân chuẩn và nhiều sinh vật nhân sơ và được biết đến nhiều nhất với vai trò thúc đẩy sự phân mảnh bộ gen trong quá trình chết tế bào được lập trình ở động vật có vú, một cơ chế bảo vệ virus cuối cùng nổi bật (28, 29). Điều thú vị là, sự chết tế bào được lập trình là bản chất của sự hình thành bào tử nấm men và Nuc1 phân mảnh DNA khỏi các sản phẩm vi trùng chết trong quá trình này, bên cạnh vai trò của nó trong việc làm giảm nồng độ virus LA được di truyền bởi các bào tử còn sống (27, 30, 31).
Mặc dù sự hiện diện phổ biến của LA trong các chủng phòng thí nghiệm, nhưng nó không gây ra hậu quả về thể lực và do đó LA phần lớn được coi là một phần thưởng vô hại. Ở đây, chúng tôi chỉ ra rằng nhiễm LA trên thực tế có thể gây tử vong cho nấm men và nó phải được làm suy giảm tích cực thông qua khả năng miễn dịch bẩm sinh của virus để duy trì khả năng sống sót. Cụ thể, ở các chủng thiếu con đường kháng virus NUC1 và SKI tác dụng song song, số lượng bản sao LA tăng lên ồ ạt, dẫn đến gây chết ở nhiệt độ cao.

cistanche tubulosa-cải thiện hệ thống miễn dịch
Chúng tôi lập luận rằng việc mô tả thêm đặc điểm của LA và các yếu tố duy trì sự sao chép của nó ở mức độ thấp có thể tiết lộ các hệ thống chống vi-rút mới. Việc xác định các điều kiện dẫn đến sinh bệnh LA cho phép chúng tôi sử dụng các phương pháp sàng lọc di truyền chuyển tiếp và tin sinh học để khám phá các gen kháng vi-rút mới. Bằng cách sử dụng sàng lọc các gen được biểu hiện quá mức để ngăn chặn khả năng gây chết có điều kiện của nuc1∆ ski3∆, chúng tôi xác định các chức năng chống vi-rút đối với các tương đồng nấm men của protein liên kết với poly(A) (PABPC1) và miền La chứa protein Larp1, cả hai đều liên quan đến vi-rút bẩm sinh khả năng miễn dịch ở người (32, 33). Hơn nữa, các nghiên cứu về di truyền làm mất chức năng đã xác định được 12 gen kháng virus mới. Trong số này có phức hợp hệ số phiên mã SAGA được bảo tồn cao và một số exonuclease RNA bao gồm REX2 và MYG1, cả hai đều có các đặc điểm tương đồng ở người và vi khuẩn khác biệt nhưng có đặc điểm kém (34–37).
Cuối cùng, chúng tôi mô tả đặc điểm sinh bệnh học của LA bằng các phương pháp sinh học tế bào và phát hiện ra rằng tải lượng virus cao gây ra căng thẳng ổn định protein. Vì nhiệt độ cao được biết đến là nguyên nhân làm trầm trọng thêm tình trạng căng thẳng do quá trình tạo protein, những quan sát này cho thấy rằng căng thẳng do quá trình tạo protein thảm khốc là nguyên nhân gây ra tình trạng tử vong do LA gây ra. Nhất quán với giả thuyết này, chúng tôi cho thấy rằng các đột biến nuc1∆ ski3∆ biểu hiện độ nhạy phụ thuộc LA với azetidine-2-axit cacboxylic (AZC), một chất tương tự proline được biết là gây ra căng thẳng tư thế đứng (38). Hơn nữa, chúng tôi chứng minh chức năng chống vi-rút đối với HSF1, một yếu tố phiên mã được bảo tồn có khả năng cảm nhận và chỉ đạo phản ứng với căng thẳng tư thế. Điều thú vị là Hsf1 ở người cũng đóng vai trò quan trọng trong quá trình nhân lên và/hoặc khả năng gây bệnh của nhiều loại vi rút khác nhau bao gồm HIV, SARS-Cov{11}} và vi rút sốt xuất huyết, mặc dù cơ chế vẫn chưa rõ ràng (39). Những phát hiện này cung cấp các ví dụ mới về bảo tồn miễn dịch bẩm sinh từ vi khuẩn sang người và nấm men có cường độ ánh sáng cao hơn nữa như một hệ thống mô hình mạnh mẽ để phát hiện ra các hệ thống chống vi-rút mới.
Kết quả
Hệ thống kháng vi-rút nấm men NUC1, SKI và XRN1 hợp tác để ngăn ngừa mầm bệnh LA.
Các nghiên cứu trước đây của chúng tôi về NUC1 tập trung vào các tế bào giảm phân (27). Để nghiên cứu chức năng chống vi-rút NUC1 ở nấm men đang phát triển sinh dưỡng, chúng tôi đã kiểm tra số lượng bản sao LA trong các tế bào đơn bội phân bào trong nền chủng BY4742 tham chiếu. Chúng tôi đã quan sát mức độ LA DSRNA bằng cách nhuộm ethidium bromide của RNA điện di và phát hiện ra rằng đột biến kép nuc1∆ ski3∆ cho thấy sự gia tăng lớn về LA DSRNA (Hình 1A). Chúng tôi chứng thực những phát hiện này bằng cách sử dụng kính hiển vi miễn dịch huỳnh quang với kháng thể DSRNA dùng để phát hiện virus RNA đang sao chép (40, 41). Những hình ảnh này cho thấy LA dsRNA tích lũy trong các tiêu điểm, gợi nhớ đến các vị trí nhân lên của virus trong "nhà máy virus" được quan sát thấy trong tế bào người (Hình 1B và SI Phụ lục, Hình S1) (42). Phù hợp với những phát hiện trước đây ở các nền tảng chủng khác (24, 27, 43), phương pháp làm mờ vết rạn phía tây cho thấy mức protein Gag đã tăng lên ở các đột biến nuc1∆ và ski3∆ (Hình 1C). Hơn nữa, chúng tôi đã chỉ ra rằng một đột biến kép nuc1∆ ski3∆ tích lũy mức Gag tăng cao ồ ạt (Hình 1C). Những dữ liệu này cho thấy NUC1 và SKI3 tham gia vào các con đường kháng virus riêng biệt và việc mất cả hai con đường này sẽ dẫn đến tải lượng virus LA tăng lên đáng kể.
Để xác định xem tải lượng virus LA cao có ảnh hưởng đến tình trạng hoạt động của tế bào hay không, chúng tôi đã kiểm tra sự phát triển của nấm men bằng cách sử dụng các xét nghiệm tăng trưởng thử nghiệm tại chỗ. Các khiếm khuyết tăng trưởng tinh vi của các đột biến đơn nuc1∆ và ski3∆ được quan sát thấy ở 37 độ khi các tế bào được phát triển bằng glycerol thay vì glucose làm nguồn carbon, một điều kiện mà nấm men phụ thuộc vào hô hấp của ty thể (Hình 1 D). Đáng chú ý, mặc dù các đột biến kép nuc1∆ ski3∆ tăng trưởng bình thường ở mức 30 độ, nhưng chúng biểu hiện khả năng gây chết có điều kiện ở 37 độ bất kể nguồn carbon (Hình 1 D). Đúng như mong đợi, khả năng tồn tại ở nhiệt độ cao đã được khôi phục thành đột biến kép nuc1∆ ski3∆ nhờ một plasmid biểu hiện NUC{12}}, dẫn đến mức độ Gag giảm tương ứng (Hình 1 C và D). Để xác nhận rằng khiếm khuyết tăng trưởng của đột biến kép nuc1∆ ski3∆ là do LA gây ra, chúng tôi đã tạo ra một chủng đồng phân được chữa khỏi bằng LA (LA0 ) và thử nghiệm sự phát triển của nó ở nhiệt độ cao. Chúng tôi thấy rằng khiếm khuyết tăng trưởng đã được giảm bớt hoàn toàn, ngụ ý rằng tỷ lệ gây chết có điều kiện là kết quả của sự sao chép LA không hạn chế (Hình 1 D). Để đánh giá tác động của số lượng bản sao LA cao đến khả năng hoạt động của tế bào trong điều kiện tăng trưởng tối ưu, chúng tôi đã đo tốc độ tăng sinh trong môi trường nuôi cấy lỏng. Các nghiên cứu này cho thấy tốc độ tăng trưởng giảm ở các đột biến kép nuc1∆ ski3∆ so với loại hoang dã ở 30 độ bị đảo ngược ở các chủng L-A0, chứng tỏ rằng tải LA cao gây bất lợi cho sự thích nghi ngay cả trong các tế bào không bị căng thẳng (SI Phụ lục, Hình 2). S2).

cistanche thực vật tăng cường hệ thống miễn dịch
Nhấn vào đây để xem các sản phẩm Tăng cường miễn dịch Cistanche
【Hỏi thêm] Email:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Để mô tả rõ hơn cách NUC1 tương tác với các con đường chống vi-rút đã biết, chúng tôi đã thử nghiệm mối quan hệ của nó với XRN1. Chúng tôi phát hiện ra rằng đột biến kép nuc1∆ xrn1∆ tích lũy mức độ Gag cao hơn rất nhiều so với đột biến đơn và biểu hiện khả năng gây chết có điều kiện phụ thuộc LA– ở nhiệt độ cao (Phụ lục SI, Hình S3 A và B), cho thấy rằng NUC1 và XRN1 hoạt động trong con đường song song để làm suy giảm LA. Phản ánh vai trò quan trọng không cần thiết của chúng trong việc điều chỉnh số lượng lớn mRNA, một thể đột biến kép xrn1∆ ski3∆ là bất khả xâm phạm, ngay cả ở các chủng thiếu LA (44). Để xác định xem XRN1 có đại diện cho một hệ thống chống vi-rút độc lập với cả NUC1 và SKI3 hay không, chúng tôi đã sử dụng một plasmid có bản sao cao để biểu hiện quá mức XRN1 trong đột biến kép nuc1∆ ski3∆. Thật vậy, chúng tôi đã quan sát thấy mức độ Gag giảm đáng kể và sự ức chế khả năng gây chết có điều kiện nuc1∆ ski3∆ bằng cách sử dụng biểu hiện quá mức XRN1 do plasmid điều khiển (Hình 1 C và D). Chúng tôi kết luận rằng Nuc1, Ski3 và Xrn1 hoàn toàn phản đối sự sao chép LA và tải lượng virus LA tăng lên ồ ạt ở các đột biến nuc1∆ ski3∆ hoặc nuc1∆ xrn1∆ gây ra mầm bệnh gây chết người ở nhiệt độ cao (Hình 1E).
Màn hình di truyền dựa trên tin sinh học xác định các yếu tố kháng vi-rút mới.
Khả năng gây chết có điều kiện phụ thuộc LA của các đột biến kép nuc1∆ ski3∆ làm tăng khả năng các yếu tố kháng vi-rút khác có thể được xác định thông qua các nghiên cứu về đột biến tổ hợp. Để xác định các yếu tố kháng virus mới, chúng tôi đã tìm kiếm cơ sở dữ liệu tương tác di truyền được quản lý để xóa các gen gây ra khiếm khuyết tăng trưởng tổng hợp khi kết hợp với nuc1∆ trong ít nhất hai nghiên cứu sàng lọc hiệu suất cao (45). Ngoài sự hiện diện dự kiến của việc xóa XRN1 và SKI trong bộ dữ liệu này, chúng tôi đã tìm thấy thêm 16 gen bổ sung. Chúng tôi đã sử dụng phương pháp lai gen để tạo ra ba đột biến kết hợp việc xóa từng gen trong số mười sáu gen này bằng nuc1∆ ski3∆ và xác nhận sáu gen gây ra khiếm khuyết tăng trưởng nghiêm trọng (Bảng 1). Chúng tôi xác định rằng các kiểu hình tăng trưởng tổng hợp do mỗi gen này gây ra đã bị đảo ngược ở các chủng LA{11}}, cho thấy rằng chúng mã hóa các protein kháng vi-rút (Bảng 1). Chúng tôi mô tả việc xác nhận một số lần truy cập màn hình này là các yếu tố chống vi-rút mới bên dưới.
Một gen được xác định trong màn hình của chúng tôi, REX2, mã hóa exonuclease 3′-5′ RNA được bảo tồn từ vi khuẩn sang người (35). Cả Rex2 và REXO2 tương đồng với con người của nó đều định vị vào ty thể và chứa miền EXOIII được tìm thấy rộng rãi trong các protein nhân sơ và nhân chuẩn, bao gồm cả protein chống vi rút được kích thích bằng interferon ISG20 (36, 37, 46–48). Chúng tôi phát hiện ra rằng chủng đột biến kép rex2∆ nuc1∆ tích lũy mức độ Gag tăng lên đáng kể so với đột biến đơn và biểu hiện các khiếm khuyết tăng trưởng phụ thuộc LA, bao gồm cả khả năng gây chết ở nhiệt độ cao (Hình 2 A và B, và Phụ lục SI, Hình. S2). Một chủng đột biến đơn rex2∆ biểu hiện mức độ Gag tăng nhẹ, mặc dù hiệu ứng này là không đáng kể (Hình 2 B). Để xem xét kỹ lưỡng hậu quả của rex2∆ đối với số lượng bản sao LA, chúng tôi đã định lượng LA RNA bằng RT-qPCR. Các phép đo này xác nhận rằng các chủng rex2∆ nuc1∆ tích lũy mức LA tăng lên đáng kể, mặc dù chúng cũng tiết lộ rằng một đột biến đơn rex2∆ không tích lũy LA RNA tăng (Hình 2C). Những phát hiện này cho thấy vai trò chống vi-rút của Rex2 chỉ rõ ràng khi không có chức năng NUC1. Đáng chú ý, bộ ba đột biến nuc1∆ ski3∆ rex2∆ và nuc1∆ xrn1∆ rex2∆ là bất khả xâm phạm trong mọi điều kiện tăng trưởng và những khiếm khuyết này đã được đảo ngược ở các chủng L-A0 (Hình 2D). Những phát hiện này chứng minh khả năng gây bệnh nghiêm trọng của mycovirus LA và xác định vai trò chống vi-rút mới đối với exonuclease RNA cục bộ ở ty thể được bảo tồn cao.

Hình 1. Sự suy giảm LA bảo vệ nấm men khỏi mầm bệnh gây chết người. (A) Một gel nhuộm ethidium bromide chứa RNA tổng số được điều chế từ các chủng chỉ định được hiển thị, với dải LA dsRNA 4,6 kb được biểu thị bằng một mũi tên. (B) Phương pháp miễn dịch huỳnh quang được sử dụng để hiển thị LA dsRNA (màu cam) trong các tế bào có kiểu gen được chỉ định. Các chủng này đã được chữa khỏi khỏi vi-rút L-BC DSRNA có hàm lượng yếu để loại bỏ sự nhuộm màu nền (Chi tiết phương pháp). Nhuộm DAPI của DNA có màu xanh lam. (Thanh tỷ lệ, 1 μm.) (C) Mức độ protein LA Gag và 3-phosphoglycerate kinase (Pgk1) ở phương Tây trong các chủng được chỉ định được hiển thị. Đánh dấu trọng lượng phân tử được chỉ định ở bên phải. (D) Các thử nghiệm tăng trưởng thử nghiệm tại chỗ của các chủng từ 1C được hiển thị. Các chủng được phát hiện trên môi trường -Leu chứa glucose hoặc glycerol và phát triển ở nhiệt độ được chỉ định. (E) Protein ty thể Nuc1 cộng tác với protein tế bào Xrn1 và SkiC để điều chỉnh mức protein LA và đảm bảo khả năng hoạt động của tế bào.
Một gen khác được xác định trong màn hình của chúng tôi là MYG1, gen tương đồng với nấm men của gen 1 tăng sinh MelanocYte ở người, một exonuclease RNA 3′-5′ có tương đồng ở tất cả các đơn vị phân loại (34). Các chủng đột biến kết hợp myg1∆ và nuc1∆ biểu hiện sự gia tăng lớn về protein Gag và LA RNA so với các đột biến đơn lẻ và biểu hiện các khiếm khuyết tăng trưởng phụ thuộc LA nghiêm trọng ở nhiệt độ cao và trong môi trường nuôi cấy lỏng (Hình 2C và SI Phụ lục, Hình S2, S4 A và C). Giống như rex2∆, một chủng đột biến đơn myg1∆ cho thấy mức Gag tăng ít và không có thay đổi về LA RNA (Hình 2C và SI Phụ lục, Hình S4C). Chúng tôi đã có thể phục hồi bộ ba đột biến nuc1∆ ski3∆ myg1∆, mặc dù chúng phát triển cực kỳ chậm ở mức 30 và tích lũy mức Gag thậm chí còn cao hơn (SI Phụ lục, Hình S4 A và C). Những khiếm khuyết tăng trưởng này cũng được đảo ngược ở các chủng L-A0 (Phụ lục SI, Hình S4A). Do đó, MYG1 đại diện cho một yếu tố kháng virus mới, hoạt động song song với cả NUC1 và phức hợp SKI.
Bảng 1. Xác định các yếu tố kháng virus mới bằng cách sử dụng phương pháp tin sinh học

Các đột biến dẫn đến biểu hiện quá mức MYG1 ở người có liên quan đến bệnh bạch biến rối loạn tự miễn dịch, cho thấy MYG1 có thể đóng một số vai trò trong khả năng miễn dịch bẩm sinh của con người (49, 50). Chúng tôi đã khám phá khả năng này bằng cách sử dụng plasmid biểu hiện MYG1 ở người dưới sự kiểm soát của chất kích thích nấm men cấu thành (34) và phát hiện ra rằng MYG1 ở người đã cứu được khiếm khuyết tăng trưởng có điều kiện của đột biến nuc1∆ myg1∆ (SI Phụ lục, Hình S4D). Những phát hiện này cho thấy chức năng kháng vi-rút của nấm men MYG1 có thể được thực hiện bằng MYG1 ở người, cho thấy chức năng kháng vi-rút tiềm năng đối với MYG1 ở người.
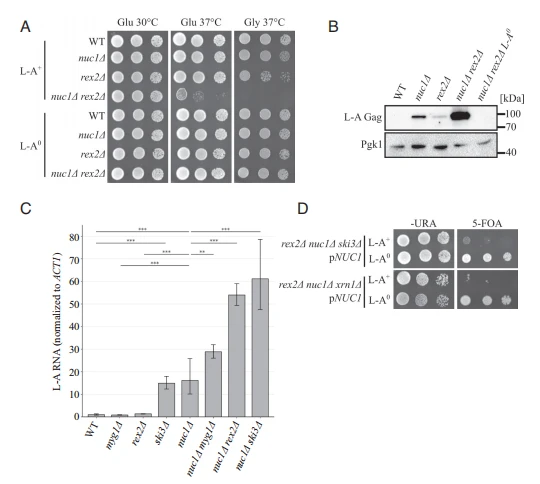
Hình 2. Các yếu tố kháng virus mới được xác định bằng cách khai thác cơ chế bệnh sinh của LA. (A) Phân tích điểm các chủng bị lỗi trong NUC1 và REX2 được hiển thị. Các chủng được phát hiện trên môi trường SC chứa glucose hoặc glycerol và phát triển ở nhiệt độ được chỉ định. (B) Phương Tây làm mờ mức độ protein LA Gag và PGk1 của các chủng trong Hình 2A. Đánh dấu trọng lượng phân tử được chỉ định ở bên phải. (C) LA RNA được định lượng bằng qPCR và được chuẩn hóa thành RNA ACT1 nội sinh. Mức RNA trung bình và SD được hiển thị. n=5. *P < {{10}}.05, **P < 0.01, ***P < 0,001 (bài kiểm tra t của Học sinh chưa ghép đôi). (D) Phân tích tại chỗ các chủng khiếm khuyết trong ba con đường kháng virus song song có chứa plasmid biểu hiện NUC1 được hiển thị. Các chủng được phát hiện trên môi trường -URA hoặc môi trường tổng hợp hoàn chỉnh (SC) được bổ sung 0,1% 5-axit fluoroorotic (5-FOA).
Một loại gen khác được xác định bằng màn hình tin sinh học của chúng tôi là biểu hiện gen. CDC73 và SPT3 mã hóa các tiểu đơn vị của phức hợp liên kết với chất nhiễm sắc được bảo tồn PAF1 và SAGA tương ứng. Cả cdc73∆ và spt3∆ đều gây ra hiện tượng chết phụ thuộc LA khi kết hợp với nuc1∆ ski3∆ (Bảng 1). Bởi vì SAGA (SptAda-Gcn5-Acetyltransferase) đã được chứng minh là có khả năng điều chỉnh tăng cường biểu hiện gen kháng virus ở nấm gây bệnh bạc lá hạt dẻ Cryphonectria parasitica, nên chúng tôi đã nghiên cứu sâu hơn về phức hợp này (51). Một chủng đột biến kép spt3∆ nuc1∆ tích lũy mức Gag tăng lên và biểu hiện khả năng gây chết phụ thuộc LA ở nhiệt độ cao (Phụ lục SI, Hình S4 B và C). SAGA là một phức hợp protein lớn và chúng tôi xác nhận rằng việc xóa một số gen mã hóa tiểu đơn vị SAGA khác có hậu quả về kiểu hình tương tự như spt3∆ (Phụ lục SI, Bảng S1 và S4C). Cùng với những phát hiện từ C. parasitica, những kết quả này cho thấy phức hợp SAGA kiểm soát sự biểu hiện gen kháng virus ở nhiều loài nấm khác nhau.
Sàng lọc ức chế bản sao cao xác định các yếu tố kháng vi-rút nấm men cũng có tác dụng kháng vi-rút ở người.
Do sự biểu hiện quá mức XRN1 đã ngăn chặn các khiếm khuyết tăng trưởng của chủng nuc1∆ ski3∆, nên chúng tôi đã đưa ra giả thuyết rằng sự biểu hiện quá mức của các yếu tố chống vi-rút khác sẽ tạo ra tác động tương tự, có thể được sử dụng làm công cụ sàng lọc để xác định các hệ thống chống vi-rút mới. Chúng tôi đã sử dụng sàng lọc ức chế plasmid có bản sao cao để phát hiện các gen có biểu hiện quá mức làm giảm khả năng gây chết có điều kiện của chủng nuc1Δ ski3Δ (Chi tiết phương pháp). Bằng cách sử dụng màn hình này, chúng tôi đã xác định SRO9, SLF1 và PAB1 là các chất ức chế sao chép cao của nuc1∆ ski3∆, tất cả đều mã hóa các protein liên kết RNA liên kết với ribosome (Hình 3A) (52, 53). Sro9 và Slf1 là các protein chứa miền lupus-autoantigen (La) tương tự được tìm thấy rộng rãi ở sinh vật nhân chuẩn. Đáng chú ý, chất tương đồng ở người của chúng, Larp1, gần đây đã được xác định trong quá trình sàng lọc các protein liên kết với SARS-Cov-2 cùng với chuỗi ssRNA hoặc nucleocapsid (32, 54). Larp1 là trọng tâm chính trong một trong những nghiên cứu này và đã được chứng minh là làm giảm sự sao chép của SARS-Cov{27}} trong tế bào người, mặc dù cơ chế của nó vẫn chưa được biết rõ (32). PAB1 mã hóa Protein liên kết PolyA có tính bảo tồn cao, đây là mục tiêu chung để ức chế virus ở người thông qua các cơ chế đa dạng (33). Chúng tôi nhận thấy rằng sự biểu hiện quá mức của PAB1 hoặc SRO9 đã làm giảm rõ rệt mức độ Gag ở một đột biến nuc1∆ ski3∆, giải thích các kiểu hình giải cứu của chúng (Hình 3B). Điều kỳ lạ là, mặc dù biểu hiện quá mức của SLF1 đã cứu được khiếm khuyết tăng trưởng nuc1∆ ski3∆ cũng như SRO9, nhưng nó không dẫn đến bất kỳ sự giảm nào về mức độ Gag (Hình 3 A và B). Những phát hiện này cho thấy PAB1 và SRO9 giải cứu các tế bào bằng cách ngăn chặn sự sao chép của LA và SLF1 bảo vệ các tế bào khỏi hậu quả gây bệnh do sự nhân lên của virus tăng cao.

cistanche tubulosa-cải thiện hệ thống miễn dịch
Số lượng bản sao LA cao dẫn đến căng thẳng gây độc tế bào.
Để hiểu rõ hơn về các cơ chế khác nhau của hoạt động chống vi-rút Sro9 và Slf1, chúng tôi đã xem xét hậu quả sinh lý của sinh bệnh học LA có thể là gì và SRO9/SLF1 có thể tác động khác nhau như thế nào đến chúng. Chúng tôi đã ghi nhận một nghiên cứu trước đây trong đó việc xóa NUC1 hoặc các gen phức hợp SKI dẫn đến cảm ứng yếu gen báo cáo GFP được kiểm soát bởi Hsf1 (55), một yếu tố phiên mã được bảo tồn có khả năng cảm nhận stress ổn định protein và kích hoạt phản ứng biểu hiện gen (56–58 ). Sử dụng phương pháp tế bào học dòng chảy với phóng viên này (HSE-GFP), chúng tôi đã xác nhận những kết quả này và xác định rằng một đột biến kép nuc1∆ ski3∆ đã gây ra sự kích hoạt hiệp đồng và phụ thuộc LA của HSE-GFP (Hình 3 và Phụ lục SI, Hình S5). Chúng tôi đã đưa ra giả thuyết rằng việc sản xuất ồ ạt Gag được quan sát thấy ở các đột biến nuc1∆ ski3∆ là nguyên nhân gây ra phản ứng căng thẳng do ổn định protein này. Để hỗ trợ điều này, việc kích hoạt HSE-GFP của đột biến kép nuc1∆ ski3∆ đã bị hoàn nguyên do biểu hiện quá mức PAB1 hoặc SRO9, phản ánh hậu quả của các gen này đối với sự tích lũy Gag (Hình 3 B và C). Đáng chú ý, sự biểu hiện quá mức của parolog SLF1 SRO9 không ngăn cản việc kích hoạt HSE-GFP. Do đó, sự phân kỳ tiến hóa của các gen di truyền SRO9 và SLF1 đã dẫn đến các cơ chế kháng virus khác nhau, trong đó SRO9 ức chế sự tích lũy protein của virus và liên quan đến stress ổn định protein, còn SLF1 dường như bảo vệ các tế bào khỏi hậu quả độc hại của stress ổn định protein do virus gây ra.

Hình 3. Sự biểu hiện quá mức của các yếu tố kiểm soát dịch mã làm giảm bớt khả năng gây bệnh LA. (A) Các thử nghiệm tăng trưởng thử nghiệm tại chỗ của các chất ức chế sao chép cao SRO9, SLF1 và PAB1 được hiển thị. Các chủng được phát hiện trên môi trường –LEU chứa glucose hoặc glycerol và phát triển ở nhiệt độ được chỉ định. (B) Phương pháp làm mờ phương Tây đối với mức protein LA Gag, PGk1, Sro9 và Slf1 trong các chủng từ 3A. Đánh dấu trọng lượng phân tử được chỉ định ở bên phải. (C) Phương pháp tế bào học dòng chảy được sử dụng để đo biểu hiện HSE GFP ở các chủng được chỉ định (n {{10}}). Tứ phân vị thứ nhất và thứ ba được đánh dấu bằng hộp màu xám. Cường độ GFP trung bình được đánh dấu bằng các thanh màu đen bên trong. *P < 0.05, **P < 0,01, ***P < 0,001 (bài kiểm tra t của Học sinh chưa ghép đôi). (D) Kính hiển vi huỳnh quang của Hsp{17}}GFP ở các chủng được chỉ định. Các tế bào được nhuộm bằng DAPI để hình dung hạt nhân. (Thanh tỷ lệ, 1 μm.) Tỷ lệ phần trăm ô có 3+ tiêu điểm GFP được hiển thị ở bên phải. n=3. 75 đến 140 ô được tính cho mỗi lần lặp lại.
Căng thẳng ổn định protein thường liên quan đến sự tích tụ các tập hợp protein gây độc tế bào có thể được hình dung bằng cách sử dụng GFP hợp nhất với protein disaggregase Hsp104, mục tiêu trực tiếp của hoạt hóa phiên mã Hsf1 được biết là cùng định vị với các tập hợp protein (59, 60). Để khám phá thêm các khiếm khuyết về ổn định protein liên quan đến sinh bệnh học LA, chúng tôi đã sử dụng kính hiển vi huỳnh quang để hình dung các tiêu điểm Hsp104-GFP ở nhiều chủng khác nhau. Đúng như dự đoán, các tế bào hoang dã phát triển ở góc 30 độ hiếm khi tích lũy được các tiêu điểm Hsp104-GFP có thể quan sát được. Trong khi các đột biến đơn nuc1∆ và ski3∆ giống với kiểu hoang dã, thì đáng chú ý là đột biến kép nuc1∆ ski3∆ biểu hiện hơn 25% tế bào có ba tiêu điểm GFP Hsp104- trở lên (Hình 3D). Giống như tất cả các kiểu hình khác mà chúng tôi đã quan sát thấy đối với nuc1∆ ski3∆, sự tích lũy các tiêu điểm GFP Hsp104- phụ thuộc vào sự hiện diện của LA (Hình 3D). Những phát hiện này cho thấy tải lượng virus cao do xóa NUC1 và SKI3 đã dẫn đến sự tích tụ Hsp{24}}GFP tiêu điểm cho thấy sự tổng hợp protein gây độc tế bào.
Vì sinh bệnh học LA có liên quan đến các khiếm khuyết về ổn định protein, nên chúng tôi đã đưa ra giả thuyết rằng Hsf1 sẽ hoạt động như một yếu tố chống vi-rút. Việc xóa HSF1 sẽ gây chết người, vì vậy chúng tôi đã sử dụng alen hsf1-848 nhạy cảm với nhiệt độ có nguồn gốc từ bộ sưu tập các chủng đã được xuất bản trước đó (61). Alen hsf1-848 biểu hiện sự vắng mặt của sự tăng trưởng ở 39 độ, kiểu hình tăng trưởng trung gian ở 37 độ và không có khiếm khuyết tăng trưởng rõ ràng ở 35 độ (Hình 4A). Các thử nghiệm kiểm tra tại chỗ cho thấy kiểu hình tăng trưởng hsf1-848 ở 35 độ và 37 độ được tăng cường đáng kể khi kết hợp với nuc1∆ hoặc ski3∆ và những khiếm khuyết tăng trưởng này đã được đảo ngược ở các chủng thiếu vi rút LA (Hình 4A) . Đúng như dự đoán, khả năng sống sót của tất cả các chủng đột biến hsf1-848 vẫn tồn tại trong các tế bào phát triển ở nhiệt độ 39 độ bất kể sự hiện diện của LA. Hơn nữa, bằng cách sử dụng phương pháp phân tích tứ giác, chúng tôi đã chỉ ra rằng các đột biến ba hsf1-848 nuc1∆ ski3∆ là bất khả xâm phạm ở nhiệt độ cho phép nếu chúng bị nhiễm LA nhưng khỏe mạnh nếu chúng có nguồn gốc từ chủng LA0 (SI Phụ lục, Hình S6). Bằng cách sử dụng phương pháp làm mờ phương Tây, chúng tôi nhận thấy rằng hsf1-848 nuc1∆ và hsf1-848 ski3∆ đã tích lũy lượng LA Gag tăng lên so với các đột biến đơn lẻ (Hình 4B). Cùng với các nghiên cứu sinh học tế bào của chúng tôi, những phát hiện này cho thấy rằng Hsf1-điều hòa phản ứng căng thẳng ổn định protein có chức năng như một hệ thống chống vi rút trong nấm men, chống lại hậu quả gây bệnh của sự nhân lên tràn lan của LA.
Vì các khiếm khuyết về ổn định protein được biết là sẽ trầm trọng hơn và dẫn đến độc tế bào ở nhiệt độ cao (59), một mô hình đơn giản quy kết các hậu quả chết người của sinh bệnh học LA ở nhiệt độ cao là do căng thẳng nghiêm trọng về ổn định protein. Để kiểm tra thêm mô hình này, chúng tôi đã xử lý các chủng bằng azetidine-2-axit cacboxylic (AZC), một chất tương tự proline được tích hợp vào protein dẫn đến căng thẳng thế đứng (38). Các thí nghiệm này cho thấy nuc1∆ ski3∆ thể hiện độ nhạy cao với AZC theo cách phụ thuộc vào vi rút LA (Hình 4C và SI Phụ lục, Hình S6). Hơn nữa, chúng tôi nhận thấy rằng nuc1∆ ski3∆ thể hiện độ nhạy cảm với ethanol 5%, một tình trạng cũng gây ra các khiếm khuyết về ổn định protein, nhưng không gây ra các khiếm khuyết về ổn định protein, nhưng không gây ra NaCl 0.5 M, gây ra căng thẳng thẩm thấu (SI Phụ lục, Hình S6). Những phát hiện này cho thấy hậu quả chết người của sinh bệnh học LA đặc biệt là do căng thẳng quá mức về ổn định protein.

Hình 4. Phản ứng sốc nhiệt ngăn chặn sinh bệnh LA. (A) Phân tích tại chỗ các chủng bị khiếm khuyết trong HSF1, NUC1 và SKI3 có hoặc không có LA được hiển thị. Các chủng được phát hiện trên môi trường SC chứa glucose và phát triển ở nhiệt độ được chỉ định. (B) Phương pháp làm mờ phương Tây đối với mức protein LA Gag và PGk1 của các chủng được chỉ định. Đánh dấu trọng lượng phân tử được chỉ định ở bên phải. (C) Phân tích tại chỗ các chủng được xử lý bằng chất tương tự proline gây độc protein, azetidine-2-carboxylic acid (AZC), được hiển thị. Các chủng được phát hiện trên môi trường SC chứa glucose được bổ sung có hoặc không có 0,1 mg/mL AZC và phát triển ở nhiệt độ 30 độ .
Cuộc thảo luận
Bất chấp sự hiện diện phổ biến của nó trong các chủng phòng thí nghiệm, các nghiên cứu về virus LA dsRNA vẫn bị hạn chế do bản chất rõ ràng là lành tính của nó. Ở đây, chúng tôi cho thấy LA có những hậu quả sâu sắc đối với nấm men khi sự sao chép của nó không được kiểm soát và các hệ thống miễn dịch bẩm sinh đa dạng duy trì sự sao chép LA ở mức có thể chấp nhận được. Cụ thể, chúng tôi chỉ ra rằng, ở những chủng thiếu gen kháng vi-rút NUC1 và SKI3 hoạt động song song, sự sao chép LA bị điều hòa ồ ạt, dẫn đến căng thẳng tư thế và gây chết có điều kiện ở nhiệt độ cao. Tận dụng khám phá mới này, chúng tôi đã sử dụng sàng lọc di truyền chuyển tiếp và tin sinh học để xác định các gen nấm men mới có chức năng hạn chế sự sao chép LA hoặc bảo vệ tế bào khỏi hậu quả gây bệnh của sự sao chép LA không bị hạn chế. Vì những màn hình này không bão hòa nên bộ gen của nấm men có thể mã hóa nhiều yếu tố kháng vi-rút khác. Nhiều nghiên cứu sâu sắc đã được thực hiện ở nấm men nghiên cứu sự sao chép của RNA virus được đưa vào ngoại sinh từ các sinh vật khác và sẽ rất thú vị khi xác định xem liệu các yếu tố chống vi rút LA có hoạt động tương tự trên các RNA virus này hay không (62, 63).
Với nguy cơ nhiễm LA rõ ràng, làm thế nào nó vẫn tồn tại khi đối mặt với hoạt động chống vi-rút luôn hiện hữu là điều khó hiểu. Lời giải thích cho nghịch lý này có thể là LA mang lại lợi ích cân bằng. Một lợi ích có thể có của LA là nó cho phép một số chủng duy trì các virus vệ tinh mã hóa các chất độc được tiết ra để tiêu diệt các tế bào không bị nhiễm lân cận. Tuy nhiên, LA hiện diện ở nhiều chủng thiếu vệ tinh “Kẻ giết người”, nên cách giải thích này không đủ để giải thích sự tồn tại dai dẳng của nhiễm LA. Do đó, chúng tôi suy đoán rằng LA có thể có một số lợi ích khó hiểu giúp cân bằng tiềm năng có hại của nó.
Phát hiện của chúng tôi về Rex2 như một yếu tố làm suy giảm virus đã mở rộng kho vũ khí của các yếu tố chống vi-rút ty thể đã biết ngoài Nuc1 và cho thấy rằng ty thể là một trung tâm chống vi-rút quan trọng trong nấm men. Thật vậy, ty thể đóng vai trò trung tâm trong việc bảo vệ virus như một cơ quan điều chỉnh sự chết tế bào được lập trình và là nền tảng cho tín hiệu kháng vi-rút ở người. Làm thế nào để các nuclease của ty thể làm suy yếu virus cư trú trong bào tương của nấm men? Một khả năng là các enzyme này, trong khi nhắm mục tiêu vào ty thể, tuy nhiên có thể tích lũy đến mức thấp nhưng đủ trong bào tương để thực hiện trực tiếp sự suy giảm LA. Phù hợp với giả thuyết này, trước đây chúng tôi đã chỉ ra rằng Nuc1 tích lũy trong bào tương của các tế bào giảm phân, mặc dù các phương pháp của chúng tôi không thể phát hiện ra nó trong bào tương của các tế bào phân bào (27). Một giả thuyết khác là một số khía cạnh của chu trình sao chép LA xảy ra có mối liên hệ mật thiết với ty thể. Ví dụ, các bản phiên mã LA có thể liên kết với và có thể đi qua ty thể, khiến chúng tiếp xúc với Nuc1 và/hoặc Rex2. Kết quả của chúng tôi nêu bật tầm quan trọng chung tiềm tàng của ty thể đối với khả năng miễn dịch bẩm sinh của virus ở sinh vật nhân chuẩn và định vị hệ thống nấm men-LA như một mô hình mạnh mẽ cho các nghiên cứu sâu hơn về chủ đề này.
Phức hợp SKI chống vi-rút liên quan đến dịch mã ribosome và việc chúng tôi xác định Pab1, Sro9 và Slf1 là chất ức chế sao chép cao của sinh bệnh học LA cho thấy thêm rằng ribosome dịch mã là trung tâm chính của hoạt động chống vi-rút nấm men. Phát hiện rằng PAB1 (protein liên kết polyA) ức chế LA là điều đáng ngạc nhiên khi không có đuôi polyA trong bản phiên mã LA, cho thấy rằng Pab1 không tác động trực tiếp lên LA. Những phát hiện trước đây cho thấy các bản phiên mã LA cạnh tranh với các mRNA của nấm men polyA+ để thu giữ các tiểu đơn vị ribosome 60S để hình thành phức hợp dịch mã 80S (64). Một mô hình giải thích những phát hiện của chúng tôi là Pab1 tăng cường dịch mã các mRNA chứa đuôi polyA, sau đó làm cạn kiệt sự sẵn có của các tiểu đơn vị 60S cho bản phiên mã LA để dịch. Vai trò của Sro9 và Slf1 trong bản dịch ít được hiểu rõ hơn, nhưng chức năng của chúng có thể liên quan tương tự đến sự cạnh tranh của các bản phiên mã LA đối với các tiểu đơn vị 60S. Điều quan trọng là các gen tương đồng của Pab1 và Sro9/Slf1 có liên quan đến việc bảo vệ virus ở người và các nghiên cứu sâu hơn về các gen này ở nấm men sẽ làm sáng tỏ các cơ chế chống vi rút được bảo tồn từ nấm men sang người.

cistanche thực vật tăng cường hệ thống miễn dịch
Chúng tôi đã xác định được vai trò kháng vi-rút của yếu tố phiên mã HSF1 được bảo tồn cùng với phản ứng căng thẳng do ức chế protein do LA gây ra liên quan đến sự tích tụ Hsp104-tiêu điểm GFP, một dấu hiệu kích hoạt HSF1-của các tập hợp protein gây độc tế bào. Những kết quả này hỗ trợ mô hình trong đó sinh bệnh học LA là do stress gây độc cho protein. Chúng tôi cũng phát hiện ra chức năng kháng virus của phức hợp SAGA, phức hợp này đã được chứng minh là hoạt động như một chất đồng hoạt hóa cảm ứng gen mục tiêu Hsf1 sau sốc nhiệt (65, 66). Những quan sát này cho thấy rằng mức LA cao dẫn đến sự kích hoạt phụ thuộc SAGA của gen mục tiêu Hsf1, sau đó thực hiện chức năng chống vi-rút, làm sáng tỏ chương trình biểu hiện gen kháng vi-rút tiềm năng trong nấm men vừa chớm nở. Mô hình này đưa ra nhiều dự đoán có thể kiểm chứng được và có thể liên quan đến sinh bệnh học của virus ở các sinh vật khác. Thật vậy, HSF1 ở người cũng kiểm soát sự biểu hiện của các yếu tố điều hòa phân giải protein. Mặc dù các chức năng chống vi-rút của HSF1 ở người đã được mô tả, nhưng vẫn chưa rõ vai trò của phản ứng căng thẳng tư thế trong việc này (39). Những phát hiện của chúng tôi làm sáng tỏ một hệ thống mạnh mẽ để phân biệt chức năng chống vi-rút của Hsf1 liên quan đến vai trò của nó trong việc kích hoạt phản ứng căng thẳng do ổn định protein.
người giới thiệu
1. T. Nakayashiki, CP Kurtzman, HK Edskes, RB Wickner, nấm men prion [URE3] và [PSI+] là các bệnh. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 102, 10575–10580 (2005).
2. RB Wickner, T. Fujimura, R. Esteban, Virus và prion của Saccharomyces cerevisiae. Khuyến cáo. Virus Res. 86, 1–36 (2013).
3. T. Fujimura, R. Esteban, Cơ chế bắt nắp ở virus RNA sợi kép LA ở nấm men. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 108, 17667–17671 (2011).
4. JD Dinman, T. Icho, RB Wickner, Một khung dịch mã ribosome -1 trong virus RNA sợi đôi của nấm men tạo thành protein tổng hợp gag-pol. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 88, 174–178 (1991).
5. A. Bernheim và cộng sự, viperin Prokaryotic tạo ra các phân tử kháng virus đa dạng. Thiên nhiên 589, 120–124 (2021).
6. A. Bernheim, R. Sorek, Hệ thống miễn dịch của vi khuẩn: Phòng chống vi-rút như một nguồn lực cộng đồng. Nat. Mục sư Vi sinh. 18, 113–119 (2020).
7. AG Johnson và cộng sự, Những kẻ chủ mưu về vi khuẩn tiết lộ cơ chế chết tế bào cổ xưa. Khoa học 375, 221–225 (2022).
8. BR Morehouse và cộng sự, cảm biến dinucleotide tuần hoàn STING có nguồn gốc từ vi khuẩn. Thiên nhiên 586, 429–433 (2020).
9. G. Ofir và cộng sự, Hoạt động kháng vi-rút của miền TIR của vi khuẩn thông qua các phân tử tín hiệu miễn dịch. Thiên nhiên 600, 116–120 (2021).
10. KM Slavik và cộng sự, các thụ thể giống cGAS cảm nhận RNA và kiểm soát tín hiệu 3'2'-cGAMP ở Drosophila. Bản chất 597, 109–113 (2021).
11. AT Whiteley và cộng sự, Các enzym giống cGAS của vi khuẩn tổng hợp các tín hiệu nucleotide đa dạng. Thiên nhiên 567, 194–199 (2019).
12. HM Burgess, I. Mohr, Cellular 5'-3' mRNA exonuclease Xrn1 kiểm soát sự tích lũy RNA sợi đôi và các phản ứng chống vi-rút. Vi khuẩn chủ tế bào. 17, 332–344 (2015).
13. SC Eckard và cộng sự, Exosome RNA SKIV2L hạn chế việc kích hoạt các thụ thể giống RIG-I. Nat. Miễn dịch. 15, 839–845 (2014).
14. M. Miyashita, H. Oshiumi, M. Matsumoto, T. Seya, DDX60, helicase hộp DEXD/H, là một yếu tố kháng vi-rút mới thúc đẩy tín hiệu qua trung gian thụ thể giống RIG-I. Mol. Tế bào sinh học. 31, 3802–3819 (2011).
15. CS Ng, DM Kasumba, T. Fujita, H. Luo, Đặc tính không gian-thời gian của hoạt động kháng virus của tập hợp XRN1-DCP1/2 chống lại virus RNA tế bào chất để ngăn chặn sự chết tế bào. Sự khác biệt về cái chết của tế bào 27, 2363–2382 (2020).
16. RE Rigby, J. Rehwinkel, Suy thoái RNA trong khả năng miễn dịch chống vi rút và tự miễn dịch. Xu hướng miễn dịch. 36, 179–188 (2015).
17. F. Hiromoto và cộng sự, IL-1beta/ATF{2}}gây ra biểu hiện Ski2 qua trung gian giúp tăng cường sự thoái biến của virus viêm gan B x mRNA. Hóa sinh. Sinh lý. Res. Cộng đồng. 503, 1854–1860 (2018).
18. JT Brown, X. Bai, AW Johnson, Các protein kháng virus nấm men Ski2p, Ski3p và Ski8p tồn tại dưới dạng phức hợp in vivo. RNA 6, 449–457 (2000).
19. DC Masison và cộng sự, Giải mã hệ thống phân hủy cap-mRNA bằng virus RNA sợi đôi và giám sát poly(A)-mRNA bằng hệ thống chống vi-rút nấm men. Mol. Tế bào sinh học. 15, 2763–2771 (1995).
20. C. Schmidt và cộng sự, Cấu trúc cryo-EM của phức hợp helicase ribosome-Ski2-Ski3-Ski8. Khoa học 354, 1431–1433 (2016).
21. AM Searfoss, RB Wickner, 3' poly(A) có thể được cung cấp để dịch thuật. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 97, 9133–9137 (2000).
22. EA Toh, P. Guerry, RB Wickner, các đột biến nhiễm sắc thể siêu sát thủ của Saccharomyces cerevisiae. J. Vi khuẩn. 136, 1002–1007 (1978).
23. A. Zinoviev, RK Ayupov, IS Abaeva, CUT Hellen, TV Pestova, Khai thác mRNA từ Ribosome bị đình trệ tại Khu liên hợp trượt tuyết. Mol. Ô 77, 1340–1349 e1346 (2020).
24. SG Ball, C. Tirtiaux, RB Wickner, Kiểm soát di truyền số lượng bản sao La và L-(Bc) Dsrna trong hệ thống sát thủ của SACCHAROMYCES CEREVISIAE. Di truyền học 107, 199–217 (1984).
25. R. Esteban, L. Vega, T. Fujimura, 20S RNA narnavirus thách thức hoạt tính kháng virus của SKI1/XRN1 ở Saccharomyces cerevisiae. J. Biol. Chem. 283, 25812–25820 (2008).
26. PA Rowley, B. Ho, S. Bushong, A. Johnson, SL Sawyer, XRN1 là yếu tố hạn chế virus đặc trưng cho loài trong nấm men. PLoS Pathog. 12, e1005890 (2016).
27. J. Gao và cộng sự, Sự suy giảm virus Meiotic thông qua con đường apoptotic của tổ tiên. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 116, 16454–16462 (2019).
28. LY Li, X. Luo, X. Wang, Endonuclease G là một DNase apoptotic khi được giải phóng khỏi ty thể. Thiên nhiên 412, 95–99 (2001).
29. BJ Thomson, Virus và apoptosis. Int. J. Exp. Pathol. 82, 65–76 (2001).
30. MD Eastwood, SW Cheung, KY Lee, J. Moffat, MD Meneghini, Sự phá hủy hạt nhân được lập trình trong quá trình tạo giao tử của nấm men. Dev. Ô 23, 35–44 (2012).
31. MD Eastwood, MD Meneghini, Sự phối hợp phát triển của quá trình biệt hóa giao tử với sự chết tế bào được lập trình trong nấm men đang tạo bào tử. Tế bào nhân chuẩn 14, 858–867 (2015).
32. N. Schmidt và cộng sự, Tương tác RNA-protein SARS-CoV-2 trong tế bào người bị nhiễm bệnh. Nat. Vi sinh vật. 6, 339–353 (2021).
33. RW Smith, NK Grey, Protein liên kết với Poly(A) (PABP): Một mục tiêu phổ biến của virus. Hóa sinh. J. 426, 1–12 (2010).
34. R. Grover và cộng sự, Myg1 exonuclease kết hợp các chương trình dịch mã hạt nhân và ty thể thông qua quá trình xử lý RNA. Axit nucleic Res. 47, 5852–5866 (2019).
35. EV Koonin, Một miền cổ xưa được bảo tồn gia nhập siêu họ đang phát triển của các exonuclease 3'-5'. Curr. Biol. 7, R604–606 (1997).
36. M. Szewczyk và cộng sự, REXO2 ở người kiểm soát các RNA ty thể ngắn được tạo ra bởi máy xử lý và phân hủy mtRNA để ngăn chặn sự tích tụ RNA chuỗi kép. Axit nucleic Res. 48, 5572–5590 (2020).
37. Y. Zuo, MP Deutscher, siêu họ Exoribonuclease: Phân tích cấu trúc và phân bố phát sinh loài. Axit nucleic Res. 29, 1017–1026 (2001).
38. EW Trotter, L. Berenfeld, SA Krause, GA Petsko, JV Gray, Protein gấp sai và tăng nhiệt độ gây ra hiện tượng giữ G1 thông qua cơ chế chung phụ thuộc vào yếu tố sốc nhiệt ở Saccharomyces cerevisiae. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 98, 7313–7318 (2001).
39. A. Reyes, AJ Navarro, B. Diethelm-Varela, AM Kalergis, PA Gonzalez, HSF1 có vai trò gì trong nhiễm virus không? FEBS Open Bio 12, 1112–1124 (2022).
40. F. Weber, V. Wagner, SB Rasmussen, R. Hartmann, SR Paludan, RNA sợi đôi được tạo ra bởi virus RNA chuỗi dương và virus DNA nhưng với số lượng không thể phát hiện được bởi virus RNA chuỗi âm. J. Virus. 80, 5059–5064 (2006).
41. S. Welsch và cộng sự, Thành phần và kiến trúc ba chiều của các vị trí lắp ráp và sao chép virus sốt xuất huyết. Vi khuẩn chủ tế bào. 5, 365–375 (2009).
42. I. Fernandez de Castro, R. Tenorio, C. Risco, Các nhà máy sản xuất virus trong thế giới lipid. Curr. Ý kiến. Virus. 18, 20–26 (2016).
43. YX Liu, CL Dieckmann, Sản xuất quá mức các hạt giống virus nấm men do các chủng thiếu nuclease ty thể. Mol. Tế bào sinh học. 9, 3323–3331 (1989).
44. AW Johnson, RD Kolodner, Khả năng gây chết tổng hợp của các đột biến sep1 (xrn1) ski2 và sep1 (xrn1) ski3 của Saccharomyces cerevisiae là độc lập với virus sát thủ và gợi ý vai trò chung của các gen này trong kiểm soát dịch mã. Mol. Tế bào sinh học. 15, 2719–2727 (1995).
45. C. Stark và cộng sự, BioGRID: Kho lưu trữ chung cho các bộ dữ liệu tương tác. Axit nucleic Res. 34, D535–539 (2006).
46. L. Espert và cộng sự, ISG20, một RNase mới do interferon tạo ra đặc hiệu cho RNA chuỗi đơn, xác định một con đường kháng virus thay thế chống lại virus gen RNA. J. Biol. Chem. 278, 16151–16158 (2003).
47. T. Hanekamp, PE Thorsness, YNT20, chất ức chế bỏ qua yme1 yme2, mã hóa exonuclease 3'-5' giả định được định vị trong ty thể của Saccharomyces cerevisiae. Curr. Gen 34, 438–448 (1999).
48. A. van Hoof, P. Lennertz, R. Parker, Ba thành viên được bảo tồn của họ RNase D có các chức năng độc đáo và chồng chéo trong quá trình xử lý các RNA 5S, 5.8S, U4, U5, RNase MRP và RNase P trong nấm men . EMBO J. 19, 1357–1365 (2000).
49. M. Dwivedi, NC Laddha, R. Begum, Mối tương quan giữa biểu hiện MYG1 tăng lên và tính đa hình của chất xúc tiến của nó với sự tiến triển của bệnh và độ nhạy cảm cao hơn ở bệnh nhân bạch biến. J. Dermatol. Khoa học. 71, 195–202 (2013).
50. K. Kingo và cộng sự, MYG1, một gen mới liên quan đến tế bào hắc tố, có biểu hiện cao ở bệnh bạch biến. J. Dermatol. Khoa học. 44, 119–122 (2006).
51. Phức hợp IB Andika, A. Jamal, H. Kondo, N. Suzuki, SAGA làm trung gian cho quá trình điều hòa tăng phiên mã của quá trình làm im lặng RNA kháng virus. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 114, E3499–E3506 (2017).
52. SG Sobel, SL Wolin, Hai protein chứa mô-đun men La là các protein gắn RNA liên kết với polyribosome. Mol. Biol. Ô 10, 3849–3862 (1999).
53. A. Proweller, JS Butler, Sự kết hợp ribosome của protein liên kết poly(A) trong Saccharomyces cerevisiae thiếu poly(A). J. Biol. Chem. 271, 10859–10865 (1996).
54. DE Gordon và cộng sự, Bản đồ tương tác protein SARS-CoV-2 cho thấy mục tiêu tái sử dụng thuốc. Thiên nhiên 583, 459–468 (2020).
55. O. Brandman và cộng sự, Một phức hợp kiểm soát chất lượng gắn với ribosome gây ra sự xuống cấp của các peptide mới sinh và căng thẳng dịch mã tín hiệu. Ô 151, 1042–1054 (2012).
56. J. Anckar, L. Sistonen, Điều chỉnh chức năng HSF1 trong phản ứng stress nhiệt: Những tác động đến lão hóa và bệnh tật. Annu. Mục sư Hóa sinh. 80, 1089–1115 (2011).
57. J. Li, J. Labbadia, RI Morimoto, Xem xét lại HSF1 về căng thẳng, sự phát triển và sức khỏe cơ thể. Xu hướng tế bào Biol. 27, 895–905 (2017).
58. PK Sorger, HR Pelham, Tinh chế và mô tả đặc tính của protein liên kết nguyên tố sốc nhiệt từ nấm men. EMBO J. 6, 3035–3041 (1987).
59. EJ Solis và cộng sự, Xác định chức năng thiết yếu của nấm men Hsf1 cho thấy một chương trình phiên mã nhỏ gọn để duy trì sự ổn định protein của sinh vật nhân chuẩn. Mol. Ô 63, 60–71 (2016).
60. JR Glover, S. Lindquist, Hsp104, Hsp70 và Hsp40: Một hệ thống đi kèm mới giúp giải cứu các protein được tổng hợp trước đó. Ô 94, 73–82 (1998).
61. Z. Li và cộng sự, Khám phá có hệ thống chức năng gen nấm men thiết yếu với các đột biến nhạy cảm với nhiệt độ. Nat. Công nghệ sinh học. 29, 361–367 (2011).
62. RY Zhao, Men nghiên cứu virus. Microb. Ô 4, 311–330 (2017).
63. T. Panavas, E. Serviene, J. Brasher, PD Nagy, Màn hình toàn bộ bộ gen của nấm men cho thấy các bộ gen chủ khác nhau ảnh hưởng đến sự sao chép của virus RNA. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 102, 7326–7331 (2005).
64. Y. Ohtake, RB Wickner, Sự lan truyền của virus nấm men phụ thuộc rất nhiều vào nồng độ tiểu đơn vị ribosome 60S tự do. Mol. Tế bào sinh học. 15, 2772–2781 (1995).
65. Các phức hợp biến đổi nhiễm sắc thể SB Kremer, DS Gross, SAGA và Rpd3 điều chỉnh linh hoạt cấu trúc và biểu hiện gen sốc nhiệt. J. Biol. Chem. 284, 32914–32931 (2009).
66. MD Leach và cộng sự, Hsf1 và Hsp90 phối hợp việc tái cấu trúc phiên mã toàn cầu phụ thuộc vào nhiệt độ và kiến trúc nhiễm sắc thể ở Candida albicans. Nat. Cộng đồng. 7, 11704 (2016).
67. CS Sitron, JH Park, JM Giafaglione, O. Brandman, Tập hợp các đuôi CAT ngăn chặn sự phân hủy của chúng và gây độc tính protein ở S. cerevisiae. PLoS One 15, e0227841 (2020).
68. L. Magtanong và cộng sự, Mạng lưới tương tác di truyền ức chế liều lượng nâng cao sơ đồ nối dây chức năng của tế bào. Nat. Công nghệ sinh học. 29, 505–511 (2011).
69. V. Bilanchone và cộng sự, Ty3 retrotransposon chiếm quyền điều khiển các cơ quan xử lý RNA của nấm men giao phối để lây nhiễm các bộ gen mới. Xin vui lòng Genet. 11, e1005528 (2015).
70. L. Ruan và cộng sự, Cân bằng protein tế bào thông qua việc nhập các protein chưa được gấp nếp vào ty thể. Thiên nhiên 543, 443–446 (2017).


