GRP78 biểu hiện quá mức kích hoạt PINK1-Giảm phân bảo vệ thần kinh qua trung gian IP3R Phần 2
Aug 01, 2024
2.5. Tây Blot
Chúng tôi đã gây mê sâu cho chuột bằng Dolethal (n=4) ở tốc độ 7 dpi để thu được các đoạn tủy sống L4–L5 (dài 5-mm) để phân tích vết rạn phía tây. Chúng tôi đông lạnh nhanh các mẫu trong nitơ lỏng.
Trong những năm gần đây, ngày càng có nhiều kết quả nghiên cứu chỉ ra rằng có mối quan hệ chặt chẽ giữa quá trình thấm protein và trí nhớ. Làm mờ protein là một kỹ thuật phân tích để phát hiện biểu hiện protein, được sử dụng rộng rãi trong nghiên cứu khoa học thần kinh.
Sự kết nối giữa các tế bào thần kinh có liên quan mật thiết đến việc lưu trữ trí nhớ. Phương pháp làm mờ protein có thể phát hiện trạng thái kết nối giữa các tế bào thần kinh và sự biểu hiện của protein trước và sau khớp thần kinh, tiết lộ thêm vai trò quan trọng của protein trong việc hình thành và lưu trữ trí nhớ.
Các nghiên cứu đã phát hiện ra rằng sự biểu hiện của protein tế bào thần kinh tiền synap có liên quan chặt chẽ đến sự hình thành và lưu trữ trí nhớ. Ví dụ, trong quá trình học tập và trí nhớ, tế bào thần kinh thay đổi sự biểu hiện của protein tiền synap và sự thay đổi này có liên quan đến việc hình thành và lưu trữ ký ức mới. Ngoài ra, một số nghiên cứu còn phát hiện ra rằng những thay đổi trong biểu hiện của một số protein có liên quan đến các bệnh thoái hóa thần kinh như bệnh Alzheimer.
Do đó, việc làm mờ protein có thể cung cấp sự hiểu biết sâu sắc về trạng thái kết nối giữa các tế bào thần kinh và những thay đổi trong biểu hiện của các protein liên quan, tiết lộ cơ chế phân tử của tế bào thần kinh. Điều này có ý nghĩa rất lớn trong việc nghiên cứu cơ chế hình thành trí nhớ và các bệnh thoái hóa thần kinh.
Nói tóm lại, mối quan hệ giữa quá trình làm mờ protein và trí nhớ cho thấy vai trò của protein trong mối liên hệ giữa tế bào thần kinh và việc lưu trữ trí nhớ. Điều này cung cấp những ý tưởng và hướng đi mới để nghiên cứu cơ chế hình thành trí nhớ và các bệnh thoái hóa thần kinh. Chúng ta hãy tích cực thúc đẩy nghiên cứu khoa học thần kinh và đóng góp cho sức khỏe và tuổi thọ! Có thể thấy rằng chúng ta cần cải thiện trí nhớ, và Cistanche có thể cải thiện trí nhớ đáng kể vì nó có tác dụng chống oxy hóa, chống viêm và chống lão hóa, có thể giúp giảm các phản ứng oxy hóa và viêm trong não, từ đó bảo vệ sức khỏe hệ thần kinh. hệ thống. Ngoài ra, Cistanche còn có thể thúc đẩy sự phát triển và sửa chữa các tế bào thần kinh, từ đó tăng cường khả năng kết nối và chức năng của mạng lưới thần kinh. Những tác động này có thể giúp cải thiện trí nhớ, khả năng học tập và tốc độ tư duy, đồng thời cũng có thể ngăn ngừa sự xuất hiện của rối loạn chức năng nhận thức và các bệnh thoái hóa thần kinh.

Bấm vào biết cách cải thiện chức năng não
Các mẫu được lưu trữ hoặc xử lý thêm bằng cách đồng nhất hóa trong dung dịch đệm ly giải (20 mM HEPES, pH 7,7, 251 mM sucrose, 1 mM EDTA, 1 mM EGTA và hỗn hợp protease (Sigma-Aldrich) và chất ức chế phosphatase (Roche, Basel, Thụy Sĩ) ) với chất đồng nhất Potter trên đá.
Sau khi ly tâm các chất ly giải ở tốc độ 800 × g trong 20 phút ở 4◦C, chúng tôi đã thu được phần nổi phía trên dưới dạng phần sau hạt nhân và định lượng protein bằng xét nghiệm BCA (Pierce Chemical Co.).
Để làm mờ vết rạn da ở phương Tây, chúng tôi đã nạp 30 µg phân đoạn sau hạt nhân của các phân đoạn L4–L5 từ mỗi con vật lên gel SDS-polyacrylamide 12% để thực hiện phân tách điện di của các protein, sau đó chuyển sang màng PVDF trong hệ thống BioRadcuvette trong 25 mM Tris, pH 8,4, glycine 192 mM, metanol 20% (v/v).
Chúng tôi chặn các màng chủ đề bằng 5% BSA trong PBS cộng với 0,1% Tween-20 trong 1 giờ ở nhiệt độ phòng và sau đó ủ ở 4 ◦C qua đêm với kháng thể chính: kháng chuột- -actin ( 1:10000; SigmaAldrich), kháng chuột GRP78 (1:500, Sigma-Aldrich), kháng CV chuột (1:1000, Invitrogen), kháng HSP60 của thỏ (1:500, Kháng thể trực tuyến), kháng chuột NDUFA9 (1:1000, Invitrogen), anti-OPA1 của chuột (1:1000, BD Biosciences), anti-Parkin của thỏ (1:500, Abcam, Cambridge,UK), anti-PINK1 của chuột (1:500, Abcam), thỏ chống NRF2 (1:500, Abcam), chống MNF2(1:500, Abcam), thỏ chống GRP75 (1:500, Abcam).
Sau vài lần rửa, màng được ủ trong 2 giờ với kháng thể thứ cấp thích hợp được kết hợp với horseradishperoxidase (1:5000, Vector). Màng này được tạo hình bằng cách sử dụng hỗn hợp phát quang hóa học 1:1 (luminol 0,5 M, axit p-coumaric 79,2 mM, Tris-HCl 1 M, pH 8,5) và (hydroperoxide 8,8 M, Tris-HCl 1 M; pH 8,5), và hình ảnh được chụp bằng bộ máy Gene Genome và được phân tích bằng phần mềm Gene Snap và Gene Tools (Syngene).
2.6. Mô hình trong ống nghiệm
Các tế bào NSC34 được nuôi cấy trong môi trường glucose trung bình cao đã được cải tiến của Eagle (DMEM, Biochrom, Cambridge, UK) được bổ sung 10% huyết thanh bò bào thai (Sigma-Aldrich), 100 đơn vị/mLpenicillin và dung dịch penicillin/streptomycin 0,5 X (Sigma-Aldrich) và được duy trì trong tủ ấm được làm ẩm ở nhiệt độ 37 ◦C dưới 5% CO2, về cơ bản như đã mô tả trước đây [26].
Sau 4 ngày nuôi cấy tế bào mà không thay đổi môi trường, các tế bào NSC34 có kiểu hình giống biệt hóa đặc trưng bởi sự hiện diện của các tế bào thần kinh dài. Vào ngày thứ 4, thuốc được thêm vào tế bào. Các dung dịch Tun (Sigma-Aldrich, Missouri, USA) và EFV (Bristol-Myers Squibb, New York, USA) được điều chế ở nồng độ 10X và hòa tan trong DMEM.
Sau 24 giờ, đánh giá khả năng sống của tế bào bằng cách ủ tế bào với dung dịch MTT 4 mg/mL trong 3 giờ. Các tinh thể formazan màu xanh lam hình thành được hòa tan trong DMSO và độ hấp thụ ở bước sóng 570nm được đo bằng đầu đọc vi bản (Elx800, Bio-tek, Winooski, VT, USA).
2.7. Nhiễm trùng hạt nhân
Chúng tôi đã truyền vào một triệu tế bào với 2 µg plasmid để biểu hiện GFP, GRP78, HAPARK, chuột sh-eGFP, chuột sh-PINK1 (ID 68943, Tebu-bio), chuột sh-Hspa5 (ID 14828, Tebu-bio) và /hoặc chuột sh-IP3R (ID 16440, Tebu-bio) sử dụng Amaxa Nucleofector II TM (Lonza, Basel, Thụy Sĩ) và bộ Nucleofactor V (Lonza) theo khuyến nghị của nhà sản xuất.

Để phân tích tế bào học tĩnh, chúng tôi đã gieo mầm các tế bào vào các tấm giếng {{0}}được phủ collagen 10%. Sau khi nuôi cấy, chúng tôi cố định tế bào bằng 4% PFA, rửa hai lần bằng PBS và lưu trữ hoặc sau đó bổ sung đệm chặn chứa PBS 0,3% (v/v)Triton X-100 và 10% huyết thanh bào thai bò. Sau 3 ngày nuôi cấy tế bào, thuốc hòa tan trong DMEM được bổ sung vào.
Đối với những thử nghiệm này, chúng tôi đã sử dụng 1 µM Tun (Sigma-Aldrich), 10 µMCCCP (Sigma-Aldrich), 5 µM CsA (Sigma-Aldrich) hoặc 10 µM BAPTA-AM (Sigma -Aldrich). Sau 5 giờ sau khi điều trị, chúng tôi đã cố định các tế bào hóa mô miễn dịch với 4% PFA hoặc đồng nhất hóa chúng trong dung dịch đệm RIPA đã sửa đổi (50 mM Tris-HCl, pH 7,5.150 mM NaCl, 1 mM EGTA , 1% NP-40, 0,5% natri deoxycholate, 0,1% SDS, cocktail protease và phosphatase) để kiểm tra miễn dịch. Hóa mô miễn dịch được thực hiện bằng cách rửa mẫu hai lần bằng PBS và ủ với đệm chặn chứa PBSplus 0,3% (v/v) Triton X-100 và 10% huyết thanh bào thai bò.
Chúng tôi đã ủ các kháng thể cơ bản sau: anti-IP3R của thỏ (1:200, Abcam), anti-HA của chuột (1:2000, Abcam), anti-GRP78 của chuột (1:200, Sigma-Aldrich) và anti-HSP60 của thỏ (1:500, Kháng thể-trực tuyến). Để đánh giá khả năng tồn tại của MTT như mô tả ở trên, chúng tôi đã dừng điều trị trong 24 giờ.
2.8. Đo lường sự sản xuất Superoxide của ty thể và ∆ψM
Các tế bào được ủ với 2,5 µM MitoSOX để phân tích superoxide hoặc với 2,5 µMTMRM để phân tích ∆ψM, cả từ Máy thăm dò phân tử và Invitrogen trong 30 phút điều trị cuối cùng. Huỳnh quang được phát hiện bằng kính hiển vi Olympus IX81 và định lượng bằng phần mềm tế bào học tĩnh.
2.9. Đo điện hóa mức tiêu thụ oxy
Các tế bào (1 × 10⁶ trên 1 mL trong HBSS) được khuấy trộn trong buồng kín khí ở 37 ◦C. Các phép đo được thực hiện bằng điện cực O2 loại Clark (Rank Brothers, Cambridge, UK) và được ghi lại bằng dữ liệu Dup.18 thiết bị thu thập dữ liệu (WPI) ngay sau 5-xử lý bằng xe hoặc Tun.
2.10. Phân số ty thể và tế bào học
Các tế bào được đồng nhất hóa trong dung dịch đệm ly giải (10 mM HEPES, pH 7,4, 1 mM EGTA, 250mM sucrose và hỗn hợp gồm protease (Sigma-Aldrich) và chất ức chế phosphatase (Roche)) bằng chất đồng nhất Potter trên đá.
Sau khi ly tâm chất ly giải ở tốc độ 2000× g trong 5 phút, chất nổi phía trên được ly tâm ở tốc độ 10.000× g trong 12 phút. Phần nổi phía trên được coi là phần hòa tan (S2) và chứa protein tế bào và microsome.
Thepellet (P2) là phần ty thể đã được làm giàu, được treo lại trong bộ đệm RIPA đã sửa đổi (50 mM Tris-HCl, pH 7,5, 150 mM NaCl, 1 mM EGTA, 1% NP{{8 }}, 0,5% natri deoxycholate, 0,1% SDS, cocktail protease và phosphatase) và nồng độ protein được xác định bằng xét nghiệm BCA. Các mẫu sau đó được xử lý bằng Western blot.
2.11. Kính hiển vi điện tử truyền qua
Chúng tôi nhấn chìm các đoạn L5 của tủy sống (1-mm) trong dung dịch cố định 2% (w/v) PFA và 2,5% (v/v) glutaraldehyde (loại EM) trong 0.1 M PBS, pH 7,4 và đặt chúng trên bệ bập bênh trong 2 giờ, sau đó cố định trong PFA 1% (w/v) và sau đó được cố định sau bằng 1% (w/v) osmium tetroxide (Phòng thí nghiệm TAAB ) chứa 0,08% (w/v) kalihexacyanoferrate (Sigma-Aldrich) trong PBS trong 2 giờ.
Chúng tôi thực hiện bốn lần rửa bằng nước khử ion và khử nước tuần tự trong axeton. Tất cả các quy trình được thực hiện ở 4 ◦C, như được mô tả trước đây [33]. Chúng tôi nhúng các mẫu vào nhựa EPON và trùng hợp ở 60 ◦C trong 48 giờ.
Các mẫu được xử lý để thu được các phần bán mỏng (1 µm) bằng máy cắt vi mô Leicaultracut UCT, được nhuộm bằng dung dịch xanh toluidine 1% (w/v) và kiểm tra bằng kính hiển vi quang học để xác định các vùng sừng bụng được làm giàu bằng MN.
Các phần siêu mỏng (70nm) được cắt bằng dao kim cương, đặt trên lưới tráng và đối chiếu với dung dịch uranyl acetate thông thường và dung dịch chì citrate của Reynolds.
Cuối cùng, chúng tôi quan sát các phần bằng kính hiển vi điện tử truyền qua (Jeol 1400) được trang bị Camera GatanUltrascan ES1000CCD. Chúng tôi đã chọn ba lát cho mỗi điều kiện, phân tích ba MN trên mỗi phần và đo diện tích hạt nhân so với tổng diện tích của MN bằng công cụ ImageJ.

2.12. Tin sinh học và thống kê
Chúng tôi đã sử dụng các phân tích phương sai (ANOVA) để so sánh các giá trị giữa các nhóm thử nghiệm khác nhau để tìm dữ liệu đáp ứng giả định về tính quy tắc. Sự khác biệt giữa các nhóm được phân tích bằng cách sử dụng ANOVA một chiều, sau đó là bài kiểm tra đa phạm vi sau đại học của Tukey hoặc sử dụng bài kiểm tra t của Sinh viên. Tất cả các phân tích thống kê được thực hiện bằng phần mềm GraphPad Prism5 (n=3–5; p < 0.05 về mức ý nghĩa).
3. Kết quả
3.1. Chữ
3.1.1. Phân tích proteomic của sự biểu hiện quá mức GRP78 cho thấy ty thể là mục tiêu chính
Để xác định các cơ chế phân tử dẫn đến bảo vệ thần kinh qua trung gian biểu hiện quá mức GRP78, chúng tôi đã thực hiện phân tích protein không có nhãn so sánh để xác định cả sự khác biệt về số lượng và chất lượng giữa các động vật bị tổn thương RA bị nhiễm adenovirus do biểu hiện quá mức GRP78 (Ad-GRP78), trước đây được coi là có tác dụng bảo vệ thần kinh của MN, hoặc beta-galactosidase (Ad-ß-Gal) làm đối chứng [20].
Bảy ngày sau chấn thương (dpi) là thời điểm được chọn để phân tích theo các nghiên cứu trước đây được thực hiện trong phòng thí nghiệm của chúng tôi [20,25]. Trong một so sánh trước đây giữa mô hình tái tạo sau phẫu thuật cắt sợi trục xa và khâu dây thần kinh tọa so với mô hình RA thoái hóa của chúng tôi, chúng tôi đã quan sát thấy rằng các sự kiện báo hiệu tương tự cho đến 7 dpi, khi các sự kiện thoái hóa phân kỳ xuất hiện sau RA [20,25].
Phân tích không có nhãn LC-MS/MS về các phân số sau hạt nhân từ các đoạn tủy sống L4-L5 đã dẫn đến việc xác định 1420 protein, với ít nhất hai peptide cho mỗi protein như đã được báo cáo trước đây cho các mẫu và nghiên cứu khác [25] .
Tổng cộng có 566 và 732 protein hoặc peptide đã bị thay đổi đáng kể do biểu hiện quá mức Ad-GRP78 hoặc Ad-ß-Gal ở động vật bị tổn thương RA so với động vật bị tổn thương RA không bị nhiễm vi-rút (p < 0 .05) (Bảng S1 và S2).
Chúng tôi đã so sánh cả hai danh sách và nhận thấy rằng 220 đã bị thay đổi duy nhất do biểu hiện quá mức Ad-GRP78 (Bảng S3). Chú thích chức năng của các protein này bằng cách sử dụng công cụ Cơ sở dữ liệu chú thích, trực quan hóa và khám phá tích hợp (DAVID) cho phép chúng tôi xác định các hàm sinh học quan trọng nhất trong tập dữ liệu (FDR < 0,05) [34,35].
Sự biểu hiện quá mức của GRP78 dẫn đến sự khác biệt về mức độ protein liên quan đến các quá trình, chức năng và thành phần của ty thể (Bảng S4A–C, Hình S1A–C). Các thuật ngữ Gene Onology (GO) và phân tích làm giàu con đường KEGG của những dữ liệu này cho thấy rằng ở động vật bị nhiễm Ad-GRP78 có sự giảm đáng kể về mức độ của nhiều protein có chức năng ty thể, bao gồm các protein từ mặt ngoài và bên trong ty thể, protein của phức hợp hô hấp, và protein ma trận.
Chúng tôi đã xác nhận sự khác biệt về mức độ protein được tiết lộ trong danh sách protein, chẳng hạn như GRP75, được điều hòa lên (p < 0.05) và tiểu đơn vị của phức hợp V (CV ), được điều hòa xuống (p=0.03) trong các nhóm GRP78 như mong đợi (Hình 1A).
Trong toàn bộ danh sách, chất được điều hòa giảm nhiều nhất là 2-oxoglutarate/malatecarrier protein OGC (SCL25A11), MT-ND3 (một chất ức chế khối u tham gia vào quá trình vận chuyển themalate-aspartate và tái tạo nhóm NADH trong ma trận ty thể để cho phép phức hợp I hoạt động), tiểu đơn vị NADH dehydrogenase 3 của phức hợp I, gammaaminobutyric acid aminotransferase ABAT và tiểu đơn vị ubiquinol-cytochrome C reductase của phức hợp III. Ngược lại, rất ít protein được điều hòa lại (Hình 1B).
Protein được điều hòa một lần là GRP78 như mong đợi, và các protein được điều hòa tăng khác là chất vận chuyển axit amin EAAT2, chủ yếu nằm trong màng huyết tương và đôi khi trong ty thể ở các khớp thần kinh bị kích thích, và hydroxyacyl-CoA dehydrogenase HADHA, xúc tác cho ba bước cuối cùng của beta ty thể -oxy hóa axit béo chuỗi dài.
Chúng tôi đã mở rộng phân tích để điều tra xem liệu các protein khác trong các protein liên quan đến chức năng ty thể hoặc ty thể có bị sửa đổi khỏi danh sách protein để xác nhận ảnh hưởng của ty thể chức năng hay không (Hình 1C).
Chúng tôi quan sát thấy chứng teo quang GTPase 1 (OPA1) liên quan đến thuốc nổ được bảo tồn ty thể, có liên quan đến phản ứng tổng hợp [36], đã bị điều hòa quá mức (p < 0.1); LONP1, một protease phụ thuộc ATP làm trung gian cho quá trình phân hủy có chọn lọc của các polypeptide bị gấp sai, có xu hướng tăng lên, nhưng không thấy sự khác biệt về mức độ ubiquinone NDUFA9, yếu tố phiên mã NRF2, điều chỉnh các gen có chứa các yếu tố phản ứng chống oxy hóa hoặc thuốc nổ khác liên quan đến GTPase liên quan đến truyền dịch, chẳng hạn như mitofusin 2 (MFN2) [36].
Một bản tóm tắt toàn diện về những thay đổi được tìm thấy trong ty thể được trình bày trong sơ đồ ở Hình 1D. Động lực học của ty thể rất quan trọng đối với các phản ứng căng thẳng vì ty thể bị hư hỏng có thể hợp nhất để trao đổi vật chất và sự phân hạch của ty thể cho phép phân tách ty thể bị tổn thương và quá trình phân bào tiếp theo [37].
Xem xét rằng số lượng lớn các protein được điều hòa quá mức định vị tại ty thể và không có thay đổi rõ ràng nào được quan sát liên quan đến hoạt động tổng hợp của ty thể bằng cách phân tích MFN2 và tỷ lệ của các dạng L/S OPA1 (Hình 1C), chúng tôi đã nghiên cứu các dấu hiệu liên quan đến quá trình nguyên phân.
Về mặt kinh điển, sự thoái hóa ty thể phụ thuộc vào autophagy xảy ra sau quá trình khử cực và nó thường được kích hoạt bởi sự tích tụ tăng lên của phosphatase và tensinhomolog (PTEN) giả định kinase 1 (PINK1) ở màng ngoài ty thể.
Sau đó, E3 ubiquitin-protein ligase Parkin ở giữa vòng được sử dụng để đánh dấu protein màng ngoài ty thể của ty thể bị khử cực bằng quá trình phổ biến [38–41]. Phần trên của Hình 2A cho thấy không có thay đổi nào về mức độ Parkin nhưng giảm đáng kể lượng PINK1 có chiều dài đầy đủ do chấn thương RA tạo ra ở đoạn tủy sống L{10}}L5 cùng bên đối với mức kiểm soát ở mức 7 dpi. Ngược lại, sự biểu hiện quá mức của GRP78 làm giảm Parkin nhưng tăng gấp đôi mức PINK1 sau RA so với sự biểu hiện kiểm soát của protein không liên quan -Gal (Hình 2A, phía dưới).
Sự điều hòa của PINK1 có chiều dài đầy đủ phù hợp với việc gây ra hiện tượng ty thể [42] và việc giảm Parkin có thể liên quan đến trạng thái phá hủy cơ quan nâng cao như được quan sát bởi phần còn lại của protein ty thể.
Chúng tôi nghiên cứu thêm về quá trình đồng địa hóa của ty thể và các protein liên quan đến vi ống 1A/1B chuỗi nhẹ 3 (LC3), một thành phần chính của bộ máy tự thực bào vĩ mô cốt lõi và cần thiết cho quá trình giảm phân [43].
Bằng cách sử dụng kính hiển vi đồng tiêu, chúng tôi đã quan sát thấy sự gia tăng đáng kể trong quá trình đồng địa hóa của ty thể, được dán nhãn bằng chất chống COX IV, với puncta dương tính LC3- sau RA chỉ ở các MN bị hư hỏng biểu hiện quá mức GRP78 ở mức 7 dpi (Hình 2B).
Chúng tôi xác nhận sự tồn tại của hiện tượng ăn nguyên bào ở các MN bị kích thích chỉ khi biểu hiện quá mức GRP78 bằng cách phân tích các mẫu sử dụng kính hiển vi điện tử truyền qua.
Chúng tôi đã quan sát thấy nhiều không bào có ty thể chìm trong đó, một dấu hiệu đặc trưng của bệnh ty thể [37], giống như ty thể và một số ERcisternae có mối liên hệ chặt chẽ với ty thể trong MN từ động vật Ad-GRP78, nhưng chúng tôi không phát hiện thấy chúng trong Ad- -Gal RA-bị thương mẫu chuột ở mức 5 dpi (Hình 2C).
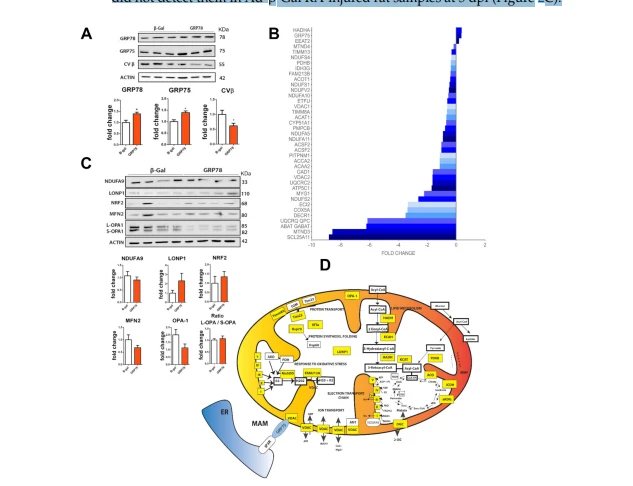
Hình 1. Sự biểu hiện quá mức GRP78 ở động vật bị tổn thương RA nhắm vào các protein ty thể. (A) Biểu đồ thanh và biểu đồ miễn dịch hiển thị các thay đổi trung bình về nếp gấp (± SEM) của mức GRP78, GRP75 và protein CV trong các đoạn tủy sống L4-L5 trong GRP78 so với các đoạn tủy sống khác.
-Gal biểu hiện quá mức những con chuột bị RA bị thương 7 dpi. Các cấp độ đã được chuẩn hóa thành các giá trị Actin (n=4; * p < 0.05 so với Ad- -Gal, bài kiểm tra t của Học sinh). (B) Biểu đồ về sự thay đổi nếp gấp của protein ty thể thu được bằng phân tích protein của các đoạn tủy sống L4-L5 ở động vật bị tổn thương RA biểu hiện quá mức GRP78 so với nhóm Ad- -Gal thêm 7 dpi. (C) Biểu đồ thanh và biểu đồ miễn dịch hiển thị các thay đổi trung bình về nếp gấp (± SEM) của NDUFA9, LONP1, NRF2, MFN2, OPA-1 được chuẩn hóa thành Actin. (Không có sự khác biệt đáng kể giữa các nhóm. Bài kiểm tra t của sinh viên). (D) Sơ đồ ty thể với các protein bị thay đổi do biểu hiện quá mức của GRP78 trong các đoạn tủy sống L4-L5 từ động vật bị tổn thương RA được đánh dấu bằng màu vàng (giảm) hoặc xanh lam (tăng) ở 7dpi.

Hình 2. Mitophagy được điều biến in vivo sau RA ở những con chuột biểu hiện quá mức GRP78. ( A ) Các chất miễn dịch và biểu đồ thanh tương ứng để phân tích sự thay đổi lần lượt của PINK1 và PARK về mức độ protein (có nghĩa là ± SEM) được chuẩn hóa thành mức Actin, trong các đoạn tủy sống L4-L5 của bệnh nhân bị thương RA so với bệnh nhân bị tổn thương RA.
control (trên cùng) hoặc từ nhóm Ad{0}}Gal và Ad-GRP78 (dưới cùng) 7 dpi. (n=4; * p < 0,05, t-test của sinh viên). (B) Bên trái, ảnh vi mô của các MN đại diện tại vị trí cùng bên từ các động vật bị thương RA đã được tiêm AAVrh10-GFP hoặc AAVrh10-GRP78 vào bên trong vỏ ở mức 7 dpi. Các mẫu được nhuộm cho COX IV (màu đỏ) và LC3 (màu xanh lá cây) và được thay thế bằng huỳnh quangNissl (màu xanh).
Thanh tỷ lệ=10 µm và thu phóng kỹ thuật số trong phần lồng ghép 10X.
Lưu ý rằng quá trình đồng địa hóa chỉ được quan sát thấy trong nhóm AAVrh10-GRP78. Bên phải, biểu đồ thanh hiển thị phân tích % số điểm đồng địa hóa của COX IV và LC3. Trung bình ± SEM của quá trình đồng địa hóa COX IV và LC3 (n=4; ** p < 0.01, Bài kiểm tra t của sinh viên). (C) Hình ảnh kính hiển vi điện tử truyền qua đại diện trong đó ty thể được phân biệt trong các MN của dây cột sống: a, hình ảnh tế bào chất của MN cho thấy động vật kiểm soát ty thể; b, hình ảnh tế bào chất MN của chuột bị RA bị thương từ nhóm Ad{12}}gal; c, hình ảnh tế bào chất MN từ chuột bị tổn thương RA từ nhóm Ad-GRP78 với một số ty thể bị nhấn chìm được biểu thị bằng dấu hoa thị màu đỏ; d, hình ảnh có độ phóng đại cao hơn được hiển thị trong (C) chỉ ra một tiếp xúc ty thể lớn và ER. Thanh tỷ lệ được chỉ định trong hình.
Nhìn chung, những kết quả này cho thấy rằng sự biểu hiện quá mức của GRP78 có thể gây ra các MN bị ngắt kết nối mitophagyin sau RA và nó có thể thúc đẩy bảo vệ thần kinh.
3.1.2. Sự biểu hiện quá mức GRP78 phục hồi chức năng ty thể bị hư hỏng
Sau đó, chúng tôi đã nghiên cứu thêm về tác động của sự biểu hiện quá mức GRP78 đối với ty thể bằng cách sử dụng mô hình căng thẳng ER trong ống nghiệm vì sự xúc phạm này xuất hiện sớm sau chấn thương RA in vivo như đã báo cáo trước đây [20,26] và đây là một phương pháp đáng tin cậy để sàng lọc các tác nhân bảo vệ thần kinh mới [2,44] ].
Mô hình này sử dụng tunicamycin (Tun), một chất gây căng thẳng ER gây ra sự hình thành các chất trung gian N-acetylglucosamine-lipid, do đó ngăn chặn quá trình glycosyl hóa các protein mới được tổng hợp và dẫn đến các protein bị gấp sai. Chúng tôi đã sử dụng điều đó vì con đường bài tiết bị dừng lại cũng đã được báo cáo là chìa khóa trong quá trình thoái hóa thần kinh sau RA [26].
Trước tiên, chúng tôi đã xác minh rằng quá trình nucleofection của các tế bào giống NSC34motoneuron với một vec tơ thích hợp đã dẫn đến việc tạo ra GRP78 (Hình 3A). Trong các tế bào này, sự biểu hiện của GRP78 đã tăng cường đáng kể tỷ lệ sống sót trong môi trường chứa Tun (Hình 3B).
Mặc dù phương pháp điều trị bằng Tun thường tự tạo ra GRP78, nhưng sự biểu hiện quá mức nội sinh này diễn ra khá muộn (khoảng 24 giờ) (Hình S2). Chúng tôi cũng tự hỏi liệu chúng tôi có thể xác định xem liệu sự biểu hiện quá mức của GRP78 có tác dụng bảo vệ thần kinh trong một mô hình in vitro khác mà trước đây chúng tôi đã báo cáo là tái tạo một số đặc điểm của cái chết MN sau chấn thương RA hay không [26].
Mô hình này dựa trên tổn thương khung tế bào do nocodazole gây ra, gây cản trở quá trình trùng hợp của vi ống. Biểu hiện GRP78 làm tăng khả năng sống sót của các tế bào được nuôi cấy với sự hiện diện của nocodazole (Hình 3B).
Sau đó, chúng tôi đánh giá chức năng của ty thể bằng cách đo sự tạo ra các loại oxy phản ứng (ROS) trong ty thể bằng MitoSOX, điện thế màng ty thể (∆ψm) bằng cách sử dụng tetramethylrhodamine methyl ester (TMRM) và tốc độ tiêu thụ O2, trong các tế bào NSC34 của chúng tôi chịu áp lực ER có hoặc không có biểu hiện quá mức GRP78.
Để kiểm soát dương tính, chúng tôi đã sử dụng efavirenz (EFV), một tác nhân gây độc tế bào làm thay đổi cả ba thông số [45]. Chúng tôi quan sát thấy mức độ MitoSOX tăng dần sau khi bổ sung Tun, đạt ý nghĩa thống kê sau 24 giờ và việc tạo ra ROS đã tăng đáng kể trong các tế bào được xử lý bằng EFV kể từ lần xử lý sau giờ đầu tiên đối với các biện pháp kiểm soát được xử lý bằng phương tiện (Hình S3A).

Sự biểu hiện quá mức của GRP78 dẫn đến mức độ ty thể ROSin thấp hơn đáng kể so với các tế bào biểu hiện GFP vào lúc 24 giờ sau khi điều trị bằng Tun hoặc EFV (Hình 3C). ∆ψm đã bị phá hủy sau 5 và 24 giờ điều trị bằng Tun và sau 24 giờ điều trị bằng EFV (Hình S3B). Việc phục hồi tham số này đạt được nhờ các tế bào được xử lý Tun- hoặc EFV biểu hiện quá mức GRP78 (Hình 3D).
Tốc độ tiêu thụ O2 đã giảm đi trong 80 phút phân tích sau khi bổ sung Tun vào các ô biểu thị GFP (độ dốc −0.063,R2=0.98), nhưng mức tiêu thụ O2 là ổn định trong các ô biểu hiện quá mức GRP78-mặc dù có sự hiện diện của Tun (độ dốc −0,221, R2=0,99) (Hình 3E, bên trái).
Sau 5 giờ, hô hấp trở lại bình thường ở các tế bào biểu hiện quá mức GRP{1}} và bị tổn hại nghiêm trọng ở các tế bào biểu hiện GFP (Hình 3E, bên phải). Nhìn chung, những kết quả này cho thấy GRP78 làm suy giảm chức năng của ty thể do căng thẳng ER hoặc nhiễm độc ty thể.
For more information:1950477648nn@gmail.com