Phân Lập Một Chất Chiết Xuất Từ San Hô Mềm Vi Sinh Vật Cộng Sinh Salinispora Arenicola Có Tác Dụng Chống Lão Hóa Và Bảo Vệ Tế Bào Chết Phần 2
Jul 31, 2023
3.3. Xử lý Ruồi bằng Chiết xuất SA223-S2BM kích thích hoạt động của các mô-đun định lượng tế bào
Sau khi xem xét hoạt tính sinh học quan sát được của chiết xuất SA223-S2BM trong các thử nghiệm dựa trên tế bào, chúng tôi đã tìm cách kiểm tra tác động in vivo của nó đối với hoạt động của các mô-đun proteostatic trong sinh vật mẫu D. melanogaster và đặc biệt là ở ruồi Drosophila w1118. w1118 là một chủng Drosophila biến đổi gen mang đột biến null ở gen màu trắng, một gen thiết yếu cho con đường tạo sắc tố mắt và thường được sử dụng làm đối chứng thích hợp vì nó mang nền tảng đồng nhất để biến đổi gen thuận tiện. Chúng tôi thấy rằng chất chiết xuất không ảnh hưởng đến tuổi thọ hoặc sức khỏe tối đa của ruồi ở nồng độ 1 µg/mL, trong khi nó làm giảm nhẹ tuổi thọ trung bình của ruồi ở nồng độ 10 µg/mL (Hình 4A1, A2).

Glycoside của cistanche cũng có thể làm tăng hoạt động của SOD trong các mô tim và gan, đồng thời làm giảm đáng kể hàm lượng lipofuscin và MDA trong mỗi mô, loại bỏ hiệu quả các gốc oxy phản ứng khác nhau (OH-, H₂O₂, v.v.) và bảo vệ chống lại tổn thương DNA gây ra bởi gốc OH. Cistanche phenylethanoid glycoside có khả năng loại bỏ gốc tự do mạnh mẽ, khả năng khử cao hơn vitamin C, cải thiện hoạt động của SOD trong huyền phù tinh trùng, giảm hàm lượng MDA và có tác dụng bảo vệ nhất định đối với chức năng màng tinh trùng. Cistanche polysacarit có thể tăng cường hoạt động của SOD và GSH-Px trong hồng cầu và mô phổi của chuột lão hóa thực nghiệm do D-galactose gây ra, cũng như làm giảm hàm lượng MDA và collagen trong phổi và huyết tương, đồng thời tăng hàm lượng elastin, có tác dụng nhặt rác tốt đối với DPPH, kéo dài thời gian thiếu oxy ở chuột già, cải thiện hoạt động của SOD trong huyết thanh và làm chậm quá trình thoái hóa sinh lý của phổi ở chuột già thực nghiệm. Với sự thoái hóa hình thái tế bào, các thí nghiệm đã chỉ ra rằng Cistanche có khả năng chống oxy hóa tốt và có tiềm năng trở thành dược phẩm ngăn ngừa và điều trị các bệnh lão hóa da. Đồng thời, echinacoside trong Cistanche có khả năng đáng kể trong việc loại bỏ các gốc tự do DPPH và có khả năng loại bỏ các loại oxy phản ứng và ngăn chặn sự thoái hóa collagen do gốc tự do gây ra, đồng thời cũng có tác dụng sửa chữa tốt đối với tổn thương anion gốc tự do của thymine.

Bấm vào Cistanche có tác dụng chống oxy hóa không
【Để biết thêm thông tin:george.deng@wecistanche.com / WhatApp:8613632399501】
Tuy nhiên, và theo những phát hiện của chúng tôi trong các dòng tế bào người, việc sử dụng dịch chiết ở ruồi w1118 Drosophila non đã làm tăng hoạt tính proteasome giống chymotrypsin (Hình 4B), cũng như các hoạt động enzym của lysosomal cathepsins (Hình 4C). Ngoài ra, như thể hiện trong Hình 4D, chất chiết xuất có xu hướng làm giảm nồng độ ROS trong mô của ruồi.
3.4. Chiết xuất SA223-S2BM thể hiện các đặc tính chống tạo hắc tố và chống Elastase
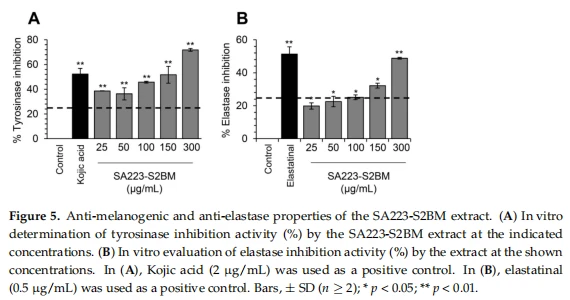
Tyrosinase và elastase là những enzyme quan trọng liên quan đến quá trình lão hóa da và các chất ức chế chúng có tầm quan trọng rất lớn trong ngành mỹ phẩm. Vì vậy, chúng tôi đã kiểm tra xem chiết xuất SA223-S2BM có ảnh hưởng đến hoạt động của các enzym này hay không bằng cách sử dụng các xét nghiệm đo quang phổ trong ống nghiệm. Thật thú vị, chúng tôi phát hiện ra rằng chất chiết xuất có đặc tính chống melanogen đáng kể, vì nó cho thấy khả năng ức chế tyrosinase phụ thuộc vào liều lượng, tương tự như axit Kojic ức chế tyrosinase có bán trên thị trường (Hình 5A). Chúng tôi cũng quan sát thấy rằng chất chiết xuất có hoạt tính chống elastase, so với chất ức chế elastase đã biết, cụ thể là melastatin (được sản xuất bởi xạ khuẩn) (Hình 5B).
3.5. Ủ tế bào người bằng chiết xuất SA223-S2BM kích hoạt phản ứng chống oxy hóa và bảo vệ tế bào khỏi stress oxy hóa và nhiễm độc gen
Sau đó, chúng tôi đã nghiên cứu ảnh hưởng của chiết xuất SA223-S2BM đối với các mô-đun chống oxy hóa tế bào. Chúng tôi đã quan sát thấy rằng việc ủ các tế bào BJ và HaCaT trong thời gian ngắn (24 giờ) với dịch chiết đã dẫn đến sự điều chỉnh lại các mục tiêu phiên mã NRF2, được đặt tên tương ứng là các gen NQO1 và TXNRD1 (ở nồng độ 10 µg/mL) (Hình 6A). Ngoài ra, chúng tôi đã quan sát thấy bằng cách phân tích mô phỏng miễn dịch làm tăng mức độ biểu hiện protein NQO1 trong các tế bào BJ theo cách phụ thuộc vào liều lượng và các tế bào HaCaT ở nồng độ 10 µg/mL, sau khi tiếp xúc với dịch chiết trong 24 giờ (Hình 6B).
Hơn nữa, chúng tôi đã tìm cách kiểm tra xem chiết xuất có ảnh hưởng đến mức độ ROS của tế bào hay không. Các tế bào được xử lý bằng dịch chiết trong 24 giờ và nồng độ ROS nội bào được đánh giá bằng phép đo huỳnh quang. Như được thể hiện trong Hình 6C1 và C2, dịch chiết làm giảm đáng kể nồng độ ROS ở cả nguyên bào sợi BJ và tế bào sừng HaCaT.

Sau đó, chúng tôi đã điều tra xem liệu chiết xuất SA223-S2BM có thể có vai trò bảo vệ tế bào chống lại độc tính qua trung gian căng thẳng oxy hóa hay không. Do đó, các nguyên bào sợi BJ và tế bào sừng HaCaT được ủ đồng thời với các nồng độ khác nhau của dịch chiết và tác nhân oxy hóa H2O2, và tỷ lệ sống sót được đo sau 24 hoặc 48 giờ ủ. H2O2 nổi tiếng với tác dụng gây độc tế bào [51] và do đó, được sử dụng như một biện pháp kiểm soát tích cực. Sau 24 giờ ủ các tế bào BJ, chúng tôi quan sát thấy rằng dịch chiết (ở nồng độ 1 µg/mL) có xu hướng bảo vệ các tế bào khỏi độc tính do H2O2 (100 µM) gây ra; một phát hiện tương tự đã được ghi nhận sau khi đồng xử lý các tế bào với 200 µM H2O2 và dịch chiết (1 và 5 µg/mL) (Hình 7A). Để hỗ trợ, chúng tôi nhận thấy rằng dịch chiết phần lớn đã giải cứu các tế bào HaCaT khỏi độc tính do stress oxy hóa gây ra, gây ra bởi cả hai nồng độ H2O2 đã nghiên cứu (100 và 200 µM), sau 24 giờ (Hình 7B1) và 48 giờ ủ (Hình 7B2) .
Ngoài ra, chúng tôi quan sát thấy rằng việc xử lý tế bào sừng HaCaT bằng dịch chiết trong 24 giờ ở nồng độ 10 µg/mL dẫn đến giảm mức độ biểu hiện protein 53BP1, cũng như mức độ phosphoryl hóa p53 ở Ser15 theo cách phụ thuộc vào liều lượng (Hình 7C1); cả hai loại protein này đều là dấu hiệu của tổn thương DNA và căng thẳng nhiễm độc gen [52,53]. Tác dụng bảo vệ của chiết xuất chống lại stress do gen cũng được xác nhận bằng các phân tích mô phỏng miễn dịch sau khi ủ các tế bào HaCaT bằng thuốc hóa trị liệu doxorubicin (DXR). Cụ thể, chúng tôi lưu ý rằng việc ủ đồng thời các tế bào HaCaT với chiết xuất SA223-S2BM và 2 µM DXR dẫn đến việc ức chế mức độ phosphoryl hóa H2A.X do DXR gây ra theo cách phụ thuộc vào liều lượng (Hình 7C2).

4. Thảo luận
Lão hóa là một quá trình liên quan đến sự tích lũy tổn thương và mất chức năng xảy ra ở cấp độ phân tử, tế bào, mô và sinh vật, liên quan đến việc tăng khả năng dễ bị tổn thương trước bệnh tật và tử vong [14]. Lão hóa tế bào là trạng thái ngừng chu kỳ tế bào vĩnh viễn và không thể đảo ngược để đáp ứng với các kích thích gây hại khác nhau và, trong số những thứ khác, được đặc trưng bởi các đặc điểm bài tiết độc đáo, tổn thương đại phân tử và thay đổi quá trình trao đổi chất [54,55]. Các tế bào lão hóa tích tụ theo tuổi tác, góp phần vào sự phát triển của các bệnh lý liên quan đến tuổi tác [56,57].
Việc kích hoạt các thành phần PN có thể làm giảm tốc độ tiến triển lão hóa, cho thấy rằng các mô-đun này có thể là mục tiêu điều trị tiềm năng chống lại lão hóa và các bệnh lý liên quan đến tuổi tác [58,59]. Trong nghiên cứu hiện tại, chúng tôi đã kiểm tra các mô hình in vivo và dựa trên tế bào về tác động của chiết xuất SA223-S2BM đối với các mô-đun cân bằng protein và phản ứng chống oxy hóa (xem Tóm tắt đồ họa). Chiết xuất này đã được phân lập từ vi sinh vật cộng sinh của san hô mềm có tên là S. arenicola, là một xạ khuẩn biển bắt buộc thuộc họ Micromonosporaceae [60]. Chúng tôi nhận thấy rằng chiết xuất SA223-S2BM kích hoạt các mô-đun proteostatic cả trong tế bào người và ruồi Drosophila.
Ngoài ra, chiết xuất SA223-S2BM tạo ra sự biểu hiện của các mô-đun chống oxy hóa, làm giảm tải lượng oxy hóa nội bào trong nguyên bào sợi da và tế bào sừng bất tử, đồng thời mang lại khả năng bảo vệ chống lại stress oxy hóa và nhiễm độc gen. Lão hóa tế bào và lão hóa in vivo được đặc trưng bởi sự gia tăng căng thẳng oxy hóa, tăng sự mất ổn định của bộ gen và hệ protein, cũng như do giảm hoạt động của các cơ chế sửa chữa tế bào và con đường phân giải protein [14]. Do đó, chiết xuất này có thể được sử dụng làm nguồn để xác định các phân tử có đặc tính bảo vệ tế bào và/hoặc chống lão hóa tiềm năng.
Một số nghiên cứu đã chỉ ra rằng cả sức khỏe và tuổi thọ đều có thể được cải thiện và kéo dài tương ứng thông qua các can thiệp về di truyền, dinh dưỡng và/hoặc dược lý [1]. Thật vậy, hạn chế calo giúp nâng cao khả năng chống lại stress oxy hóa, giảm tổn thương đại phân tử và tăng tuổi thọ ở các sinh vật mẫu khác nhau [61]. Tuy nhiên, vì các biện pháp can thiệp di truyền hoặc hạn chế calo không thể áp dụng cho con người, nên nhiều nghiên cứu đã được dành cho việc xác định các NP (chiết xuất hoặc hợp chất phân lập) có khả năng làm tăng sức khỏe và/hoặc tuổi thọ. Để hỗ trợ, nhiều loại NP, được phân lập từ nhiều nguồn khác nhau như thực vật, sinh vật biển và vi sinh vật, đã được báo cáo là có tác dụng chống lão hóa cả trong ống nghiệm và trong cơ thể sống [1,62].

Cho đến nay, nhiều NP biển đã được chứng minh là có nhiều hoạt tính sinh học, chẳng hạn như chống khối u, chống tăng sinh, bảo vệ ánh sáng hoặc kháng sinh. Do đó, trong vài năm qua, việc khám phá thuốc từ các NP biển đã đạt được thành công [63]. Thật vậy, một số loại thuốc có nguồn gốc từ biển đã được tung ra thị trường hoặc đang trong quá trình thử nghiệm lâm sàng [31]. Rất ít NP biển đã được nghiên cứu về khả năng điều chỉnh các thành phần chính của mạng PN và một số được phát hiện để kích hoạt trực tiếp UPP và phát huy các đặc tính chống lão hóa. Ví dụ, Astaxanthin là một caroten xanthophyll có trong các sinh vật biển, chẳng hạn như tảo vĩ mô, vi tảo và động vật giáp xác, và được biết đến với hoạt tính chống oxy hóa cả trong ống nghiệm và trong cơ thể, trong khi nó được phát hiện có đặc tính chống lão hóa, khi nó kéo dài. tuổi thọ ở C. Elegans và D. melanogaster [64].
Tyrosinase và elastase là hai enzym chủ chốt liên quan đến sự thoái hóa của da và do đó, ức chế hoạt động của chúng là một phương pháp bảo vệ đầy hứa hẹn chống lão hóa da [65]. Một số NP có nguồn gốc từ thực vật, ví dụ, curcumin, đã được nghiên cứu và được phát hiện là chất ức chế hiệu quả hoạt động của các enzym này [66]. Ở đây, chúng tôi nhận thấy rằng chiết xuất SA223-S2BM đã ức chế hiệu quả hoạt động của các enzym tyrosinase và elastase. Do đó, chiết xuất này có thể được sử dụng để phân lập các sản phẩm mỹ phẩm; để hỗ trợ, một số lượng lớn các phân tử có nguồn gốc từ biển đã được sử dụng trong ngành mỹ phẩm do hoạt động của chúng chống lại tyrosinase và elastase [67,68].
Vì số lượng các NP có sẵn thực hiện hoạt động chống lão hóa khá thấp [1], các hệ sinh thái ít được khám phá hơn, chẳng hạn như hệ sinh thái biển, cần được nghiên cứu thêm. Môi trường biển đại diện cho một nguồn tài nguyên duy nhất bao gồm sự đa dạng sinh học to lớn [30]. Các điều kiện vật lý và hóa học khắc nghiệt của nó là động lực quan trọng để tạo ra nhiều loại NP hoạt tính sinh học với các đặc điểm cấu trúc độc đáo, đóng vai trò là khuôn mẫu đầy hứa hẹn để truyền cảm hứng phát triển thuốc chống lại các bệnh khác nhau [31,32]. Điều này thể hiện rõ trong phân tích metagenomic gần đây của chúng tôi, trong đó sự đa dạng vi sinh vật của bọt biển Scopalina hapalia đã được nghiên cứu và kết quả cho thấy tiềm năng của các vi sinh vật này trong việc tạo ra các hợp chất hoạt tính sinh học chống lại các mục tiêu phân tử liên quan đến tuổi tác và do đó, sở hữu các đặc tính chống lão hóa [36]. Tuy nhiên, việc khám phá thuốc biển phải giải quyết một số thách thức lớn, chẳng hạn như xác định cấu trúc và vấn đề cung cấp [31].
Tiềm năng ngày càng tăng của các hệ sinh thái biển để cung cấp các NP có hoạt tính sinh học cũng được xác nhận bởi các phân lập trước đây của các sản phẩm có hoạt tính sinh học từ S. arenicola. Thú vị nhất trong số đó là Salinosporamide A (Marizomib), một chất ức chế proteasome mạnh, đã bước vào thử nghiệm lâm sàng giai đoạn I để điều trị bệnh đa u tủy chỉ ba năm sau khi phát hiện ra nó [31,69,70]. Hơn nữa, kháng sinh Arenimycin, chất gây độc tế bào trong tế bào ung thư biểu mô tuyến ở người [71], cũng như saliniketal A và saliniketal B, chất ức chế ornithine decarboxylase, một mục tiêu chống ung thư [72], cũng đã được phân lập từ S. arenicola.
5. Kết Luận
Bất chấp những phát hiện đáng khích lệ này, các phân tử có hoạt tính sinh học của chiết xuất SA223-S2BM vẫn chưa được biết đến và do đó, cần phải nghiên cứu thêm. Các nghiên cứu trong tương lai sẽ tiết lộ thành phần hóa học của chiết xuất này và các hợp chất hoạt tính sinh học chịu trách nhiệm về các đặc tính của chiết xuất, được trình bày trong nghiên cứu này. Do đó, chúng tôi đề xuất chiết xuất SA223-S2BM, (thu được từ xạ khuẩn của hệ sinh thái san hô mesophotic biển), như một chất kích hoạt hiệu quả có khả năng của các cơ chế bảo vệ tế bào giúp thúc đẩy quá trình lão hóa khỏe mạnh.
Tài liệu bổ sung: Có thể tải xuống thông tin hỗ trợ sau trên trang web, Hình S1: Đánh giá in vitro hoạt động ức chế tyrosinase và elastase. (A) ( phần trăm ) Hoạt tính ức chế Tyrosinase bởi chiết xuất SA223-S2BAE ở nồng độ 150 µg/mL. (B) ( phần trăm ) Hoạt tính ức chế Elastase bởi chiết xuất SA223-S2LAE ở nồng độ 100 µg/mL. Trong (A), axit Kojic (2 µg/mL) được sử dụng như một biện pháp kiểm soát dương tính. Trong (B), melastatin (0,5 µg/mL) được sử dụng làm đối chứng dương tính. Thanh, ± SD (n Lớn hơn hoặc bằng 2); *, p < 0,05. Hình S2: Phân tích đầy đủ và định lượng về mức độ biểu hiện protein (các khối miễn dịch được hiển thị trong Hình 2). Hình S3: Phân tích đầy đủ và định lượng về mức độ biểu hiện protein (các đốm miễn dịch được hiển thị trong Hình 3). Hình S4: Phân tích đầy đủ và định lượng về mức độ biểu hiện protein (các khối miễn dịch được hiển thị trong Hình 3). Hình S5: Phân tích đầy đủ và định lượng về mức độ biểu hiện protein (các khối miễn dịch được hiển thị trong Hình 6). Hình S6: Phân tích đầy đủ và định lượng về mức độ biểu hiện protein (các đốm miễn dịch được hiển thị trong Hình 7). Bảng S1: Tóm tắt các thí nghiệm về tuổi thọ. Bảng S2: Tên đầy đủ của các gen được phân tích.
Sự đóng góp của tác giả:Lên ý tưởng IPT, thiết kế và giám sát nghiên cứu; XPL, ADS, E.-DP và MSM đã thực hiện các xét nghiệm tế bào và Drosophila và diễn giải dữ liệu; GLG, PL, YB và JO đã thực hiện thu thập san hô, phân tích phát sinh loài, phân lập/xác định chủng và sản xuất chiết xuất; XPL, ADS, E.-DP, MSM và IPT đã viết và chỉnh sửa bản thảo. Tất cả các tác giả đã đọc và đồng ý với phiên bản xuất bản của bản thảo.
Kinh phí: Công việc này đã được hỗ trợ một phần bởi TASCMAR của EU (EU-H2020/634674).
Tuyên bố của Ủy ban Đánh giá Thể chế:Không áp dụng.
Tuyên bố đồng ý có hiểu biết:Không áp dụng.
Tuyên bố về tính khả dụng của dữ liệu:Dữ liệu có sẵn từ Tác giả tương ứng theo yêu cầu hợp lý.

Sự nhìn nhận: Chúng tôi cảm ơn tất cả những người tham gia TASCMAR vì sự hợp tác tuyệt vời của họ. Chúng tôi cũng cảm ơn Viện Khoa học Hàng hải Đa dạng tại Eilat (IUI) đã sử dụng Sam Rothberg R/V và sự hỗ trợ chuyên nghiệp của các thành viên phi hành đoàn. Chúng tôi mang ơn các nhân viên EcoOcean vì đã vận hành ROV. Chúng tôi xin cảm ơn M. Weis và R. Liberman vì sự giúp đỡ của họ trong quá trình nghiên cứu thực địa.
Xung đột lợi ích:Các tác giả tuyên bố không có xung đột lợi ích.
Người giới thiệu
1. Argyropoulou, A.; Aligiannis, N.; Trougakos, KCN; Skaltsounis, A.-L. Các hợp chất tự nhiên có hoạt tính chống lão hóa. tự nhiên sản xuất. Dân biểu 2013, 30, 1412–1437. [Tham khảo chéo]
2. Riera, CE; Merkwith, C.; De Magalhaes-Filho, CD; Dillin, A. Mạng báo hiệu xác định tuổi thọ. hàng năm. Linh mục Biochem. 2016, 85, 35–64. [CrossRef] [PubMed]
3. Chảo, H.; Finkel, T. Các protein chính và con đường điều chỉnh tuổi thọ. J. Sinh học. hóa học. 2017, 292, 6452–6460. [CrossRef] [PubMed]
4. Trougakos, IP; Sesti, F.; Tsakiri, E.; Gorgoulis, VG Điều chỉnh protein sau dịch mã không enzyme và bãi bỏ quy định mạng lưới protein trong sinh ung thư. J.Proteom. 2013, 92, 274–298. [Tham khảo chéo]
5. Niforou, K.; Cheimonidou, C.; Trougakos, người đi kèm phân tử IP và quy định cân bằng protein trong quá trình mất cân bằng oxi hóa khử. Redox Biol. 2014, 2, 323–332. [CrossRef] [PubMed]
6. Tsakiri, EN; Trougakos, IP Hệ thống Ubiquitin-Proteasome tuyệt vời: Các thành phần cấu trúc và ý nghĩa trong quá trình lão hóa. quốc tế Linh mục tế bào Mol. sinh học. 2015, 314, 171–237. [CrossRef] [PubMed]
7. Sala, AJ; Bott, LC; Morimoto, RI Định hình cân bằng protein ở cấp độ tế bào, mô và sinh vật. J. Sinh học tế bào. 2017, 216, 1231–1241. [CrossRef] [PubMed]
8. Kaushik, S.; Cuervo, AM Proteostocation và lão hóa. tự nhiên y tế. 2015, 21, 1406–1415. [Tham khảo chéo]
9. Klaips, CL; Jayaraj, GG; Hartl, FU Con đường chuyển hóa tế bào trong quá trình lão hóa và bệnh tật. J. Sinh học tế bào. 2017, 217, 51–63. [Tham khảo chéo]
10. Labbadia, J.; Morimoto, RI Sinh học của sự cân bằng protein trong lão hóa và bệnh tật. hàng năm. Linh mục Biochem. 2015, 84, 435–464. [Tham khảo chéo]
11. Balchin, D.; Hayer-Hartl, M.; Hartl, FU Các khía cạnh in vivo của việc gấp protein và kiểm soát chất lượng. Khoa học 2016, 353, aac4354. [CrossRef] [PubMed]
12. Hipp, MS; Kasturi, P.; Hartl, FU Mạng lưới cân bằng protein và sự suy giảm của nó trong quá trình lão hóa. tự nhiên Mục sư Mol. Tế bào sinh học. 2019, 20, 421–435. [CrossRef] [PubMed]
13. Sridhar, S.; Botbol, Y.; Macien, F.; Cuervo, AM Autophagy và bệnh tật: Luôn có hai mặt của một vấn đề. J. Pathol. 2011, 226, 255–273. [CrossRef] [PubMed]
14. López-Otín, C.; Blasco, MA; gà gô, L.; Serrano, M.; Kroemer, G. Dấu hiệu lão hóa. Ô 2013, 153, 1194–1217. [CrossRef] [PubMed]
15. Balch, CHÚNG TÔI; Morimoto, RI; Dilin, A.; Kelly, JW Điều chỉnh Proteostocation để can thiệp bệnh tật. Khoa học 2008, 319, 916–919. [Tham khảo chéo]
16. Quyền hạn, ET; Morimoto, RI; Dilin, A.; Kelly, JW; Balch, WE Các phương pháp tiếp cận sinh học và hóa học đối với các bệnh thiếu hụt proteostasis. hàng năm. Linh mục Biochem. 2009, 78, 959–991. [Tham khảo chéo]
17. Mực ống, B.; Morimoto, RI Cân bằng nội môi protein như một mục tiêu điều trị cho các bệnh về cấu tạo protein. Curr. Đứng đầu. y tế. hóa học. 2013, 12, 2623–2640. [CrossRef] [PubMed]
18. Sklirou, AD; Papanagnou, E.-D.; Fokialakis, N.; Trougakos, Phòng ngừa ung thư IP thông qua kích hoạt các mô-đun proteostatic. Lá Thư Ung Thư. 2018, 413, 110–121. [Tham khảo chéo]
19. Trương, S.; Duan, E. Chống lão hóa da: Con đường từ băng ghế đến đầu giường. Cấy ghép tế bào. 2018, 27, 729–738. [Tham khảo chéo]
20. Yasin, Zam; Ibrahim, F.; Rashid, NN; Razif, MFM; Yusof, R.; Yasin, FIZAM Tầm quan trọng của một số chất chiết xuất từ thực vật với vai trò là nguồn chống lão hóa da: Đánh giá. Curr. dược phẩm. công nghệ sinh học. 2018, 18, 864–876. [Tham khảo chéo]
21. Bae-Harboe, YSC; Park, HY Tyrosinase: Một protein điều hòa trung tâm cho sắc tố da. J. Điều tra. da liễu. 2012, 132, 2678–2680. [Tham khảo chéo]
22. Trụ cột, T.; Manickam, M.; Namasivayam, V. Chất làm trắng da: Quan điểm hóa dược của chất ức chế tyrosinase. J. Enzim. ức chế. y tế. hóa học. 2017, 32, 403–425. [CrossRef] [PubMed]
23. Qu, Y.; Triển Chiêu, Q.; Du, S.; Đinh, Y.; Phương, B.; Du, W.; Ngô, Q.; Yu, H.; Lý, L.; Huang, W. Phát hiện và ức chế cụ thể dựa trên xúc tác của tyrosinase và ứng dụng của chúng. J.Pharm. hậu môn. 2020, 10, 414–425. [Tham khảo chéo]
24. Decorte, BL Cơ hội chưa được khám phá cho các sản phẩm tự nhiên trong khám phá thuốc. J. Med. hóa học. 2016, 59, 9295–9304. [CrossRef] [PubMed]
25. Beutler, JA Natural Products as a Foundation for Drug Discovery. Curr. giao ước. dược phẩm. 2019, 86, 9.11.1–9.11.21. [Tham khảo chéo]
26. Dương, C.; Trương, W.; Đồng, X.; Phúc, C.; Nguyên, J.; Xu, M.; Lương, Z.; Qiu, C.; Xu, C. Một giải pháp sản phẩm tự nhiên cho các bệnh liên quan đến lão hóa và lão hóa. dược phẩm. Có. 2020, 216, 107673. [CrossRef] [PubMed]
27. Coleues, T.; Reker, D.; Schneider, P.; Schneider, G. Dựa vào các sản phẩm tự nhiên để thiết kế thuốc. tự nhiên hóa học. 2016, 8, 531–541. [CrossRef] [PubMed]
28. Cùn, JW; Carroll, AR; Copp, BR; Davis, RA; Bàn phím, RA; Prinsep, MR Marine sản phẩm tự nhiên. tự nhiên sản xuất. Dân biểu 2018, 35, 8–53. [Tham khảo chéo]
29. Christensen, S. Các sản phẩm tự nhiên đã thay đổi xã hội. Y sinh 2021, 9, 472. [CrossRef]
30. Montaser, R.; Luesch, H. Các sản phẩm tự nhiên từ biển: Một làn sóng ma túy mới? Tương lai Med. hóa học. 2011, 3, 1475–1489. [Tham khảo chéo]
31. Lương, X.; Luo, D.; Luesch, H. Những tiến bộ trong việc khám phá tiềm năng trị liệu của các sản phẩm tự nhiên từ biển. dược phẩm. độ phân giải 2019, 147, 104373. [CrossRef]
32. Sang, VT; Đạt, TTH; Vinh, LB; Cường, LCV; Oanh, PTT; Hà, H.; Kim, YH; Anh, HLT; Yang, SY Coral và các vi sinh vật liên quan đến san hô: Một nguồn dồi dào các sản phẩm tự nhiên có khả năng hoạt tính sinh học. Thuốc tháng 3 năm 2019, 17, 468. [CrossRef] [PubMed]
33. Tamura, K.; Nei, M. Ước tính số lượng thay thế nucleotide trong vùng kiểm soát của DNA ty thể ở người và tinh tinh. mol. sinh học. tiến hóa. 1993, 10, 512–526. [Tham khảo chéo]
34. Kumar, S.; Stecher, G.; Lý, M.; Knyaz, C.; Tamura, K. MEGA X: Phân tích di truyền tiến hóa phân tử trên các nền tảng điện toán. mol. sinh học. tiến hóa. 2018, 35, 1547–1549. [Tham khảo chéo]
35. Le Goff, G.; Adelin, E.; Cortial, S.; Phục vụ, C.; Ouazzani, J. Ứng dụng chiết xuất pha rắn vào quá trình lên men có hỗ trợ thạch. Hệ thống xử lý sinh học Tiếng Anh 2012, 36, 1285–1290. [Tham khảo chéo]

36. Hassane, CS; Fouillaud, M.; Le Goff, G.; Sklirou, AD; Boyer, JB; Trougakos, KCN; Jerabek, M.; Bignon, J.; De Voogd, NJ; Ouazzani, J.; et al. Các vi sinh vật liên kết với bọt biển Scopalina Chapala: Một kho chứa các phân tử hoạt tính sinh học để làm chậm quá trình lão hóa. Vi sinh vật 2020, 8, 1262. [CrossRef] [PubMed]
37. Campos, thể dục; Herbette, G.; Chendo, C.; Thư ký, P.; Tintillier, F.; de Voogd, NJ; Papanagnou, E.-D.; Trougakos, KCN; Jerabek, M.; Bignon, J.; et al. Chuỗi dài mới Polyacetylen oxy hóa cao từ Mayotte Marine Sponge Haliclona sp. Thuốc tháng 3 năm 2020, 18, 350. [CrossRef] [PubMed]
38. Nikou, T.; Liaki, V.; Stathopoulos, P.; Sklirou, AD; Tsakiri, EN; Jakschitz, T.; Bonn, G.; Trougakos, KCN; Halabalaki, M.; Skaltsounis, LA Khảo sát so sánh các polyphenol EVOO và khám phá các đặc tính thúc đẩy lão hóa lành mạnh của oleocanthal và oleoresin. Hóa chất thực phẩm chất độc. 2019, 125, 403–412. [Tham khảo chéo]
39. Tsakiri, VN; Sykiotis, GP; Papassideri, IS; Gorguli, VG; Bohmann, D.; Trougakos, IP Quy định khác biệt về chức năng đáng tin cậy trong các mô sinh sản so với soma của Drosophila trong quá trình lão hóa hoặc stress oxy hóa. FASEB J. 2013, 27, 2407–2420. [CrossRef] [PubMed]
40. Gumeni, S.; Evangelakou, Z.; Tsakiri, E.; Scorano, L.; Trougakos, IP Hệ thống dây chức năng của các mô-đun proteostatic và di căn đảm bảo sự sống sót tạm thời của sinh vật trong quá trình động lực học của ty thể bị mất cân bằng. Redox Biol. 2019, 24, 101219. [CrossRef] [PubMed]
41. Ransy, C.; Vaz, C.; Lombès, A.; Bouillaud, F. Sử dụng H2O2 để gây ra stress oxy hóa, vấn đề Catalase. quốc tế J. Mol. Khoa học. 2020, 21, 9149. [CrossRef]
42. Sklirou, AD; Gaboriaud-Kolar, N.; Papassideri, tôi.; Skaltsounis, AL; Trougakos, IP 6-bromo-indirubin-30 -oxime (6BIO), một chất ức chế Glycogen synthase kinase-3, kích hoạt các mô-đun tế bào bảo vệ tế bào và ngăn chặn tổn thương phân tử sinh học qua trung gian lão hóa tế bào trong nguyên bào sợi của người. Khoa học. Dân biểu 2017, 7, 11713. [CrossRef]
43. Sklirou, AD; Ralli, M.; Dominguez, M.; Papassideri, tôi.; Skaltsounis, A.-L.; Trougakos, IP Hexapeptide-11 là một bộ điều biến mới của mạng lưới cân bằng protein trong nguyên bào sợi lưỡng bội của con người. Redox Biol. 2015, 5, 205–215. [Tham khảo chéo]
44. Rasband, WS ImageJ Hoa Kỳ; 1.48v/Java 1.6.0-20 (32-bit); Viện Y tế Quốc gia: Bethesda, MD, Hoa Kỳ, 2014.
45. Papanagnou, E.-D.; Terpos, E.; Kastritis, E.; Papassideri, IS; Tsitsilonis, OE; Dimopoulos, MA; Trougakos, IP Các phản ứng phân tử đối với các chất ức chế đáng tin cậy trong điều trị ở bệnh nhân đa u tủy là người hiến tặng, loại tế bào và phụ thuộc vào thuốc. Oncotarget 2018, 9, 17797–17809. [Tham khảo chéo]
46. Tsakiri, VN; Gumeni, S.; Vougas, K.; Pendin, D.; Papassideri, tôi.; Daga, A.; Gorgoulis, V.; Juhász, G.; Scorano, L.; Trougakos, IP Rối loạn chức năng Proteasome gây ra sự mất ổn định quá mức của hệ protein và mất khả năng di căn có thể được giảm thiểu bằng cách tăng cường phản ứng tổng hợp ty thể hoặc quá trình tự trị. Autophagy 2019, 15, 1757–1773. [CrossRef] [PubMed]
47. Tsakiri, VN; Gaboriaud-Kolar, N.; Iliaki, KK; Tchoumtchoua, J.; Papanagnou, E.-D.; Chatzigeorgiou, S.; Tallas, KD; Mikros, E.; Halabalaki, M.; Skaltsounis, AL; et al. Dẫn xuất Indirubin 6-Bromoindirubin-30 -Oxime kích hoạt các mô-đun proteostatic, lập trình lại các con đường năng lượng sinh học tế bào và tạo ra tác dụng chống lão hóa. chống oxy hóa. Tín hiệu oxi hóa khử. 2017, 27, 1027–1047. [Tham khảo chéo]
48. Sarkar, S.; Ravikumar, B.; Floto, RA; Rubinsztein, DC Rapamycin và các chất gây cảm ứng autophagy độc lập với mTOR cải thiện độc tính của Huntingtin mở rộng polyglutamine và các proteinopathies liên quan. Tế bào chết khác nhau. 2009, 16, 46–56. [CrossRef] [PubMed]
49. Benayahu, Y. Octocorals của Ấn Độ Dương-Thái Bình Dương. Trong Hệ sinh thái San hô Mesophotic; Loya, Y., Puglise, K., Bridge, T., Eds.; Rạn san hô của thế giới; Springer: Chăm, Thụy Sĩ, 2019; Tập 12, trang 709–728.
50. Millán-Aguiñaga, N.; Chavarria, Kuala Lumpur; Ugalde, JA; Letzel, A.-C.; Rouse, G.; Jensen, PR Phylogenomic Insight into Salinispora (Bacteria, Actinobacteria) Species Designations. Khoa học. Dân biểu 2017, 7, 3564. [CrossRef]
51. Kruszewski, M.; Szumiel, I. Tác dụng gây độc tế bào và gây đột biến của hydro peroxide ở các dòng phụ L5178Y ở chuột. Acta Biochim. Pol. 1993, 40, 42–45. [Tham khảo chéo]
52. Campisi, J.; d'Adda di Fagagna, F. Lão hóa tế bào: Khi những điều tồi tệ xảy ra với các tế bào tốt. tự nhiên Mục sư Mol. Tế bào sinh học. 2007, 8, 729–740. [CrossRef] [PubMed]
53. Ashraf, R.; Hamidullah, HM; Pandey, P.; Maheshwari, M.; Singh, LR; Siddiqui, MQ; Konwar, R.; Sashidhara, KV; Sarkar, J. Coumarin-chalcone lai kích thích DNA phá hủy bằng cách liên kết rãnh nhỏ và ổn định p53 thông qua các sửa đổi sau dịch mã. Khoa học. Dân biểu 2017, 7, 45287. [CrossRef]
54. Hernandez-Segura, A.; Nehme, J.; Demaria, M. Dấu hiệu lão hóa tế bào. Xu hướng Cell Biol. 2018, 28, 436–453. [Tham khảo chéo]
55. Gorgulis, V.; Adams, Giám đốc điều hành; Alimonti, A.; Bennett, DC; Bischof, O.; Giám mục, C.; Campisi, J.; Collado, M.; Evangelou, K.; Ferbeyre, G.; et al. Sự lão hóa của tế bào: Xác định con đường phía trước. Ô 2019, 179, 813–827. [Tham khảo chéo]
56. Bielak-Zmijewska, A.; Mosieniak, G. Lão hóa tế bào trong lão hóa, bệnh liên quan đến tuổi tác và tuổi thọ. Curr. Mạch máu dược phẩm. 2013, 12, 698–706. [Tham khảo chéo]
57. Di Micco, R.; Krizhanovsky, V.; Thợ làm bánh, D.; D'Adda Di Fagagna, F. Lão hóa tế bào trong lão hóa: Từ cơ chế đến cơ hội điều trị. tự nhiên Mục sư Mol. Tế bào sinh học. 2021, 22, 75–95. [Tham khảo chéo]
58. Taylor, R.; Dillin, A. Lão hóa như một sự kiện sụp đổ của quá trình cân bằng protein. Bến cảng mùa xuân lạnh. Quan điểm. sinh học. 2011, 3, a004440. [Tham khảo chéo]
59. Morimoto, RI; Cuervo, AM Proteostocation và Aging Proteome trong Sức khỏe và Bệnh tật. J. Gerontol. Ser. Đun sôi. Khoa học. y tế. Khoa học. 2014, 69, S33–S38. [Tham khảo chéo]
60. Maldonado, LA; Fenical, W.; Jensen, PR; Kauffman, CA; Thợ mỏ, TJ; Phường, AC; Bò đực, AT; Goodfellow, M. Salinispora arenicola gen. tháng mười một, sp. tháng mười một và Salinispora tropica sp. nov., xạ khuẩn biển bắt buộc thuộc họ Micromono-Cyperaceae. quốc tế J. Hệ thống. tiến hóa. vi sinh vật. 2005, 55, 1759–1766. [Tham khảo chéo]
61. Fontana, L.; gà gô, L.; Longo, VD Hạn chế chế độ ăn uống, các yếu tố tăng trưởng và lão hóa: Từ nấm men đến con người. Khoa học 2010, 328, 321–326. [Tham khảo chéo]
62. Wedel, S.; Manola, M.; Cavinato, M.; Trougakos, KCN; Jansen-Dürr, P. Nhắm mục tiêu cơ chế kiểm soát chất lượng protein bằng các sản phẩm tự nhiên để thúc đẩy quá trình lão hóa khỏe mạnh. Phân tử 2018, 23, 1219. [CrossRef]
63. Molinski, lực lượng đặc nhiệm; Dalisay, DS; Lievens, SL; Saludes, JP Phát triển thuốc từ các sản phẩm tự nhiên từ biển. tự nhiên Rev. Thuốc Discov. 2008, 8, 69–85. [Tham khảo chéo]
64. Vasilopoulou, M.; Ioannou, E.; Roussis, V.; Chondrogianni, N. Điều chế hệ thống ubiquitin-proteasome bằng các sản phẩm tự nhiên từ biển. Redox Biol. 2021, 41, 101897. [CrossRef] [PubMed]
65. Royer, M.; Prado, M.; García-Pérez, TÔI; Diouf, PN; Stevanovic, T. Nghiên cứu về tiềm năng dinh dưỡng, mỹ phẩm dinh dưỡng và mỹ phẩm của chiết xuất vỏ cây polyphenolic từ các loài cây rừng ở Canada. PharmaNutrition 2013, 1, 158–167. [Tham khảo chéo]
66. Tundis, R.; Loizzo, ÔNG; Xương, M.; Menichini, F. Vai trò tiềm năng của các hợp chất tự nhiên chống lão hóa da. Curr. y tế. hóa học. 2015, 22, 1515–1538. [CrossRef] [PubMed]
67. Martins, A.; Vieira, H.; Gaspar, H.; Santos, S. Tiếp thị các sản phẩm tự nhiên từ biển trong ngành dược phẩm và mỹ phẩm: Lời khuyên để thành công. Tháng 3 Thuốc 2014, 12, 1066–1101. [Tham khảo chéo]
68. Corinaldesi, C.; Nam tước, G.; Marcellini, F.; Dell'Anno, A.; Danovaro, R. Các phân tử có nguồn gốc từ vi sinh vật biển và khả năng sử dụng chúng trong các sản phẩm mỹ phẩm và mỹ phẩm. Ma túy tháng 3 năm 2017, 15, 118. [CrossRef]
69. Cảm giác, RH; Hội trưởng, ĐI; Thợ mỏ, TJ; Kauffman, CA; Jensen, PR; Fenical, W. Salinosporamide A: Một chất ức chế proteasome có độc tính tế bào cao từ một nguồn vi sinh vật mới, một loại vi khuẩn biển thuộc chi mới Salinospora. Angew. hóa học. quốc tế biên tập. 2003, 42, 355–357. [Tham khảo chéo]
70. Niewerth, D.; Jansen, G.; Riethoff, LFV; van Meerloo, J.; cải xoăn, AJ; Moore, BS; Assaraf, YG; Anderl, JL; Zweegman, S.; Kaspers, GJL; et al. Hoạt động chống bệnh bạch cầu và Cơ chế kháng thuốc đối với Marine Salinispora tropica Chất ức chế Proteasome Salinosporamide A (Marizomib). mol. dược phẩm. 2014, 86, 12–19. [CrossRef] [PubMed]
71. Asolkar, RN; Kirkland, TN; Jensen, PR; Fenical, W. Arenimycin, một loại kháng sinh có hiệu quả chống lại Staphylococcus aureus kháng rifampin và methicillin từ xạ khuẩn biển Salinispora arenicola. J. Thuốc kháng sinh. 2010, 63, 37–39. [Tham khảo chéo]
72. Williams, PG; Asolkar, RN; Kondratyuk, T.; Pezzuto, JM; Jensen, PR; Fenical, W. Saliniketals A và B, Bicyclic Polyketides từ Marine Actinomycete Salinispora arenicola. J.Nat. sản xuất. 2006, 70, 83–88. [Tham khảo chéo]
【Để biết thêm thông tin:george.deng@wecistanche.com / WhatApp:8613632399501】