Nc886, một RNA không mã hóa, là một dấu ấn sinh học mới và chất trung gian biểu sinh của quá trình lão hóa tế bào trong nguyên bào sợi
Apr 14, 2023
Trừu tượng:
Các nghiên cứu về chức năng của các sinh vật và mô hình con người đã tiết lộ rằng những thay đổi biểu sinh có thể tác động đáng kể đến quá trình lão hóa. RNA không mã hóa (ncRNA), một trong những bộ điều chỉnh biểu sinh, đóng một vai trò quan trọng trong việc sửa đổi biểu hiện của mRNA và protein của chúng. Nó có thể làm trung gian cho kiểu hình của các tế bào. Đã có báo cáo rằng nc886 (=vtRNA2-1 hoặc pre-miR-886), một ncRNA dài, có thể ngăn chặn sự hình thành khối u và tổn thương tế bào sừng do tia cực tím gây ra. Nghiên cứu này nhằm xác định vai trò của nc886 trong quá trình lão hóa sao chép của nguyên bào sợi và xác định liệu các chất có khả năng kiểm soát sự biểu hiện của nc886 có thể điều chỉnh quá trình lão hóa của tế bào hay không.
Trong các nguyên bào sợi lão hóa sao chép, biểu hiện nc886 giảm trong khi nc886 bị methyl hóa tăng lên. Có những thay đổi về dấu ấn sinh học lão hóa bao gồm hoạt động SA- -gal và biểu hiện của p16INK4A và p21Waf1/Cip1 trong các tế bào lão hóa. Những phát hiện này chỉ ra rằng sự giảm nc886 liên quan đến lão hóa có liên quan đến sự lão hóa tế bào của nguyên bào sợi và việc tăng biểu hiện nc886 có khả năng ngăn chặn sự lão hóa của tế bào. AbsoluTea Concentrate 2.0 (ATC) làm tăng biểu hiện nc886 và cải thiện quá trình lão hóa tế bào của nguyên bào sợi bằng cách ức chế các dấu ấn sinh học liên quan đến tuổi tác. Những kết quả này chỉ ra rằng nc886 có tiềm năng trở thành mục tiêu mới để chống lão hóa và ATC có thể là một thành phần chống lão hóa biểu sinh mạnh mẽ.
Lão hóa tế bào là một thuật ngữ rộng bao gồm các hiện tượng như giảm chức năng tế bào, giảm khả năng tăng sinh và tổn thương DNA do nhiều yếu tố gây ra. Lão hóa tế bào không phải là một quá trình đơn lẻ, có thể dự đoán được, mà là tác động kết hợp của một loạt các yếu tố sinh lý, di truyền và môi trường khác nhau. Trong nghiên cứu, người ta thấy rằng Cistanche có thể chống lão hóa vì nguyên tắc chống lão hóa của Cistanche chủ yếu liên quan đến các hoạt chất khác nhau mà nó chứa. Cistanche rất giàu nhiều loại hoạt chất sinh học, chẳng hạn như polysacarit, flavonoid, acetophenone, v.v. Trong số đó, polysacarit là một trong những thành phần hoạt tính chính của Cistanche, có nhiều chức năng đối với sức khỏe như tăng cường khả năng miễn dịch, chống oxy hóa, điều chỉnh quá trình trao đổi chất, v.v., và có thể làm giảm bớt mức độ lão hóa của cơ thể.
Nhấp vào lợi ích cistanche tubulosa
từ khóa:
nguyên bào sợi; lão hóa nhân rộng; quy định biểu sinh; nc886; chiết xuất trà xanh.
1. Giới thiệu
Sự lão hóa của tế bào ở trạng thái không thể đảo ngược sau khi ngừng tăng sinh tế bào đã nổi lên như một tác nhân quan trọng tiềm ẩn gây ra rối loạn chức năng mô và sự lão hóa của các sinh vật [1]. Lão hóa được đặc trưng bởi hoạt tính cao của beta-galactosidase liên quan đến lão hóa (SA- -gal), tăng biểu hiện của các dấu ấn sinh học lão hóa như p16INK4A và p21Waf1/Cip1, đồng thời giảm biểu hiện của LaminB1 [2]. Có hai loại lão hóa tế bào cơ bản: lão hóa tái tạo và lão hóa sớm do căng thẳng. Lão hóa sao chép được định nghĩa là hiện tượng khi các tế bào bình thường ngừng phân chia sau khi đạt đến số lần phân chia giới hạn. Nó có liên quan đến lão hóa theo thời gian. Tích lũy thiệt hại liên tục có thể gây ra sự lão hóa sao chép của các nguyên bào sợi, dẫn đến mất khả năng tu sửa và tổ chức ma trận ngoại bào (ECM). Các đặc điểm chính của lớp hạ bì lão hóa là giảm số lượng sợi collagen và tăng sản xuất metallicoproteinase ma trận (MMP), góp phần tạo nên cấu trúc mỏng và vô tổ chức của lớp hạ bì [3,4].
Các cơ chế điều hòa biểu sinh là những chất trung gian chính của quá trình lão hóa, thích ứng với các yếu tố gây căng thẳng và những thay đổi liên quan đến tuổi tác trong môi trường phân tử và gen. Những thay đổi biểu sinh này xảy ra ở nhiều mức độ khác nhau, bao gồm giảm lượng lớn histone ở lõi, biến dạng histone bằng cách sửa đổi sau dịch mã và methyl hóa DNA, thay thế các histone chính tắc bằng các biến thể histone và thay đổi biểu hiện của RNA không mã hóa (ncRNA) trong quá trình lão hóa của cơ thể và sao chép [5 ,6]. nc886 là ncRNA dài 101 nucleotide có thể liên kết với protein mục tiêu, do đó làm trung gian cho hoạt động của protein và kiểm soát biểu hiện gen [7]. nc886 cũng đã được đề xuất như một chất ức chế khối u phần lớn được suy ra bởi kiểu biểu hiện và vị trí bộ gen của nó trên nhiễm sắc thể người 5q31, vị trí của gen ức chế khối u. Một đặc điểm của biểu hiện nc886 là sự im lặng thường xuyên của các khối u ác tính bằng cách methyl hóa DNA CpG trong vùng quảng bá [8]. Dựa trên các nghiên cứu trước đây, chúng tôi đã phát hiện ra rằng việc giảm biểu hiện nc886 do chiếu xạ UVB có liên quan đến việc tăng COX-2 và MMP-9 thông qua con đường kích hoạt protein kinase RNA (PKR) trong tế bào sừng và điều đó thúc đẩy biểu hiện nc886 có thể là một chiến lược hữu ích để phát triển vật liệu chống tia UVB [9,10].
Trà xanh đã được nghiên cứu như một phương pháp điều trị cho nhiều tình trạng da liễu, chẳng hạn như mụn trứng cá, bệnh hồng ban, bệnh vẩy nến, mụn cóc do virus và thậm chí là ung thư da. Các hợp chất phenolic bao gồm axit galic (GC) và epigallocatechin gallate (EGCG) là những hợp chất hoạt động nổi tiếng trong trà xanh. (-)-Epigallocatechin-3-(3"-O-methyl) gallate (3" Me-EGCG) là một dạng EGCG O-methyl hóa độc nhất và có trong trà ô long và trà xanh. Đặc biệt, Jangwon số 3 (giống trà xanh của Amorepacific) chứa nhiều 3" Me-EGCG hơn các loại trà xanh khác [11]. 3" Me-EGCG đã được báo cáo là có tác dụng chống oxy hóa và bảo vệ da khỏi tế bào sừng [12] . Trong nghiên cứu này, chúng tôi đã nghiên cứu vai trò của nc886 trong quá trình lão hóa sao chép của nguyên bào sợi và xác định liệu chế phẩm 3" Me-EGCG trà xanh đậm đặc (AbsoluTea Concentrate 2.0) có thể làm tăng biểu hiện nc886 có thể cải thiện quá trình lão hóa của tế bào hay không.
2. Kết quả
2.1. Hồ sơ hóa học của AbsoluTea Concentrate 2.0 (ATC)
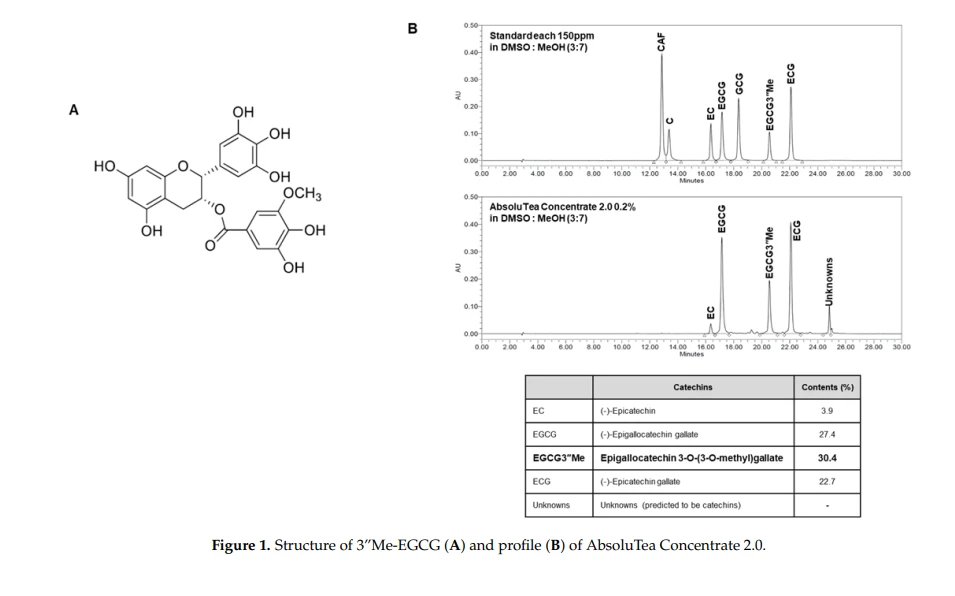
Hồ sơ hóa học của AbsoluTea Concentrate 2.0 (ATC) được thể hiện trong Hình 1B. Kết quả thu được bằng cách sử dụng HPLC cho ATC được chuẩn bị như được mô tả trong phần Phương pháp. ATC chứa 30% hoặc nhiều hơn 3" Me-EGCG (Hình 1B). Được biết, chiết xuất trà xanh không chứa 3" Me-EGCG hoặc có nồng độ dưới 6% [13,14]. Cả nguyên bào sợi non và già được điều trị bằng ATC đều cho thấy biểu hiện nc886 tăng nhiều hơn so với những nguyên bào được điều trị bằng chiết xuất trà xanh 70% trong etanol (Hình bổ sung S1A). Ngoài ra, mức độ biểu hiện SA- -gal trong nguyên bào sợi lão hóa được điều trị bằng ATC giảm nhiều hơn so với mức độ được điều trị bằng chiết xuất trà xanh (Hình bổ sung S1B).

2.2. nc886 Điều chỉnh sự lão hóa tế bào của nguyên bào sợi
Để quan sát vai trò của nc886 trong quá trình lão hóa tế bào của nguyên bào sợi, chúng tôi đã sử dụng mô hình lão hóa sao chép thông qua quá trình phát triển và cấy chuyền. Như thể hiện trong Hình bổ sung S2, hoạt động của SA- -gal và mức độ biểu hiện của các dấu hiệu lão hóa p16INK4A và p21Waf1/Cip1 đã tăng lên và biểu hiện Lamin B1 đã giảm trong các nguyên bào sợi lão hóa so với các tế bào non. Nhiều nghiên cứu trước đây đã báo cáo rằng lão hóa là do stress oxy hóa. Để xác nhận xem chuỗi căng thẳng oxy hóa này có liên quan đến quá trình lão hóa của tế bào hay không, nồng độ ROS ở các nguyên bào sợi non (p3) và lão hóa (p30) đã được đo. Kết quả cho thấy mức độ ROS đã tăng lên khi lão hóa (Hình bổ sung S2D).
Để quan sát tác động tiềm tàng của nc886 đối với quá trình lão hóa của tế bào trong nguyên bào sợi, mức độ biểu hiện gen nc886 trong mỗi số lần chuyển đoạn đã được xác định. Mức độ của biểu thức nc886 đã giảm khi tăng số đoạn (Hình 2A). Nó đã được báo cáo rằng biểu hiện nc886 bị giảm khi quá trình methyl hóa các đảo CpG. Để xác định xem quá trình điều hòa giảm nc886 trong nguyên bào sợi lão hóa có được trung gian bởi quá trình methyl hóa nc886 hay không, một PCR đặc hiệu methyl hóa đã được thực hiện. Như được hiển thị trong Hình 2A, quá trình methyl hóa nc886 đã tăng lên với số lần truyền tăng dần (Hình 2A). Kết quả này chứng minh rằng sự biểu hiện giảm của nc886 trong một số lượng lớn nguyên bào sợi là do sự gia tăng quá trình methyl hóa DNA nc886. Để xác minh vai trò của nc886 trong quá trình lão hóa nguyên bào sợi, những thay đổi về dấu hiệu lão hóa trong các mô hình loại bỏ và biểu hiện quá mức nc886 đã được xác định. Kết quả cho thấy nhóm nguyên bào sợi già có biểu hiện quá mức nc886 cho thấy hoạt động SA-beta-gal giảm, giảm mức biểu hiện của p16INK4A và p21Waf1/Cip1, đồng thời tăng mức laminB1.
Ngoài ra, sự gia tăng của ROS trong các nguyên bào sợi lão hóa đã giảm do biểu hiện quá mức của nc886 (Hình 2B). Ngược lại, trong nhóm các nguyên bào sợi trẻ bị đánh sập nc886, quá trình lão hóa của tế bào được tăng tốc và mức độ biểu hiện của các dấu hiệu lão hóa tế bào như p16INK4A và p21Waf1/Cip1 được tăng lên (Hình 2C). Những kết quả này cho thấy rằng nc886 có thể điều chỉnh quá trình lão hóa tế bào của nguyên bào sợi bằng cách điều chỉnh biểu hiện của các dấu hiệu lão hóa (Hình 2B, C).
2.3. ATC giảm thiểu sự lão hóa của tế bào bằng cách điều chỉnh biểu thức nc886
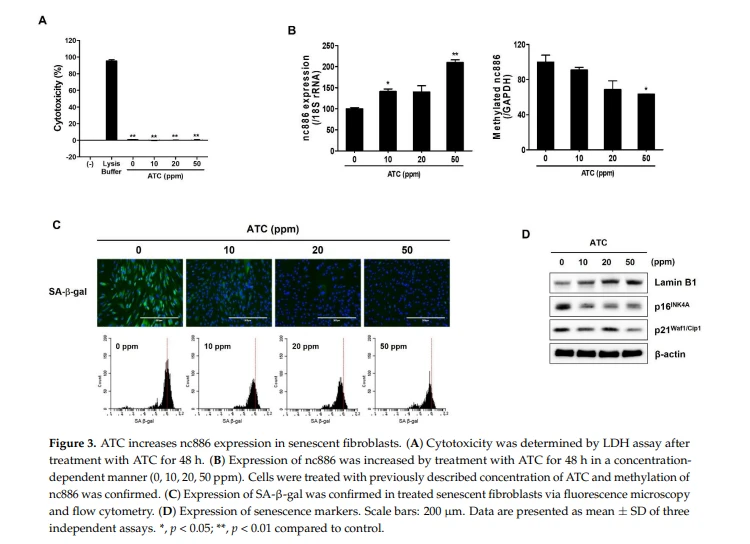
Các kết quả thu được ở trên cho thấy rằng việc tăng biểu hiện nc886 có thể cải thiện quá trình lão hóa của tế bào bằng cách làm trung gian các dấu hiệu lão hóa. Để quan sát ảnh hưởng của ATC đối với biểu hiện nc886, mức độ biểu hiện và quá trình methyl hóa nc886 trong nguyên bào sợi lão hóa được đánh giá sau khi điều trị bằng ATC ở nồng độ không gây độc tế bào (Hình 3A). Như được hiển thị trong Hình 3B và C, ATC đã tăng đáng kể biểu hiện nc886 và giảm quá trình methyl hóa nc886 theo cách phụ thuộc vào nồng độ. Kết quả này đã chứng minh rằng sự gia tăng biểu hiện nc886 của ATC đã được trung gian thông qua sự ức chế quá trình methyl hóa nc886. Ngoài ra, chúng tôi quan sát thấy rằng ATC đã ức chế hoạt động SA- -gal và giảm mức độ biểu hiện của các dấu hiệu lão hóa p16INK4A và p21Waf1/Cip1 trong nguyên bào sợi lão hóa (Hình 3D, E). Tuy nhiên, biểu hiện của LaminB1 được biết là giảm đi khi lão hóa đã tăng lên ở các nguyên bào sợi lão hóa được điều trị bằng ATC (Hình 3E). Những kết quả này chứng minh rằng ATC có thể giảm thiểu sự lão hóa của tế bào bằng cách tăng biểu thức nc886.
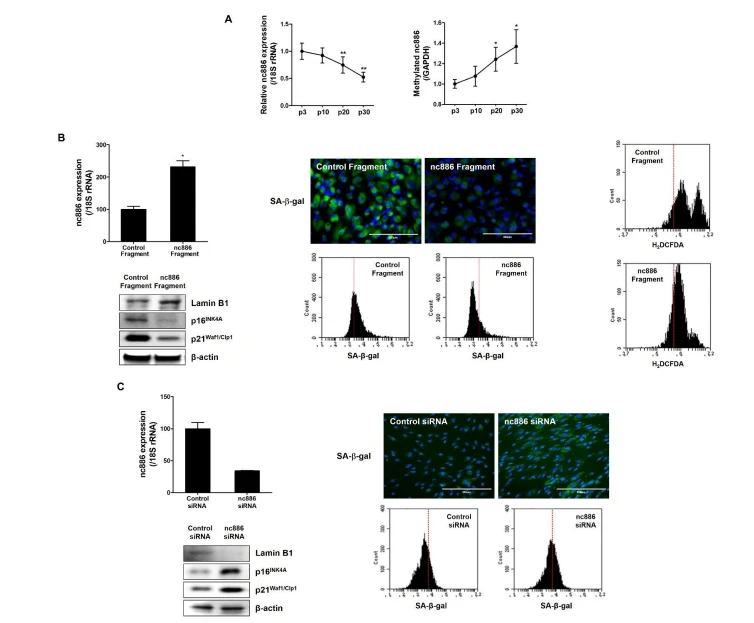
Hình 2. nc886 điều chỉnh quá trình lão hóa tế bào của nguyên bào sợi. (A) Biểu hiện của nc886 và nc886 đã methyl hóa theo đoạn văn đã được xác nhận bằng PCR thời gian thực và được chuẩn hóa bằng rRNA của thập niên 18. (B) Đoạn nc886 được khuếch đại và tinh chế từ DNA bộ gen người được chuyển vào các tế bào bạch cầu bằng Lipofectamine 3000. Sự biểu hiện quá mức đã được xác nhận bằng cách quan sát biểu hiện của nc886 bằng PCR thời gian thực và biểu hiện SA- -gal bằng kính hiển vi huỳnh quang và tế bào học dòng chảy. Biểu hiện của protein đánh dấu tuổi già và thế hệ ROS nội bào đã được quan sát thấy trong mô hình biểu hiện quá mức nc886. (C) Các tế bào được thay thế bằng chất chống oligos (si-ctrl và si-nc886) ở nồng độ 250 ppm bằng thuốc thử LipofectaminTM RNAiMAX. Việc hạ gục nc886 đã được xác nhận bằng cách quan sát biểu hiện của nc886 bằng phương pháp PCR thời gian thực và biểu hiện SA- -gal bằng kính hiển vi huỳnh quang và tế bào học dòng chảy. Biểu hiện của các dấu hiệu lão hóa đã được xác nhận với Western blot. Thanh tỷ lệ: 200 Pha. Dữ liệu được trình bày dưới dạng trung bình ± SD của ba xét nghiệm độc lập. *, p < 0,05; **, p < 0,01 so với đối chứng.
2.4. ATC quy định các thay đổi liên quan đến độ tuổi của ECM và SASP
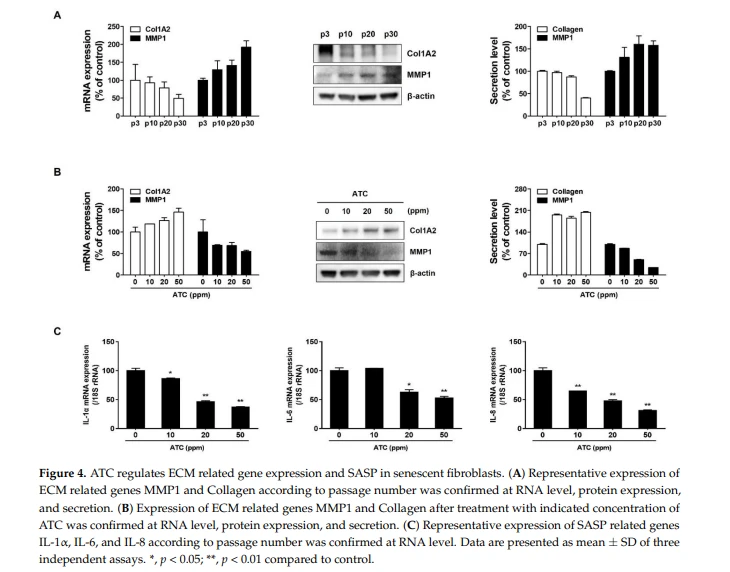
Một đặc điểm của quá trình lão hóa nguyên bào sợi là hoạt động của MMP-1, một thành phần làm suy giảm collagen, tăng lên, trong khi quá trình tổng hợp collagen giảm xuống [15,16]. Sự gia tăng của MMP-1 và sự sụt giảm collagen đã được xác nhận trong các nguyên bào sợi lão hóa với số lượng lớn (Hình 4A).
Tuy nhiên, ATC đã ngăn chặn sự biểu hiện của MMP-1 và tăng tổng hợp collagen trong nguyên bào sợi lão hóa. Kết quả này chỉ ra rằng ATC có thể cải thiện sự thay đổi ECM liên quan đến tuổi thông qua việc điều chỉnh biểu hiện MMP-1 và tổng hợp collagen trong nguyên bào sợi lão hóa (Hình 4B). Một kiểu hình bài tiết liên quan đến lão hóa (SASP) trong đó các tế bào bạch cầu tiết ra các yếu tố gây viêm cụ thể, các yếu tố tăng trưởng và enzyme phân giải protein đã được báo cáo góp phần vào sự khởi phát và tiến triển của các bệnh liên quan đến lão hóa [17-19]. Chúng tôi đã quan sát thấy tác dụng của ATC đối với các cytokine đặc biệt gây viêm SASP như IL-1 , IL_6 và IL-8. Như được hiển thị trong Hình 4C, ATC đã điều chỉnh quá mức các mức biểu thức của IL-1 , IL-6 và IL-8 do lão hóa gây ra. Điều này cho thấy ATC có thể phát huy tác dụng chống lão hóa thông qua việc triệt tiêu SASP.
3. Thảo luận
Các tế bào bạch cầu trải qua những thay đổi hình thái đặc trưng liên quan đến sự tái tổ chức hạt nhân và chất nhiễm sắc mở rộng và thường không đều. Khi quá trình lão hóa được gây ra bởi tổn thương DNA, suy giảm sao chép hoặc biểu hiện gen gây ung thư, Lamin B1 chủ yếu bị mất. Các yếu tố gây căng thẳng bên trong hoặc bên ngoài khác nhau có thể kích hoạt con đường phản ứng phá hủy DNA (DDR) để kích hoạt con đường p53 và/hoặc p16INK4A. p16INK4A có thể làm bất hoạt Cdk4/6, dẫn đến sự tích lũy pRb được phosphoryl hóa, phá vỡ quy định của yếu tố phiên mã E2F và gây ra hiện tượng ngừng hoặc lão hóa chu kỳ tế bào [20,21]. Việc tăng sản xuất các loại oxy phản ứng (ROS) chủ yếu được tạo ra bởi ty thể bị rối loạn chức năng có thể dẫn đến lão hóa tế bào thông qua tổn thương DNA và chuyển hóa các con đường truyền tín hiệu lão hóa, bao gồm p53, p16INK4A và p21Waf1/Cip1 [22].
Trong nghiên cứu này, chúng tôi nhận thấy rằng biểu hiện nc886 đã giảm khi số lượng đoạn tăng lên và việc điều chỉnh lại biểu hiện nc886 đã làm giảm thiểu quá trình lão hóa của tế bào thông qua trung gian sản xuất LaminB1, p16INK4A, p21Waf1/Cip1 và ROS. nc886 được phiên mã bởi RNA polymerase III (Pol III) và bị vô hiệu hóa bởi CpG DNA hypermethylation trong nhiều khối u ác tính [8]. Chúng tôi quan sát thấy rằng sự biểu hiện của nc886 đã giảm đi khi methyl hóa các đảo CpG trong các nguyên bào sợi lão hóa. Kết quả này chỉ ra rằng quá trình hypermethylation của các đảo CpG làm suy yếu chức năng của nc886 như một chất ức chế sự lão hóa của tế bào.
Con đường biểu hiện gen cụ thể bị ảnh hưởng bởi nc886 là không rõ ràng. Chúng có khả năng bao gồm các báo cáo trước đây cho các ncRNA khác. nc886 có thể đóng vai trò quan trọng trong quá trình lão hóa tế bào thông qua trực tiếp hoặc gián tiếp làm trung gian cho con đường truyền tín hiệu lão hóa ở các mức cấu trúc chất nhiễm sắc, hoạt động của yếu tố phiên mã, điều hòa gen sau phiên mã và hậu dịch mã [23]. Ví dụ, nc886 có thể làm trung gian cho quá trình lão hóa của quá trình phát triển chu kỳ tế bào.
Người ta đã báo cáo rằng AK156230 với tư cách là một ncRNA có liên quan đến việc tạo ra sự lão hóa sao chép của nguyên bào sợi thông qua vai trò của nó trong quá trình tự thực và tiến trình chu kỳ tế bào. Quá trình điều hòa ngược của AK156230 khiến các tế bào thể hiện phản ứng lão hóa bằng cách kích hoạt p53 và p21 trong khi giảm kinase 1 phụ thuộc cyclin (CDK1) [24]. ncRNA1 liên quan đến lão hóa (SAL-RNA1), MALAT1 và MIAT được biết đến như những chất điều chỉnh tiêu cực của quá trình lão hóa tế bào. Chúng bị giảm trong các nguyên bào sợi lão hóa. Điều chỉnh giảm các gen này có thể dẫn đến sự gia tăng các dấu hiệu lão hóa như SA-gal, p16, p21 và p53 [25]. Tác dụng của MALAT1 đối với quá trình lão hóa của tế bào đã đạt được thông qua sự suy giảm của yếu tố phiên mã gây ung thư b-Myb/Mybl2.
Mặc dù biểu hiện của các ncRNA khác nhau bị ảnh hưởng trong quá trình lão hóa, nhưng chỉ một số ít có chức năng tham gia vào quá trình lão hóa. Vì việc bản địa hóa các ncRNA rất quan trọng để hiểu các cơ chế liên quan đến chức năng, nên các ncRNA nhân và tế bào chất được thảo luận riêng khi mô tả các cơ chế phân tử ảnh hưởng đến quá trình lão hóa [26]. ncRNA nằm trong tế bào chất có thể hoạt động như một bộ điều chỉnh dịch mã thông qua bắt cặp cơ sở với mRNA mục tiêu [27]. ncRNA có thể ảnh hưởng đến mức độ biểu hiện protein bằng cách tăng hoặc giảm độ ổn định của mRNA [28].
Ví dụ, trong quá trình lão hóa do RAS gây ra, tế bào chất UCA1 góp phần ổn định p16 mRNA bằng cách cô lập hnRNPA1 [29]. nc886 chứa vị trí liên kết protein kinase RNA kích hoạt (PKR). Liên kết PKR–nc886 có thể ức chế hoạt động PKR. PKR, một thụ thể tế bào chất cho RNA sợi đôi (dsRNA), được điều hòa bởi protein kinase serine/threonine được kích hoạt bởi nhiễm trùng, cytokine, stress oxy hóa và chiếu xạ (bao gồm cả tia cực tím), dẫn đến cảm ứng viêm và chết theo chương trình sau đó [20 Ø21] [30,31]. nc886 liên kết với PKR có ái lực tương đương với dsRNA và ngăn không cho PKR được kích hoạt. Sự phân hủy nc886 dẫn đến quá trình phosphoryl hóa tiểu đơn vị nhân tố khởi tạo 2 (eIF2 ) thông qua con đường PKR, gây chết tế bào và ức chế quá trình tổng hợp protein của tế bào toàn cầu. Đã có báo cáo rằng việc sản xuất COX-2, IL-8 và MMP của TNF- được điều hòa bởi con đường PKR trong tế bào sụn của con người [32].
Trong một nghiên cứu trước đây, chúng tôi cũng đã chứng minh rằng tình trạng viêm do tia UVB gây ra có thể được điều chỉnh thông qua con đường nc886-PKR trong tế bào sừng [10]. Hơn nữa, PKR có liên quan đến tổn thương do stress oxy hóa gây ra ở các tế bào cơ tim ở trẻ sơ sinh. Việc ức chế PKR bảo vệ chống lại tổn thương do H2O2-gây ra bằng cách làm giảm quá trình chết theo chương trình và viêm nhiễm [33]. Viêm và stress oxy hóa là những yếu tố chính gây ra quá trình lão hóa. Do đó, con đường PKR có thể làm trung gian cho quá trình lão hóa tế bào của các nguyên bào sợi do sự suy giảm nc886 gây ra. Để làm sáng tỏ cơ chế điều tiết chi tiết liên quan đến tác động của nc886 đối với sự lão hóa tế bào của nguyên bào sợi, cần có thêm các nghiên cứu.
Tác dụng chống lão hóa của chiết xuất trà xanh đã được báo cáo rộng rãi trong các nghiên cứu trước đây. Các hoạt động chống oxy hóa và chống viêm của trà xanh là cơ chế nổi tiếng góp phần vào tác dụng chống lão hóa của nó. Trong một thử nghiệm sơ bộ, chúng tôi thấy rằng ATC đã tăng đáng kể biểu hiện nc886 lên hơn 70% chiết xuất trong etanol của trà xanh (Hình bổ sung S1A). Kết quả này cho thấy rằng catechin đậm đặc bao gồm 3" Me-EGCG có thể quy cho sự điều chỉnh lại của biểu hiện nc886. Để xác định xem tác nhân kích thích nc886 có thể ngăn chặn sự lão hóa của tế bào hay không, chúng tôi đã quan sát tác động của ATC đối với các nguyên bào sợi bị lão hóa. ATC đã tăng biểu hiện của nc886 bằng cách ức chế mức độ methyl hóa của gen nc886 trong nguyên bào sợi lão hóa (Hình 3B, C). ATC cũng làm giảm quá trình lão hóa tế bào bằng cách làm trung gian các dấu ấn sinh học lão hóa như hoạt động SA- -gal, LaminB1, p16INK4A và p21Waf1/Cip1 (Hình 3E ). Hơn nữa, MMP-1 tăng lên và giảm sản xuất collagen do lão hóa tế bào gây ra đã được phục hồi bởi ATC (Hình 4B). Các yếu tố SASP khác nhau một chút tùy thuộc vào loại tế bào và loại căng thẳng do lão hóa gây ra, chúng thường là được gọi là gen mục tiêu cho NF-κB điều chỉnh các cytokine tiền viêm như IL-6 và IL-8.
Trong nghiên cứu này, chúng tôi đã xác nhận rằng biểu thức gia tăng của IL-1 , IL_6 và IL-8 trong các tế bào lão hóa đã bị ATC triệt tiêu (Hình 4). Chúng tôi không thể loại trừ khả năng tác dụng cải thiện của trà xanh đối với quá trình lão hóa tế bào đạt được bằng nhiều cơ chế, bao gồm điều hòa nc886, chống oxy hóa và chống viêm. Tuy nhiên, kết quả của chúng tôi cho thấy rằng việc tăng nc886 bởi ATC đóng một vai trò quan trọng trong việc ngăn chặn sự lão hóa của tế bào, sau đó ảnh hưởng đến việc sản xuất nguyên bào sợi ECM.

4. Vật liệu và phương pháp
4.1. Chuẩn bị ATC
Lá chè xanh khô (Camellia sinensis var. sinensis cv. Jangwon No. 3) được sử dụng cho nghiên cứu hiện tại được lấy từ cây chè trồng ở vườn chè Dolsongi (33◦16023.900 N 126◦28058.300 E), Jeju, Hàn Quốc. Lá trà khô (170 g) được chiết xuất với 70 phần trăm EtOH (v/v) ở nhiệt độ phòng trong 16 giờ. Dịch chiết sau đó được tán thành bột bằng máy đông khô (TF10D, TEFIC BIOTECH, Xian, China). Để điều chế ATC, dịch chiết EtOH được cô đặc 10 lần bằng thiết bị cô quay và nạp vào cột nhồi nhựa AB-8 (đường kính trong 5 cm, dài 45 cm). Quá trình rửa giải dung môi của cột được thực hiện với 4 lần thể tích giường (BV) là 20% , 30% và 100% EtOH (v/v). Trong nghiên cứu này, dung môi còn sót lại trong cột được loại bỏ bằng máy nén khí trước khi rửa giải. Dịch rửa giải EtOH 30 phần trăm được cô đặc hai mươi lần và được đưa vào cột polyamit (đường kính trong 2,5 cm, dài 40 cm). Cột polyamit được rửa giải 5 lần BV của 10% và 100% EtOH. Dịch rửa giải 100% EtOH được cô đặc và đông khô cẩn thận.
4.2. Nuôi cấy tế bào và xử lý tế bào bằng ATC
Nguyên bào sợi ở người (HDF) được mua từ ATCC (Manassas, VA, USA). Nuôi cấy tế bào được tiến hành trong điều kiện có kiểm soát ở 37 ◦C với 5% CO2 sử dụng môi trường Eagle cải tiến của Dulbecco (WELGENE, Daegu, Hàn Quốc) được bổ sung 10% huyết thanh bào thai bò (Thermo Fisher Khoa học, Waltham, MA, Hoa Kỳ) và 1% penicillin -streptomycin (WELGENE, Daegu, Hàn Quốc). Tế bào được cấy vào 6-đĩa giếng với mật độ 2 × 10⁵ tế bào/đĩa. Sau khi đạt đến 60 phần trăm hợp lưu, chúng được xử lý với nồng độ ATC được chỉ định trong 72 giờ.
4.3. SA- -Nhuộm Gal và phân tích hình học dòng chảy
Các tế bào được nhuộm bằng SPiDER- -Gal (Dojindo, Kumamoto, Nhật Bản) theo hướng dẫn của nhà sản xuất. Các tế bào được phân tích bằng Hệ thống hình ảnh tế bào EVOS® FL (Thermo Fisher Khoa học, Waltham, MA, Hoa Kỳ) và máy đo lưu lượng dòng chảy BD FACS Calibur (BD Bioscatics, Franklin Lakes, NJ, Hoa Kỳ).
4.4. Đo ROS nội bào
Việc sản xuất ROS nội bào được theo dõi bằng cách sử dụng C20,70 -dichlorodihydrofluorescein diacetate (H2DCFDA; Molecular Probes), một chất chỉ thị ROS huỳnh quang. Các tế bào được ủ với H2DCFDA (5 µM) trong 30 phút ở 37 ◦C. Sự phát huỳnh quang liên quan đến tế bào được phát hiện bằng máy đo dòng chảy BD FACS Calibur (BD Bioscatics, Franklin Lakes, NJ, USA).
4.5. PCR thời gian thực và PCR đặc hiệu cho quá trình methyl hóa
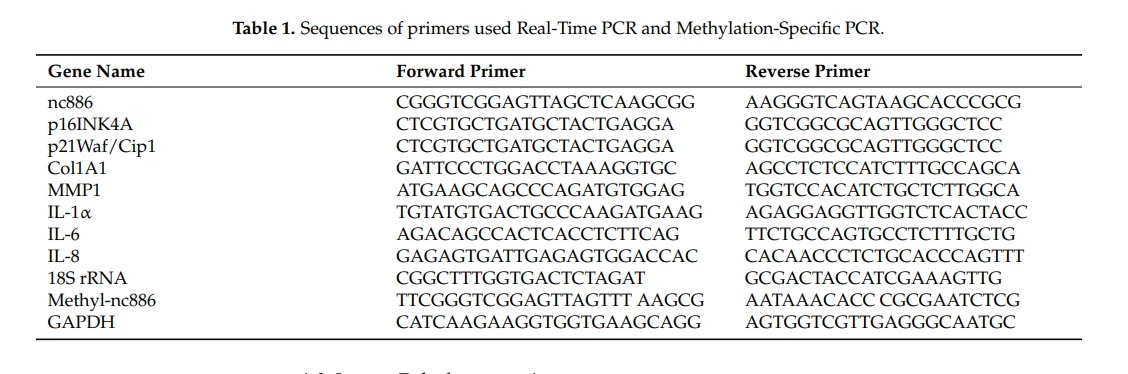
Tổng RNA được chiết xuất bằng TRIzol (Thermo Fisher Khoa học, Waltham, MA, Hoa Kỳ). Phép đo định lượng RNA được thực hiện bằng máy quang phổ vi bản Epoch (BioTek, Winooski, VT, USA). cDNA đã được tổng hợp bằng cách sử dụng Am-fiRivert cDNA Synthesis Platinum Master Mix (GenDEPOT, Barker, TX, USA). DNA bộ gen được chiết xuất bằng cách sử dụng AccuPrep® Genomic DNA Extraction Kit (BIONEER, Daejeon, Korea). Chuyển đổi bisulfite được thực hiện bằng cách sử dụng bộ methyl hóa EZ DNA (Zymo Research, CA, USA). Để thực hiện qRT-PCR, một Bộ tổng hợp AMPIGENE® cDNA (Enzo Life Science Inc., Farming-dale, NY, USA) và hệ thống PCR thời gian thực ABI7500 (Ambion Inc, Austin, TX, USA) đã được sử dụng. Trình tự mồi được sử dụng trong nghiên cứu này được mô tả trong Bảng 1.
4.6. Xét nghiệm Lactate Dehydrogenase
Xét nghiệm LDH được sử dụng để xác định độc tính tế bào bằng cách đo hoạt tính lactate dehydrogenase (LDH) được giải phóng từ các tế bào bị tổn thương. Thử nghiệm được thực hiện bằng cách sử dụng bộ thử nghiệm LDH Cytotoxicity WST (Enzo life sciences, Farmingdale, NY, USA) theo hướng dẫn của nhà sản xuất.
4.7. Chuyển đổi DNA cho biểu hiện quá mức nc886 và chuyển đổi siRNA cho nc886 Knockdown
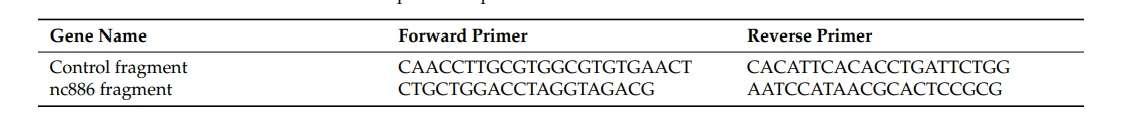
Để thu được DNA cho sự biểu hiện quá mức của nc886 trong tế bào, DNA được khuếch đại bằng AccuPower® PCR PreMix (BIONEER, Daejeon, Hàn Quốc) bằng cách sử dụng DNA bộ gen của HDF làm mẫu và các đoạn mồi sau đây được mô tả trong Bảng 2.
DNA khuếch đại đã được tinh chế bằng cách sử dụng Bộ tinh chế QIAquick PCR (QIAGEN, Hilden, Đức). DNA tinh khiết được thay thế bằng thuốc thử LipofectamineTM 3000 (Thermo Fisher Khoa học, Waltham, MA, Hoa Kỳ). Để đánh bại nc886, các tế bào đã được thay thế bằng chất chống oligos (si-ctrl và si-nc886) ở nồng độ 250pM bằng thuốc thử Lipofectamine ™ RNAiMAX (Thermo Fisher Khoa học, Waltham, MA, Hoa Kỳ).
4.8. Western Blotting
Dung dịch tế bào được điều chế bằng Dung dịch tách chiết protein PRO-PREP™ (Công nghệ sinh học iNtRON, Gyeonggi do, Hàn Quốc). Tổng số protein được phân tách bằng hệ thống điện di NuPAGE (Thermo Fisher Khoa học, Waltham, MA, Hoa Kỳ) và được chuyển sang màng polyvinylidene Difluoride (PVDF). Quá trình tạo miễn dịch đã được thực hiện bằng cách sử dụng kháng thể chính chống lại p16INK4A, p21Waf1/Cip1 (Công nghệ tín hiệu tế bào, Danvers, MA, Hoa Kỳ), MMP1, Col1A2 và -actin (Công nghệ sinh học Santa Cruz, Inc., Dallas, TX, Hoa Kỳ). Các giá trị mật độ quét của các dải được phân tích bằng ImageJ, phiên bản phần mềm 1.52a (Viện Y tế Quốc gia, Bethesda, MD, Hoa Kỳ).
4.9. Xét nghiệm hấp thụ miễn dịch liên kết với enzyme
Sau khi được chỉ định ủ, collagen (Procollagen Type I C-Peptide EIA Kit, Takara, Shiga, Japan) và MMP-1 (R&D Systems, Minneapolis, MN, USA) trong dịch nổi nuôi cấy được đo bằng cách sử dụng xét nghiệm hấp thụ miễn dịch liên kết với enzyme (ELISA) theo hướng dẫn của nhà sản xuất.
4.10. Phân tích thống kê
Tất cả các kết quả được trình bày dưới dạng trung bình ± độ lệch chuẩn (SD). Sự khác biệt giữa hai nhóm được đánh giá bằng kiểm tra t hoặc phân tích phương sai (ANOVA) bằng GraphPad Prism. Ý nghĩa thống kê được biểu thị là p < 0.05 hoặc p < 0,01.
5. Kết Luận
Tóm lại, việc điều chỉnh biểu hiện nc886 có thể là mục tiêu tiềm năng của quá trình lão hóa tế bào trong nguyên bào sợi và ATC có thể là một thành phần chống lão hóa biểu sinh mạnh mẽ.
Sự đóng góp của tác giả:
Khái niệm hóa, YK, KH và EJ; phương pháp YK, HJ, N.-HP và K.-SL; quản lý dữ liệu, YK, HJ và EC; điều tra, YK, HJ, EC, K.-SL, N.-HP và EJ; quản lý dự án, WP, DP và EJ; tài nguyên, WP và DP; giám sát, DP và EJ; viết— bản thảo gốc, YK; viết—đánh giá và chỉnh sửa, N.-HP, KH, WP, DP và EJ Tất cả các tác giả đã đọc và đồng ý với phiên bản đã xuất bản của bản thảo.
Kinh phí:
Nghiên cứu này không nhận được tài trợ bên ngoài.
Tuyên bố của Ủy ban Đánh giá Thể chế:
Không áp dụng.
Tuyên bố đồng ý có hiểu biết:
Không áp dụng.
Tuyên bố về tính khả dụng của dữ liệu:
Dữ liệu sẽ được cung cấp theo yêu cầu.

Xung đột lợi ích:
Các tác giả tuyên bố không có xung đột lợi ích.
Người giới thiệu
1. Campisi, J.; d'Adda di Fagagna, F. Lão hóa tế bào: Khi những điều tồi tệ xảy ra với các tế bào tốt. tự nhiên Mục sư Mol. Tế bào sinh học. 2007, 8, 729–740. [CrossRef] [PubMed]
2. Kapoor, VK; Dureja, J. Aging: Phương pháp tiếp cận để kiểm soát nó. Thuốc Discov. Hôm nay Ther. Chiến lược. 2010, 7, 43–44. [Tham khảo chéo]
3. Ngư dân, GJ; Kang, S.; Varani, J.; Bata-Csorgo, Z.; Vạn, Y.; Datta, S.; Voorhees, JJ Cơ chế lão hóa da và lão hóa da theo thời gian. Vòm. Da. 2002, 138, 1462–1470. [Tham khảo chéo]
4. Cọp, J.; Krutmann, J.; Fritsche, E.; Haendeler, J.; Schalal, H.; Fischer, JW; Kalfalah, F.; Reinke, H.; Reifenberger, G.; Stuhler, K.; et al. Các dấu hiệu lão hóa nguyên bào sợi. Máy móc. Lão hóa Dev. 2014, 138, 26–44. [Tham khảo chéo]
5. Brunet, A.; Berger, SL Biểu sinh của lão hóa và bệnh liên quan đến lão hóa. J. Gerontol. Một Sinh học. Khoa học. y tế. Khoa học. 2014, 69, S17–S20. [CrossRef] [PubMed]
6. Moskalev, AA; Alip, AM; Smit-McBride, Z.; Buzdin, A.; Zhavoronkov, A. Di truyền học và biểu sinh của lão hóa và tuổi thọ. Chu kỳ tế bào 2014, 13, 1063–1077. [Tham khảo chéo]
7. Lee, K.; Kunkeaw, N.; Jeon, SH; Lee, tôi.; Johnson, BH; Kang, GY; Bang, JY; Công viên, HS; Leelayuwat, C.; Lee, YS Precursor miR-886, một RNA không mã hóa mới bị ức chế trong bệnh ung thư, liên kết với PKR và điều chỉnh hoạt động của nó. ARN 2011, 17, 1076–1089. [CrossRef] [PubMed]
8. Công viên, JL; Lý, YS; Bài hát, MJ; Hồng, SH; An, JH; Seo, EH; Tín, SP; Lý, SJ; Johnson, BH; Stampfer, MR; et al. Quy định biểu sinh của phiên mã RNA polymerase III trong quá trình hình thành khối u vú sớm. Oncogene 2017, 36, 6793–6804. [CrossRef] [PubMed]
9. Lee, KS; Shin, S.; Cho, E.; Im, WK; Jeon, SH; Kim, Y.; Công viên, D.; Frechet, M.; Chajra, H.; Jung, E. nc886, một RNA không mã hóa, ức chế biểu hiện MMP-9 và COX-2 do UVB gây ra thông qua con đường PKR trong tế bào sừng của con người. hóa sinh. lý sinh học. độ phân giải cộng đồng. 2019, 512, 647–652. [CrossRef] [PubMed]
10. Lee, KS; Cho, E.; Weon, JB; Công viên, D.; Frechet, M.; Chajra, H.; Jung, E. Ức chế viêm do tia UVB bằng chiết xuất Laminaria japonica thông qua Quy định về nc886-PKR Pathway. Chất dinh dưỡng 2020, 12, 1958. [CrossRef]
11. Kỷ, HG; Lý, YR; Lý, ThS; Hwang, KH; Kim, EH; Công viên, JS; Hong, YS Xác định epigallocatechin-3-O-(3-Omethyl)-gallate (EGCG300Me) và cấu hình axit amin trong các giống chè (Camellia sinensis L.) khác nhau. Tóm tắt dữ liệu. 2017, 14, 607–611. [Tham khảo chéo]
12. Kim, E.; Hân, SY; Hwang, K.; Kim, D.; Kim, EM; Hossain, MA; Kim, JH; Cho, JY Tác dụng chống oxy hóa và bảo vệ tế bào của (-)-Epigallocatechin-3-(300-O-methyl) Gallate. quốc tế J. Mol. Khoa học. 2019, 20, 3993. [CrossRef]
13. Hoàng, LH; Lưu, CY; Vượng, LÝ; Hoàng, CJ; Hsu, CH Tác dụng của chiết xuất trà xanh đối với phụ nữ thừa cân và béo phì với nồng độ cholesterol-lipoprotein-cholesterol (LDL-C) mật độ thấp (LDL-C) cao: Một thử nghiệm lâm sàng ngẫu nhiên, mù đôi và kiểm soát giả dược chéo. Bổ sung BMC. thay thế. y tế. 2018, 18, 294. [CrossRef] [PubMed]
14. Soares, S.; Soares, S.; Brandao, E.; Guerreiro, C.; Mateus, N.; de Freitas, V. Tương tác bằng miệng giữa chiết xuất flavanol trà xanh và chiết xuất anthocyanin rượu vang đỏ bằng mô hình dựa trên tế bào mới: Hiểu biết sâu sắc về tác dụng của các biểu mô miệng khác nhau. Khoa học. Rep. 2020, 10, 12638. [CrossRef] [PubMed]
15. Levi, N.; Papismadov, N.; Solomonov, I.; Sagi, tôi.; Krizhanovsky, V. Con đường lão hóa của ECM trong quá trình lão hóa: Các thành phần và bộ điều chỉnh. THÁNG 2 J. 2020, 287, 2636–2646. [CrossRef] [PubMed]
16. Pitozzi, V.; Mocali, A.; Laurenzana, A.; Giannoni, E.; Cifola, tôi.; Battaglia, C.; Chiarugi, P.; Dolara, P.; Giovannelli, L. Điều trị Resveratrol mãn tính Cải thiện sự kết dính của tế bào và giảm thiểu kiểu hình viêm trong các nguyên bào sợi ở người già. J. Gerontol. Ser. 2013, 68, 371–381. [CrossRef] [PubMed]
17. Coppe, JP; Patil, CK; Rodier, F.; Mặt trời, Y.; Muñoz, DP; Goldstein, J.; Nelson, Tái bút; Desprez, PY; Campisi, J. Các kiểu hình bài tiết liên quan đến tuổi già cho thấy các chức năng không tự trị của tế bào của RAS gây ung thư và chất ức chế khối u p53. PLoS sinh học. 2008, 6, 2853–2868. [Tham khảo chéo]
18. Tchkonia, T.; Chu, Y.; van Deursen, J.; Campisi, J.; Kirkland, JL Lão hóa tế bào và kiểu hình bài tiết lão hóa: Cơ hội trị liệu. J. Lâm sàng. điều tra. 2013, 123, 966–972. [CrossRef] [PubMed]
19. Munoz-Espin, D.; Serrano, M. Lão hóa tế bào: Từ sinh lý đến bệnh lý. tự nhiên Mục sư Mol. Tế bào sinh học. 2014, 15, 482–496. [Tham khảo chéo]
20. Lagger, G.; O'Carroll, D.; Rembold, M.; Khier, H.; Tischler, J.; Weitzer, G.; Schuettengruber, B.; Hauser, C.; Brunmeir, R.; Jenuwein, T.; et al. Một chức năng thiết yếu của histone deacetylase 1 trong kiểm soát tăng sinh và ức chế chất ức chế CDK. EMBO J. 2002, 21, 2672–2681. [CrossRef] [PubMed]
21. Freitas-Rodriguez, S.; Folguera, AR; Lopez-Otin, C. Vai trò của metallicoproteinase ma trận trong quá trình lão hóa: Tái tạo mô và hơn thế nữa. sinh học. lý sinh học. Hành động Mol. Tế bào Res. 2017, 1864, 2015–2025. [Tham khảo chéo]
22. Victorelli, S.; Passos, Phát hiện các loài oxy phản ứng JF trong các tế bào lão hóa. Phương pháp Mol. Sinh học 2019, 1896, 21–29. [PubMed]
23. Puvvula, Mạng lưới điều tiết PK LncRNAs trong quá trình lão hóa tế bào. quốc tế J. Mol. Khoa học. 2019, 20, 2615. [CrossRef] [PubMed]
24. Trần, YN; Cái, TÔI; Từ, S.; Mạnh, M.; Ren, X.; Dương, JW; Đồng, YQ; Lưu, X.; Dương, JM; Xiong, XD Xác định lncRNA, AK156230, như một chất điều hòa mới của quá trình lão hóa tế bào trong nguyên bào sợi phôi chuột. Oncotarget 2016, 7, 52673–52684. [CrossRef] [PubMed]
25. Abdelmohsen, K.; Gấu trúc, A.; Kang, MJ; Từ, J.; Selimyan, R.; Yoon, JH; Martindale, JL; De, S.; Gỗ, WH, thứ 3; Becker, KG; et al. Các lncRNA liên quan đến lão hóa: Các RNA không mã hóa dài liên quan đến lão hóa. Tế bào Lão hóa 2013, 12, 890–900. [Tham khảo chéo]
26. Montes, M.; Lund, AH Vai trò mới nổi của lncRNA trong tuổi già. THÁNG 2 J. 2016, 283, 2414–2426. [CrossRef] [PubMed]
27. Carrieri, C.; Cimatti, L.; Biagioli, M.; Beugnet, A.; Zucchelli, S.; Fedele, S.; Pesce, E.; Ferrer, tôi.; Collavin, L.; Santoro, C.; et al. RNA đối nghĩa dài không mã hóa kiểm soát quá trình dịch Uchl1 thông qua lặp lại SINEB2 được nhúng. Thiên nhiên 2012, 491, 454–457. [Tham khảo chéo]
28. Kretz, M.; Siprashvili, Z.; Chu, C.; Webster, DE; Zehnder, A.; Qu, K.; Lý, CS; Flockhart, RJ; Groff, AF; Chow, J.; et al. Kiểm soát sự khác biệt của mô soma bằng TINCR RNA không mã hóa dài. Thiên nhiên 2013, 493, 231–235. [CrossRef] [PubMed]
29. Kumar, PP; Emechebe, U.; Smith, R.; Franklin, S.; Moore, B.; Yandell, M.; Ít hơn, SL; Moon, AM Phối hợp kiểm soát quá trình lão hóa bằng lncRNA và phức hợp đồng ức chế T-box3 mới. Elife 2014, 3, e02805. [Tham khảo chéo]
30. Freund, A.; Laberge, RM; Demaria, M.; Mất Campisi, J. Lamin B1 là một dấu ấn sinh học liên quan đến tuổi già. mol. sinh học. Ô 2012, 23, 2066–2075. [Tham khảo chéo]
31. Gal-Ben-Ari, S.; Barrera, tôi.; Ehrlich, M.; Rosenblum, K. PKR: Một Kinase đáng nhớ. Đằng trước. mol. Thần kinh học. 2018, 11, 480. [CrossRef] [PubMed]
32. Mã, CH; Ngô, CH; Jou, IM; Tú, YK; Hùng, CH; Hsieh, PL; Tsai, kích hoạt KL PKR gây viêm và bài tiết MMP-13 trong các tế bào sụn khớp bị thoái hóa ở người. Redox Biol. 2018, 14, 72–81. [CrossRef] [PubMed]
33. Vương, Y.; Đàn ông, M.; Tạ, B.; Sơn, J.; Vương, C.; Lưu, J.; Trịnh, H.; Dương, W.; Xue, S.; Guo, C. Sự ức chế PKR bảo vệ chống lại tổn thương do H2O2 -gây ra đối với các tế bào cơ tim của trẻ sơ sinh bằng cách làm giảm quá trình chết theo chương trình và viêm nhiễm. Khoa học. Dân biểu 2016, 6, 38753–38763. [CrossRef] [PubMed]
Yuna Kim 1 , Hyanggi Ji 1 , Eunae Cho 1 , Nok-Hyun Park 2 , Kyeonghwan Hwang 2 , Wonseok Park 2 , Kwang-Soo Lee 1 , Deokhoon Park 1 và Eunsun Jung 1,*.
1 Viện Khoa học Đời sống Biospectrum, A-1805, U-TOWER, Yongin-si 16827, Hàn Quốc; bioyn@biospectrum.com (YK); biocr@biospectrum.com (HJ); biozr@biospectrum.com (EC); bioyc@biospectrum.com (K.-SL); pdh@biospectrum.com (DP)
2 Phòng Nghiên cứu Cơ bản và Đổi mới, Trung tâm R&D của Tập đoàn Amorepacific, Youngin-si 17074, Hàn Quốc; aquareve@amorepacific.com (N.-HP); khhwang@amorepacific.com (KH); wspark@amorepacific.com (WP)
* Correspondence: bioso@biospectrum.com
For more information:1950477648@nn.com