

Phần 2 Đột biến ERCC1 cản trở việc sửa chữa tổn thương DNA và gây ra rối loạn chức năng gan và thận ở bệnh nhân
Mar 25, 2022
Liên hệ: ali.ma@wecistanche.com
Bấm vào đây để đến phần 1
Phần 2

Nhấp vào Cistanche NZ cho bệnh thận
Thảo luận
Một trường hợp mới của bi-alenERCC1đột biến Chỉ có hai cá thể cùng alenERCC1Các đột biến đã được báo cáo cho đến nay, cả hai đều hiển thị các tính năng giống CS. Cá thể bị ảnh hưởng nghiêm trọng nhất (165TOR) có một biến thể vô nghĩa (Q158X) và một biến thể sai lầm F231L trong mô-típ (HhH) 2 của ERCC1 (Hình. S5 F), biểu hiện chậm phát triển, không phát triển và mắc chứng co cứng, và chết sau khi năm đầu tiên của cuộc đời do viêm phổi (Jaspers và cộng sự, 2007). Cá thể thứ hai bị ảnh hưởng (CS20LO) bị co cứng, tật đầu nhỏ và chứng tăng trương lực cơ và đồng hợp tử với biến thể F231L và chết vào năm thứ hai của cuộc đời (Kashiyama và cộng sự, 2013).
Chúng tôi báo cáo hai anh chị em ruột với bi-allelicERCC1mutations—a paternally inherited missense variant (p.R156W; c.466C>T) và alen không do di truyền gen mẹ. Tất cả protein ERCC1 còn lại được biểu hiện trong các tế bào của những bệnh nhân này mang axit amin thay thế R156W, phá vỡ cầu nối muối giữa phần dư R156 tích điện dương và phần dư D129 tích điện âm đối lập nằm ngay dưới túi liên kết XPA ở miền trung tâm củaERCC1. Tác động của sự thay thế này là gấp đôi: (1) nó làm giảm mạnh tính ổn định tổng thể của ERCC1 và đối tác ràng buộc XPF của nó, và (2) nó ảnh hưởng cụ thể đến tác động tương hỗ với XPA (Hình 9).
Giảm mức protein hạt nhân của ERCC1 do phân chia sai một phần
Phân tích Western blot và miễn dịch huỳnh quang cho thấy tổng thểERCC1and XPF protein levels are dramatically reduced to below 20% of WT levels in the fibroblasts from both siblings. This effect is also recapitulated by the bi-allelic KI of the missense mutation (p.R156W; c.466C>T) trong nội sinhERCC1quỹ tích của các ô RPE 1- hTERT. Điều thú vị là mất hoàn toàn ERCC1 ở chuột dẫn đến tử vong trong vòng 4 tuần, trong khi tăng mức protein lên khoảng 15% mức ở chuột WT đã làm tăng tuổi thọ lên gấp 5 lần (Weeda và cộng sự, 1997), cho thấy rằng mức ERCC1 thậm chí còn thấp tăng đáng kể khả năng tồn tại. Phù hợp với những phát hiện của chúng tôi, các nghiên cứu trước đây đã chỉ ra rằng các đột biến sai lệch trong miền trung tâm củaERCC1thường gây ra sự mất ổn định (Sijbers và cộng sự, 1996b), chỉ ra rằng vùng này rất quan trọng đối với sự ổn định của protein.

Cấu trúc kính hiển vi điện tử đông lạnh được báo cáo gần đây có chiều dài đầy đủERCC1-XPF heterodimer (Jones và cộng sự, 2020) tiết lộ rằngERCC1R156cặn nằm ở rìa của heterodimer. Chúng tôi suy đoán rằng sự cồng kềnh gia tăng và cấu trúc điện tử bị thay đổi của sự thay thế arginine bằng tryptophan không chỉ làm rối loạn túi liên kết XPA mà còn cả giao diện đồng phân hóa giữa miền trung tâm của ERCC1 và miền nuclease của XPF, gây ra sự mất ổn định chung (Hình. S5 F). Đáng quan tâm, biến thể sai XPFR799W nằm ở cùng một giao diện ở phía XPF (Hình. S5 F) và cũng dẫn đến sự mất ổn định và giảm nghiêm trọng mức protein XPF (Mori et al., 2018). Ở một cá thể bị ảnh hưởng (CALIF1010) có các đặc điểm giống CS và progeroid phân đoạn, biến thể XPFR799W được di truyền cùng với sự mất đoạn giữa gen ở alen XPF khác, dẫn đến khiếm khuyết NER mạnh kết hợp với khiếm khuyết sửa chữa ICL nhẹ (Mori et al., 2018), tương tự như các anh chị em được báo cáo trong nghiên cứu này.
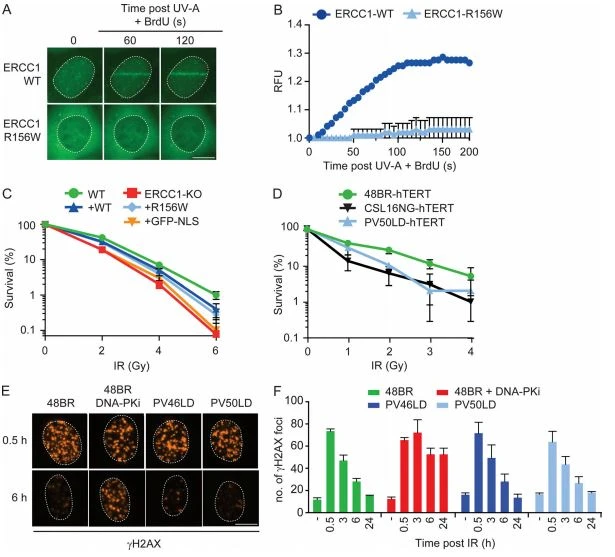
Biểu hiện ngoài tử cung của một phiên bản cảm ứng củaERCC1R156Wtrong 24 giờ cho phép chúng tôi đạt được mức WT của protein đột biến này, dẫn đến sự phân hóa sai trong tế bào chất, giảm tương tác với XPF và tăng tương tác với các chaperones gấp protein, như được phát hiện bởi MS. Tất cả những phát hiện này, hỗ trợ cho quan điểm rằngERCC1R156Wbị gập lại một phần và phân hủy trong tế bào bệnh nhân, dẫn đến giảm -80 phần trăm mức protein hạt nhân ERCC1. KI của ERCC1R156W trong ô RPE 1- hTERT hỗ trợ kết luận này.
Khi so sánhERCC1và mức protein XPF trong tế bào PV46LD và PV50LD với mức protein trong tế bào của những người bị ảnh hưởng nghiêm trọng hơn (165TOR và CS20LO), chúng tôi lưu ý rằng mức độ này là tương đương, hoặc thậm chí có thể thấp hơn, trong các tế bào của các anh chị em được mô tả trong nghiên cứu này (Hình 3 C và Hình S3, E và F; Jaspers và cộng sự, 2007; Kashiyama và cộng sự, 2013). Lưu ý rằng CS20LO là đồng hợp tử đối với ERCC1F231L, trong khi 165TOR là dị hợp tử và mang thêm một điểm dừng sớm khácERCC1alen (Q158X). Những phát hiện này cho thấy rằng ngoài việc giảm mức độ protein, chức năng của protein đột biến vẫn được biểu hiện và sự kết hợp của hai alen đột biến cần được tính đến như một bộ điều chỉnh tiềm năng của mức độ nghiêm trọng và biểu hiện kiểu hình.

ERCC1R156W: Tác động khác biệt đến các con đường sửa chữa DNA phụ thuộc vào ERCC 1-
Sự biểu hiện của ERCC1R156W-GFP trong tế bào ERCC 1- KO ở các cấp độ tương tự như ERCC1WT cho phép chúng tôi gỡ bỏ tác động của sự thay thế axit amin đối với sự ổn định của protein khỏi tác động lên chức năng của protein. Mặc dù protein ERCC1R156W đột biến bị suy giảm nghiêm trọng trong tương tác do tia UV gây ra với XPA và cá và không thể xác định vị trí hiệu quả vào các vị trí tổn thương DNA do tia UV gây ra, chúng tôi vẫn phát hiện hoạt động sửa chữa đáng kể (∼40%) trong các xét nghiệm UDS, những trường hợp sống sót sau khi tạo dòng, và các xét nghiệm NER trong ống nghiệm. Những phát hiện này cho thấy rằng một protein ERCC1 đột biến chỉ tương tác rất yếu với phức hợp NER vẫn có thể hỗ trợ mức độ đáng kể của hoạt động NER (∼40%) bên trong tế bào. Kết hợp với nhau, những phát hiện này cho thấy rằng mức độ biểu hiện thấp củaERCC1 (∼20 phần trăm) kết hợp với hoạt động GGR còn lại của các protein đột biến vẫn được biểu hiện cung cấp đủ bảo vệ để ngăn PV46LD và PV50LD phát triển XP toàn diện. Thật vậy, hoạt động GGR còn lại vẫn được phát hiện trong các điều kiện nhạy cảm hơn trong các xét nghiệm UDS khi so sánh với các nguyên bào sợi của một bệnh nhân XP-A bị ảnh hưởng nặng và dễ bị ung thư. Tuy nhiên, cả hai bệnh nhân vẫn có thể có nguy cơ phát triển ung thư da và do đó, nên bảo vệ khỏi ánh nắng mặt trời. Hoạt động còn lại trong các ô PV46LD và PV50LD tương tự hoặc thấp hơn hoạt động sửa chữa mà chúng tôi phát hiện trong các ô 165TOR hoặc CS20LO (Hình 6 J; Jaspers và cộng sự, 2007; Kashiyama và cộng sự, 2013). Do đó, mức độ nghiêm trọng lâm sàng không tương quan với hoạt động của NER nhưng có thể là do vai trò của ERCC1 bên ngoài NER rất quan trọng trong quá trình phát triển.
Mặc dù phát hiện của chúng tôi rằng ERCC1R156W cho thấy sự giảm tương tác với SLX4 và cũng được tuyển chọn kém hiệu quả hơn vào các vị trí cảm ứng ICL cục bộ, phân tích sâu hơn cho thấy rằng protein đột biến ERCC1R156W chỉ bị ảnh hưởng nhẹ trong việc hỗ trợ sửa chữa ICL khi biểu hiện ngoại vi trong ERCC 1- KO ô. Tuy nhiên, tác động đối với việc sửa chữa ICL nhẹ hơn nhiều so với tác động của sự thay thế R156W trên NER, kết hợp với những phát hiện trước đó rằng việc sửa chữa ICL đòi hỏi ít protein ERCC1 hơn nhiều so với việc sửa chữa các tổn thương DNA đặc hiệu NER (Jaspers et al. , 2007; Sijbers và cộng sự, 1996b), có thể giải thích rất rõ tác động nhẹ đến việc sửa chữa ICL. Ở các nguyên bào sợi của bệnh nhân, có mức ERCC1 giảm mạnh, chúng tôi đã phát hiện thấy độ nhạy vừa phải, cũng như tăng sự đứt gãy nhiễm sắc thể khi tiếp xúc với hợp chất gây cảm ứng ICL MMC, mặc dù nhẹ hơn nhiều so với các tế bào từ một bệnh nhân FA được đưa vào song song. Điều quan trọng là cả PV46LD và PV50LD đều không có bất kỳ dấu hiệu công khai nào về các đặc điểm lâm sàng giống FA, cho thấy rằng protein đột biến ERCC1R156W cung cấp đủ khả năng bảo vệ chống lại lượng ICL nội sinh thấp ở những bệnh nhân này.

Thiếu ERCC1 gây suy gan và thận
Những con chuột bị KO đối với ERCC1 hoặc XPF có biểu hiện chạy nghiêm trọng (tức là nhỏ hơn và yếu hơn chuột WT) và chết trước 4 tuần đầu tiên của cuộc đời do suy gan nặng (McWhir và cộng sự, 1993; Sijbers và cộng sự, 1996b; Tian và cộng sự, 2004; Weeda và cộng sự, 1997). Biểu hiện cụ thể ở gan của ERCC1 ở những con chuột này đã điều chỉnh một phần kích thước nhỏ hơn và kéo dài tuổi thọ lên đến 12 tuần nhưng cũng cho thấy mức độ nghiêm trọngrối loạn chức năng thậnvà suy thận là nguyên nhân tử vong thứ phát (Selfridge và cộng sự, 2001). Chuột KO đặc hiệu cho XP hoặc FA không biểu hiện bệnh gan, cho thấy kiểu hình này không phải do lỗi sửa chữa NER hoặc ICL gây ra. Có thể sự dư thừa một phần giữa hai con đường này, bị mất trong ERCC 1- KO chuột thiếu cả hai con đường, có thể giải thích kiểu hình này. Phù hợp với ý tưởng này, tế bào gan vàtế bào ống thận-gầntrở thành đa bội ở chuột ERCC 1- KO và tích lũy mức p53 cao (McWhir và cộng sự, 1993; Selfridge và cộng sự, 2001; Weeda và cộng sự, 1997), cho thấy rằng sự tích tụ của tổn thương DNA nội sinh trong các cơ quan này có thể xảy ra. Tuy nhiên, bản chất chính xác của tổn thương DNA nội sinh này vẫn chưa rõ ràng.
Điều thú vị là những con chuột bị bất hoạt chung của cả sửa chữa NER và ICL không biểu hiện rối loạn chức năng gan, cho thấy rằng sự dư thừa giữa các con đường sửa chữa DNA này không phải là lời giải thích duy nhất và rằng một chức năng bổ sung của ERCC 1- XPF bên ngoài các con đường sửa chữa DNA này góp phần suy gan (Mulderrig và Garaycoechea, 2020). Có thể ERCC 1- XPF tham gia vào các con đường sửa chữa DNA bổ sung để giải quyết các tổn thương DNA nội sinh. Ví dụ: ERCC 1- XPF gần đây đã được chứng minh là hoạt động dựa trên các cấu trúc DNA thay thế, chẳng hạn như Z-DNA, trong đó nó hợp tác với các protein sửa chữa không phù hợp hơn là các yếu tố sửa chữa NER hoặc ICL (McKinney và cộng sự, 2020). Ngoài ra, ERCC 1- XPF đã được chứng minh là có liên quan đến một con đường phụ sửa chữa vết cắt cơ sở cùng với vi khuẩn RECQ1 (Woodrick và cộng sự, 2017).
Hai anh em ruột (PV46LD và PV50LD) trong nghiên cứu này có biểu hiện không phát triển mạnh, tầm vóc thấp và thiếu lớp mỡ dưới da, gợi nhớ đến kích thước nhỏ được quan sát thấy ở chuột ERCC 1- KO (McWhir và cộng sự, 1993; Selfridge và cộng sự, 2001; Weeda và cộng sự, 1997). Hơn nữa, các anh chị em đều bị suy gan với hình ảnh chủ yếu là ứ mật dẫn đến việc ghép gan trực tiếp trước 9 tuổi. Sự can thiệp này rõ ràng đã ngăn ngừa tử vong sớm nhưng không cải thiện tình trạng không phát triển được, thể hiện rõ ở sự tăng trưởng sau ghép về cân nặng, chiều cao và chu vi vòng đầu thấp hơn trung tâm thứ ba.
Đáng quan tâm, bệnh gan ứ mật được báo cáo là một đặc điểm phổ biến ở bệnh nhân CS Ai Cập, cho thấy điều này nên được theo dõi chặt chẽ hơn ở bệnh nhân CS đến từ các sắc tộc khác để xem liệu đây có phải là đặc điểm phổ biến hơn đã được công nhận trước đây hay không (Abdel Ghaffar et al. , 2011). Mặc dù không có bất thường về gan nào được mô tả ở bệnh nhân XP, nhưng có một số trường hợp phân hủy tế bào gan (phá vỡ hoặc vỡ tế bào) ở bệnh nhân FA (Masserot-Lureau và cộng sự, 2012), có thể khác biệt với những bất thường về gan được quan sát thấy trong ERCC Thiếu 1- anh chị em ruột. Kiểm tra mô học của sinh thiết gan từ anh chị em lớn tuổi hơn (PV50LD) cho thấy những thay đổi về hình thái tế bào gan với sự mở rộng và biến đổi nhân, như được ghi nhận ở những con chuột thiếu ERCC 1- (Hình. S1 D; N´uñez và cộng sự, 2000 ).
Nguyên nhân thứ hai gây tử vong ở chuột ERCC 1- KO có biểu hiện ERCC1 đặc hiệu ở gan là nghiêm trọngsuy thận(Selfridge và cộng sự, 2001). Cả hai anh chị em đều có biểu hiện rối loạn chức năng thận, với các đặc điểm gợi ý rối loạn chức năng ống thận gần dẫn đến tiến triểnquả thậnsự suy yếu. Tuy nhiên, chức năng ống đã ổn định sau khi ghép gan, nhưngquả thậnhàm sốyêu cầu giám sát liên tục. Kiểu hình thận của chuột ERCC 1- KO — với các ống dẫn giãn nở chứa vật liệu protein bị rò rỉ phù hợp với bệnh viêm ống dẫn trứng (McWhir và cộng sự, 1993; Selfridge và cộng sự, 2001; Weeda và cộng sự, 1997) - tương tự của những bệnh nhân được mô tả trong nghiên cứu của chúng tôi. Hơn nữa, suy thận và trong một số trường hợp, suy thận đã được báo cáo trong XP / CS kết hợp (Ben Chehida và cộng sự, 2017; Kondo và cộng sự, 2016; Kralund và cộng sự, 2013) cũng như CS (Funaki và cộng sự. ., 2006; Reiss và cộng sự, 1996; Sato và cộng sự, 1988), trong khi mối liên hệ giữa FA và các dị thường cấu trúc củaquả thậnhas also been reported (Sathyanarayana et al., 2018). The phenotype in these siblings is distinct from prior reports of individuals with biallelic ERCC1 mutations and also distinct from the known phenotypic entities, CS and XP. Neither individual had features suggestive of FA. There may be parallels between the phenotype of these siblings and a previously reported individual with biallelic ERCC1 mutations (XP2020DC; p.K266X; IVS6-26G>A) chết ở tuổi 37 (Gregg et al., 2011; Imoto, K., et al. 2007. Bệnh nhân có khiếm khuyết trong các protein sửa chữa cắt bỏ nucleotide tương tác ERCC1 hoặc XPF có biểu hiện xeroderma pigmentosum với bệnh thoái hóa thần kinh nặng khởi phát muộn . [Tóm tắt] J. Invest.Dermatol. 127: S92). Mặc dù không có suy giảm chức năng gan nào được báo cáo, bệnh nhân này bị teo não nghiêm trọng ở tuổi 15, tiến triển thành thoái hóa thần kinh tiến triển kèm theo chứng sa sút trí tuệ. Teo não nhẹ cũng đã được ghi nhận ở cả hai anh chị em ở độ tuổi 13 và 11, cho thấy rằng sự phát triển thần kinh của cả hai anh chị em cần được theo dõi cẩn thận.
A previously reported 15-yr-old boy with bi-allelic XPF mutations (XP51RO; p.R153P; c.458G>C; Jaspers và cộng sự, 2007; Niedernhofer và cộng sự, 2006) trình bày kiểu hình có một số trùng lặp với các anh chị em được báo cáo ở đây, bao gồm nhạy cảm với ánh sáng mà không bị ung thư da, tầm vóc thấp, thiếu lớp mỡ dưới da, chậm phát triển và suy thận (Niedernhofer và cộng sự, 2006). Khác biệt với các anh chị em được báo cáo ở đây, cậu bé này cho thấy các đặc điểm tuyến giáp rõ rệt, nhưng hình ảnh gan nhẹ hơn nhiều không có ứ mật. Các anh chị em được báo cáo ở đây chứng minh rằng đột biến ERCC1 hai alen có thể gây ra một loạt các kiểu hình, từ đó thường thấy ở CS cho đến một kiểu hình bao gồm tầm vóc thấp hơn, nhạy cảm với ánh sáng và gan nặng vàquả thậnsự suy yếu, có khả năng là do tác động mạnh kết hợp lên NER và tác động đồng thời đến việc sửa chữa ICL, có thể ảnh hưởng đặc biệt đến các cơ quan này.
Nguyên liệu và phương pháp
Tất cả các quy trình được thực hiện trong nghiên cứu này đều tuân theo các tiêu chuẩn đạo đức và đã được Ủy ban Đạo đức Con người của Bệnh viện Nhi đồng Hoàng gia, Melbourne, Victoria, Úc (HREC36291C) và Ủy ban Dịch vụ Đạo đức Nghiên cứu Quốc gia Vương quốc Anh, North East – Newcastle và North Tyneside phê duyệt 2. Bệnh nhân được tuyển chọn vào Chương trình Bệnh chưa được chẩn đoán dành cho bệnh nhi mắc chứng rối loạn Mendel "mồ côi" được cho là. Nước bọt hoặc mẫu máu của bệnh nhân và các thành viên gia đình của họ được thu thập để tách chiết DNA bộ gen sau khi có sự đồng ý bằng văn bản. Cha mẹ đã cho phép hiển thị các bức ảnh chưa được chỉnh sửa của anh chị em bị ảnh hưởng trong Hình 1 A.
Next-generation sequencing (NGS) DNA extracted from the blood of both affected siblings and unaffected parents was subjected to exome capture and sequencing through Oxford Gene Technologies Ltd. Genomic data were analyzed using a custom-made in-house pipeline using an autosomal recessive disease model. A paternally inherited missense variant in NM_202001.2 (ERCC1), g.45922415G>A, c.466C>T được xác định ở cả hai cá thể bị ảnh hưởng ở exon 4/8 của gen ERCC1. Khi thẩm vấn ban đầu về dữ liệu exome ở cả hai cá thể bị ảnh hưởng, biến thể này dường như ở trạng thái đồng hợp tử nhưng có mặt ở trạng thái dị hợp tử ở bố và không có ở mẹ, điều này cho thấy có khả năng loại bỏ alen mẹ. Biến thể sai lệch có trong cơ sở dữ liệu gnomAD với tần suất 0. 01 phần trăm (22 dị hợp tử, không có đồng hợp tử) và chưa được báo cáo trước đây ở những cá thể bị ảnh hưởng. Biến thể sai đã được lưu vào cơ sở dữ liệu LOVD (http://www.LOVD.nl/ERCC1_000020 và http://www.LOVD.nl/ERCC1_000021) và cơ sở dữ liệu ClinVar ( ID biến thể: 978472).
Phát hiện xóa bằng qPCR
Để phát hiện sự mất đoạn, DNA bộ gen được chiết xuất từ tế bào lympho / tế bào biểu mô, và vùng liên quan của gen ERCC1 được khuếch đại trong qPCR. qPCR được thực hiện bằng cách sử dụng các đầu dò và mồi cụ thể (được liệt kê trong Bảng S1) được thiết kế bằng cách sử dụng Trung tâm thiết kế thử nghiệm thăm dò phổ quát (Roche) và được tổng hợp bởi Sigma-Aldrich. Các đoạn mồi được thiết kế để bao gồm vùng bị xóa ở exon 4 và vùng nằm trong gen không bị xóa như đối chứng (exon 5). Một qPCR đa hợp sử dụng hỗn hợp phản ứng LightCycler R 48 0 Probes Master (Roche) được thực hiện theo giao thức của nhà sản xuất để khuếch đại và định lượng vùng gen ERCC1, sử dụng gen CFTR (exon 27) làm chuẩn nội bộ (Bảng S1). QPCR được thực hiện trên thiết bị LightCycler R 480 (Roche) và phân tích dữ liệu được thực hiện bằng phần mềm LightCycler R 480 phiên bản 1.5.0 (Roche). Các hướng dẫn của Đại học Y khoa về Di truyền học Hoa Kỳ đã được tuân theo để giải thích sự biến đổi trình tự.
Phát hiện biến thể sai bằng giải trình tự Sanger
DNA bộ gen được phân lập bằng cách sử dụng lại các viên tế bào trong dung dịch đệm lysate toàn tế bào (5 0 mM KCL, 1 0 mM Tris, pH 8. 0, 25 mM MgCl2, {{12} } .1 mg / ml gelatin, 0. 45 phần trăm Tween -20 và 0,45 phần trăm NP -40) chứa 0,1 mg / ml Proteinase K (EO0491; ThermoFisher Scientific) và ủ trong 1 h ở 56 độ, sau đó là 10- phút nhiệt bất hoạt tối thiểu của Proteinase K ở 96 độ. Các đoạn 1 kb kéo dài các đột biến sai lệch được khuếch đại PCR (các đoạn mồi trình tự được liệt kê trong Bảng S1) sau đó được giải trình tự Sanger bằng cách sử dụng đoạn mồi thuận hoặc nghịch.
Dòng tế bào
Các dòng tế bào nguyên bào sợi được thiết lập từ sinh thiết da của cả cá nhân và cha mẹ bị ảnh hưởng. Tất cả các dòng tế bào (liệt kê trong bảng S2) được nuôi cấy ở 37 độ trong môi trường 5% CO2 indium (Thermo Fisher Scientific) bổ sung penicilin / streptomycin (Sigma-Aldrich) và 10% FBS (Bodinco BV). Tất cả các dòng tế bào đều được xét nghiệm định kỳ để tìm nhiễm mycoplasma.
Bất tử nguyên bào sợi với hTERT
Các nguyên bào sợi WT (48BR) và PV50LD được bất tử bằng cách tách nhân của p Babe-Neo-TERT (Addgene Plasmid # 1774) bằng cách sử dụng Amaxa Nucleofector (chương trình U23). Mỗi điện tích chứa 400, 000 nguyên bào sợi và 2,5 µg DNA plasmid. Sau khi kết hợp bằng điện, tế bào được gieo vào bình nuôi cấy mô 25- cm2 có chứa 5 ml DMEM và 10 phần trăm FBS. Sau 2 ngày, môi trường nuôi cấy được thay thế bằng môi trường chứa 20 µg / ml neomycin.
/ streptomycin (Sigma-Aldrich) và 10 phần trăm FBS (Bodinco BV). Tất cả các dòng tế bào đều được xét nghiệm định kỳ để tìm nhiễm mycoplasma.
Cấu trúc plasmid
All plasmids used in this study are listed in Table S3. The GFP gene in pERCC1-GFP-N1 (Houtsmuller et al., 1999) was replaced with m Venus (a gift of Joachim Goedhart, Amsterdam, Netherlands) using AgeI and BsrGI. The GFP-NLS gene (Luijsterburg et al., 2017) was inserted into pcDNA5-FRT-TO-Puro. The ERCC1-m Venus cassette was amplified by PCR (see Table S1 for primers) and inserted as a NheI and BspEI fragment into plenty-CW57-TO-GFP digested with NheI and AgeI to generate plenty-CW57-TO-ERCC1WT-mVenus. Overlap PCR was used to introduce the c.466C>Đột biến T trong ERCC1. Sản phẩm PCR chồng chéo đã được chèn dưới dạng phân đoạn NheI và AgeI để tạo ra nhiều CW 57- TO-ERCC1R156W-mVenus. ERCC1WT và ERCC1R156Được chèn dưới dạng các đoạn NheI và AgeI vào pcDNA 5- FRT-TO Puro-EGFP-N1 để tạo pcDNA 5- FRT-TO-Puro-ERCC1WT-EGFPand pcDNA 5- FRT-TO -Puro-ERCC1R156W-EGFP. Gây đột biến hướng vào vị trí đã được sử dụng để tạo đột biến điểm trong pMacro Bac-XPF-ERCC1WT bằng cách sử dụng bộ gây đột biến KOD-plus (Toyobo) như được mô tả trong giao thức của nhà sản xuất, sử dụng các primer được liệt kê trong Bảng S1. Tất cả các trình tự đã được xác minh bằng giải trình tự Sanger.
Tạo ra tế bào KO
các dòng để tạo các tế bào KO đơn lẻ, U2OS (FRT) và RPE 1- hTERT (PuroR / TP 53- dKO) đã được đồng chuyển giao với mã hóa pLV-U6g-PPB một RNA dẫn đường từ Trung tâm Y tế Đại học Leiden / Sigma -Thư viện RNA hướng dẫn đơn (sgRNA) phong phú (xem Bảng S3 cho plasmid và Bảng S4 cho trình tự sgRNA) nhắm mục tiêu genERCC1 cùng với mã hóa vectơ biểu hiện Cas 9-2 A-GFP (pX458; Addgene # 48138) bằng cách sử dụng Lipofectamine 2000 (Invitrogen). Tế bào U2OS (FRT) đã truyền nhiễm được chọn trên puromycin (1 µg / ml) trong 3 ngày và được mạ ở mật độ thấp, sau đó các dòng riêng lẻ được phân lập. Các tế bào RPE 1- được truyền nhiễm được FACS phân loại trên BFP / GFP và được mạ ở mật độ thấp, sau đó các dòng vô tính riêng lẻ được phân lập. KO nhân bản đã được xác minh bằng phân tích Western blot. Sự vắng mặt của biểu hiện tích hợp / ổn định Cas9 đã được xác nhận bởi Western blot.
Tạo ra các dòng tế bào ổn định
Một bản sao ERCC1 KO duy nhất trong nền U2OS (FRT) (xem bảng S2) đã được sử dụng để thể hiện ổn định ERCC1WT-GFP, ERCC1R156W-GFP hoặc GFP-NLS bằng cách đồng truyền mã hóa pcDNA 5- FRT-TO-Puroplasmid cDNA (2 µg), cùng với pOG44plasmid mã hóa tái tổ hợp Flp (0. 5 µg). Một quần thể tế bào đa dòng thu được sau khi chọn 1 µg / ml puromycin và 4 µg / ml blasticidin S. Sự biểu hiện của các ERCC1 được gắn thẻ GFP hoặc GFP-NLS được tạo ra bằng cách bổ sung 2 µg / ml doxycycline trong 24 giờ.
Tạo dòng tế bào KI
Để tạo KI đồng hợp tử, các tế bào RPE {{0}} hTERT lần đầu tiên được xử lý trong 30 phút bằng chất ức chế DNA-PK 1 µM (NU7441) để ngăn chặn việc sửa chữa DSB dễ bị lỗi và tăng việc sử dụng sửa chữa phụ thuộc vào tương đồng. Sau đó, 350, 000 tế bào được tiếp tục trong bộ đệm nucleofector 20 µl (V4XP -3032; Lonza) với sự hiện diện của 4,5 µg plasmid chứa Cas9 và sgRNA nhắm mục tiêu đến gen ERCC1 (xem Bảng S3 về plasmid và Bảng Trình tự S4 forsgRNA) và DNA của người hiến sợi đơn 100 µM chứa đột biến của bệnh nhân cũng như các đột biến im lặng để phá hủy vị trí PAM để ngăn chặn sự tái lập bởi Cas9 và các đột biến im lặng để tạo ra vị trí hạn chế HindIII nhằm tạo điều kiện sàng lọc các dòng KI. Các tế bào được mạ điện bằng Đơn vị phản ứng hạt nhân Amaxa 4D-X (Lonza) bằng chương trình EA -104. Sau quá trình điện hóa, các tế bào được mạ ở mật độ thấp trong môi trường McCoy với 10% FBS. Ngày hôm sau, môi trường được thay thế bằng DMEM (10% FBS và 1% penicilin / streptomycin), và các tế bào được phép hình thành khuẩn lạc. Khoảng 400 thuộc địa đã được phân lập và mở rộng. DNA bộ gen được phân lập, và một đoạn bao gồm đột biến được đưa vào và vị trí giới hạn được đưa vào (HindIII) được khuếch đại bằng PCR lồng nhau (xem Bảng S1 về đoạn mồi). Các mảnh PCR được tiêu hóa bằng HindIII (NEB) trong 3 giờ ở 37 độ và sau đó được phân tách bằng điện di trên gel. Các dòng vô tính có vị trí hạn chế HindIII được đưa vào được phân tích bằng giải trình tự Sanger (xem Bảng S1 về đoạn mồi). Chúng tôi thu được hai dòng KI đồng hợp tử trong số 400 dòng được phân tách, tương ứng với hiệu suất KI là ∼0,5 phần trăm.
Chuyển nạp siêu vi khuẩn
để truyền tải vi-rút, mVenus-ERCC1WT hoặc mVenus ERCC1R156W đã được chèn vào vectơ lentiviral pLenti-CW 57- TO. HEK293T đã bị lây nhiễm các vectơ mã hóa các hợp nhấtERCC1 này, VSV-G, RRE và REV bằng cách sử dụng JetPEI (Sigma Aldrich) để tạo ra vi rút. Phần nổi chứa vi rút được thu thập sau 24 giờ và được lọc bằng bộ lọc 0. 44- µm. Nguyên bào sợi sơ cấp PV46LD và PV50LD được chuyển nạp từ virut với sự hiện diện của polybrene (Sigma-Aldrich). Tế bào được chọn với 15 µg / ml puromycin. Sự biểu hiện của các protein ERCC1 được gắn thẻ mVenus được tạo ra bằng cách bổ sung doxycycline 2 µg / ml trong 24 giờ.
Các xét nghiệm về khả năng sống sót của dòng vô tính
Cells were trypsinized, seeded at low density, and allowed to attach. The next day, cells were either mock-treated or exposed to an increasing dose of UV light (1, 2, 3, and 4 J/m2 of UV-C 266nm), an increasing dose of IR (2, 4, 6, and 8 Gy), or increasing concentrations of MMC (2, 4, 6, and 8 ng/ml). After 7–9 d, the cells were washed with 0.9% NaCl and stained with methylene blue. Colonies of >20 ô đã được ghi. Các thí nghiệm về sự sống còn được thực hiện lặp đi lặp lại ít nhất hai lần.
Kết tủa miễn dịch cho Co-IP
Tế bào được xử lý mô phỏng hoặc chiếu xạ UV-C (2 0 J / m2) và thu hoạch sau 1 giờ. Các viên tế bào được ly giải trong 2 0 phút trên đá trong bộ đệm EBC -150 (50 mM Tris, pH 7,5, 150 mM NaCl, 0,5 phần trăm NP -40, 2 mM MgCl2 và chất ức chế protease cocktail [Roche]) bổ sung 500 U / ml Benzonase Nuclease (Novagen). Các ly giải tế bào được ủ trong 1,5 giờ ở 4 độ với các hạt GFP-Trap A (Chromotek). Sau đó, các hạt được rửa sáu lần bằng đệm EBC -150 (50 mM Tris, pH 7,5, 150 mM NaCl, 0,5 phần trăm NP -40, 1 mM EDTA và cocktail ức chế protease) và đun sôi trongLaemmli-SDS đệm mẫu.
phong cách phương Tây
Tế bào được tách nhỏ, rửa sạch bằng PBS và đun sôi trong 1 0 phút trong dung dịch đệm Laemmli (4 0 mM Tris, pH 6,8, 3,35 phần trăm SDS, 16,5 phần trăm glycerol, 0,0005 phần trăm Bromophenol Blue và 0,05 M dithiothreitol). Protein được tách ra trên 4% –12% gel Criterion XT Bis-Tris (# 3450124; Bio-Rad) trong bộ đệm NuPAGE MOPSrunning (NP 0001-02; Thermo Fisher Scientific) và thấm lên màng polyvinylidene fluoride (IPFL00010; EMD Millipore ). Màng được chặn bằng đệm chặn (MB -070-003; Đất đá) trong 1 giờ ở nhiệt độ phòng. Màng sau đó được thăm dò với các kháng thể (liệt kê trong Bảng S5) như đã chỉ ra. Hệ thống Odyssey CLx (LI-COR Biosciences) đã được sử dụng để phát hiện.
Thử nghiệm phục hồi RNA (RRS)
3 ô 0, 000 được gieo hạt trên các tấm phủ thủy tinh 12- mm nằm trong 24- các tấm giếng trong DMEM với 1 phần trăm FBS. Sau 24 giờ, các tế bào được chiếu xạ bằng UV-C với liều lượng 6 J / m2 và được ủ trong môi trường điều hòa trong các khoảng thời gian khác nhau ({{2 0}} h, 3 h và 18 h). Sau khi ủ, các bản sao sơ khai được đánh dấu bằng cách ủ các tế bào với 400 µM 5- ethynyl-uridine (CLK-N 002-10; Jena Bioscience), sau đó được hình dung bằng hỗn hợp Click-iT bao gồm 50 mM đệm Tris, pH 8.0, 60 µM Atto Azide (647N -101; ATTO-TEC), 4 mM CuSO4 • 5H2O, 10 mM L-ascorbic acid (A0278; Sigma-Aldrich) và 0,1 µg / ml DAPI (D1306; Thermo Fisher Scientific) trong 1 giờ. Tế bào được rửa ba lần trong 5 phút bằng PBS và được gắn trên kính hiển vi (Thermo Fisher Scientific) bằng cách sử dụng Aqua Polymount (Brunschwig).
Miễn dịch huỳnh quang
Đối với phương pháp nhuộm huỳnh quang miễn dịch, 25 tế bào 0, 000 đã được gieo hạt trên các tấm bìa thủy tinh 18- mm. Ngày hôm sau, các tế bào được cố định bằng 4 phần trăm paraformaldehyde, tiếp theo là quá trình thẩm thấu bằng {{1 0}}. 5 phần trăm Triton X -100 trong 1 0 phút. Các tế bào được xử lý bằng 100 glycine trong PBS trong 10 phút để chặn các nhóm aldehyde không phản ứng, rửa sạch bằng PBS và cân bằng trong dung dịch đệm rửa (PBS chứa 0,5% BSA và 0,05% Tween -20; Sigma-Aldrich) trong 10 phút. Các bước kháng thể và quá trình rửa đã ở trong đệm rửa. Các kháng thể chính được ủ trong 2 giờ ở nhiệt độ phòng, tiếp theo là các kháng thể thứ cấp trong 1 giờ và DAPI trong 5 phút. Các kháng thể chính và phụ được liệt kê trong TableS5. Các tế bào được ủ với 0,1 µg / ml DAPI và được gắn kết bằng Aqua Polymount.
Nhuộm H2AX
200, 000 tế bào được gieo hạt trên các tấm phủ thủy tinh 18- mm trong 24- đĩa giếng với DMEM (10 phần trăm FBS và 1 phần trăm P / S). Ngày hôm sau, các tế bào được chiếu tia hồng ngoại bằng máy phát tia X YXlon International (200 KV, 4 mA; tốc độ liều 2 Gy / phút). Tại các điểm thời gian đã chỉ định, các tế bào được cố định với 3% paraformaldehyde trong PBS trong 10 phút và nhuộm H2AX trong 1 giờ (xem ở trên). Hình ảnh được định lượng bằng cách sử dụng macro tùy chỉnh trong ImageJ cho phép phân tích tự động và khách quan về số lượng foci trên mỗi ô, như đã mô tả trước đây (Typas và cộng sự, 2015).
Phân tích kính hiển vi của các tế bào cố định
Hình ảnh của các mẫu cố định được thu thập trên kính hiển vi huỳnh quang trường rộng Zeiss AxioImagerM2 hoặc D2 được trang bị vật kính ngâm dầu 63 × PLAN APO (khẩu độ 1,4 số [NA]) (Zeiss) và đèn halogen kim loại HXP 120 được sử dụng để kích thích. Các đầu dò huỳnh quang được phát hiện bằng cách sử dụng các bộ lọc sau cho DAPI (bộ lọc kích thích: 350/50 nm; gương lưỡng sắc: 400 nm; bộ lọc phát xạ: 460/50 nm), Alexa 555 (bộ lọc kích thích: 545/25 nm; gương lưỡng sắc: 565 nm ; bộ lọc phát xạ: 605/70 nm), hoặc Alexa 647 (bộ lọc kích thích: 640/30 nm; gương lưỡng sắc: 660 nm; bộ lọc phát xạ: 690/50 nm). Hình ảnh được ghi lại bằng phần mềm ZEN 2012 và được phân tích trong ImageJ.
Chiếu xạ vi tia UV
Tế bào được nuôi cấy trên tấm phủ thạch anh 18- mm (UV-C) hoặc thủy tinh (UV-A) và được đặt trong buồng từ trường Chamlide CMB, trong đó môi trường tăng trưởng được thay thế bằng CO 2- Leibovitz L {độc lập. {4}} phương tiện (Thermo Fisher Scientific). Các vệt laser UV-C được tạo ra bằng cách sử dụng laser Garnet nhôm 266- mm yttrium ở trạng thái rắn được bơm đi-ốt (công suất trung bình 5 mW, tốc độ lặp lại lên đến 10 kHz và độ dài xung 1 ns). Trước khi chiếu xạ UV-Amicro, các tế bào được nhạy cảm với 6 µM trioxsalen trong 1 giờ để tạo ICL hoặc với 15 µM BrdU trong 24 giờ để tạo DSB. Các vệt laser UV-A được tạo ra bằng laser Yttrium Aluminium Garnet 355- nm được bơm đi-ốt (công suất trung bình 14 mW và tốc độ lặp lại lên đến 200 Hz). Cả hai tia laser đều được tích hợp vào hệ thống Chiếu sáng điểm UGA -42- Caliburn / 2L (Rapp OptoElectronic).
Chiếu xạ vi mô được kết hợp với hình ảnh tế bào sống trong buồng môi trường được đặt ở 37 độ trên kính hiển vi Zeiss Axio Observer 7 phát huỳnh quang trường rộng hoàn toàn bằng thạch anh, sử dụng vật kính ngâm glycerol siêu lọc 100 × (1.2NA) (UV-C ) hoặc vật kính ngâm dầu Plan-Neofluar 63 × (1,25 NA) (UV-A). Hệ thống laser được ghép nối với kính hiển vi thông qua TriggerBox và bộ lọc có mật độ trung tính (ND -1) chặn 90 phần trăm ánh sáng laser. AnHXP 120- Đèn halogen kim loại V được sử dụng để kích thích. Hình ảnh được thu thập trong Zeiss ZEN và được định lượng trong ImageJ.
Xét nghiệm phá vỡ nhiễm sắc thể
2 × 1 {{2 0}} 6 nguyên bào sợi được cấy vào bình nuôi cấy mô 175- cm2 với DMEM (10 phần trăm FBS) và được nuôi cấy ở 37 độ trong điều kiện có hoặc không có 50 nM MMC. Sau 48 giờ, 600 µl demecolcine (10 µg / µl) được thêm vào mỗi bình nuôi cấy, và các tế bào được ủ thêm 30 phút ở 37 độ để làm giàu các siêu vi khuẩn. Sau đó, các tế bào được trypsinized và tiếp tục lại trong 75 mM KCL và ủ trong 20 phút ở nhiệt độ phòng. Các tế bào được kéo thành sợi nhỏ, ủ lại trong 10 ml chất cố định (75% metanol và 25% axit axetic), ủ trong 30 phút ở nhiệt độ phòng, và được ly tâm. Các viên được ủ lại trong 10 ml chất cố định và ủ trong 5 phút ở nhiệt độ phòng. Bước này được lặp lại, và cuối cùng, viên nén được đóng lại ở dạng cố định 0,5–1,0 ml. Hỗn dịch tế bào được thả trên một phiến kính và để khô. Các phiến kính được nhuộm trong 5 phút trong dung dịch Giemsa 3%, rửa trong nước máy và để khô. Các slide đã được mã hóa, và từ mỗi lần nuôi cấy được mã hóa, 50 siêu vi khuẩn được kiểm tra xem có tổn thương nhiễm sắc thể hay không. Sau khi cho điểm, các slide được giải mã và kết quả được phân tích như đã trình bày (Stoepker và cộng sự, 2011).
UDS
18 0, 000 tế bào được gieo hạt trên các tấm phủ thủy tinh 18- mm nằm trong 12- các tấm giếng trong DMEM với 1 phần trăm FBS. Sau 24 giờ, các tế bào được chiếu xạ cục bộ qua bộ lọc 5- µm với 3 0 J / m2 UV-C. Các tế bào sau đó được đánh dấu xung với 20 µM EdU (VWR) và 1 µM 5- fluoro-deoxyuridine (Sigma-Aldrich) trong 1 giờ hoặc 4 giờ. Sau khi dán nhãn, các tế bào được đuổi theo môi trường với 10 µM thymidine trong DMEM mà không có chất bổ sung trong 30 phút và cố định trong 15 phút với 3,7% formaldehyde trong PBS. Tế bào được thẩm thấu trong 20 phút trong PBS với 0,5% Triton-X100 và bị chặn 3% BSA (Thermo Fisher Scientific) trong PBS. EdU kết hợp được ghép với Attoazide Alexa Fluor 647 bằng hóa học Click-iT theo hướng dẫn của nhà sản xuất (Invitrogen). Sau khi ghép nối, các tế bào được cố định bằng 2% formaldehyde trong 10 phút và sau đó bị chặn bằng 100 mM glycine. DNA được biến tính với 0,5 M NaOH trong 5 phút, tiếp theo là chặn với 10% BSA trong 15 phút. Tiếp theo, các tế bào được ủ với kháng thể chống lại chất dimer cyclobutan pyrimidine (xem Bảng S5) trong 2 giờ, tiếp theo là các kháng thể thứ cấp trong 1 giờ và DAPI trong 5 phút. Tế bào được gắn trong Polymount (Brunschwig).
Thu thập dữ liệu MS
MS về cơ bản đã được thực hiện như đã mô tả trước đây (Salas Lloret và cộng sự, 2 0 19). Tất cả các thí nghiệm được thực hiện trên hệ thống EASY-nLC 1 000 (Proxeon) được kết nối với Q-Exactive Orbitrap (Thermo Fisher Scientific) thông qua nguồn ion tia điện tử nano. Q-Exactive được kết hợp với bộ phát silica 25- cm (FS 360-75-15- N -5- C25; NewObjective) trong nhà chứa các hạt AQ 1,9 µm C 18- (Reprospher -DE; Pur; Tiến sĩ Manish, Ammerbuch-Entringen, Đức). Các mẫu được chạy trong 40- min gradient sắc ký từ 0 phần trăm đến 30 phần trăm acetonitril và sau đó tăng lên 95 phần trăm acetonitril trước khi cân bằng lại cột với tốc độ dòng 200 NL / phút. Khối phổ kế được vận hành ở chế độ thu nhận phụ thuộc vào dữ liệu với phương pháp top-7 và phạm vi quét 300–1.600 m / z. Phổ MS toàn quét được thu được ở giá trị mục tiêu 3 × 10⁶ và độ phân giải 70, 000 và phổ khối lượng song song phân ly keo cao hơn (MS / MS) được ghi lại ở giá trị mục tiêu là 105, và với độ phân giải 35.000, cửa sổ cách ly 2,2 m / z và năng lượng va chạm chuẩn hóa là 25 phần trăm. Mục tiêu điều khiển độ lợi tự động tối thiểu là 104. Thời gian phun MS1 và MS2 tối đa lần lượt là 250 và 120 ms. Khối lượng ion tiền thân của các ion được quét đã được loại trừ động khỏi phân tích MS / MS trong 30 s. Các ion có điện tích 1 và cao hơn 6 đã bị loại trừ khỏi việc kích hoạt phân tích MS2.
Phân tích dữ liệu MS Tất cả dữ liệu thô được phân tích bằng MaxQuant (phiên bản 1.6.6. 0) như đã mô tả trước đây (Tyanova và cộng sự, 2 0 16a). Chúng tôi đã thực hiện tìm kiếm đối với một proteome tham chiếu UniProt được tiêu hóa trong silic cho Homo sapiens, bao gồm các trình tự chuẩn và đồng dạng (27 tháng 5, 2 0 19). Tìm kiếm cơ sở dữ liệu được thực hiện theo các cài đặt tiêu chuẩn với các sửa đổi sau. Tiêu hóa với Trypsin / P đã được sử dụng, cho phép bốn lần phân cắt bị bỏ sót. Cho phép quá trình oxy hóa (M) và acetyl (protein N-hạn) được cho phép dưới dạng các biến đổi thay đổi với số lượng tối đa là ba. Carbamido-metyl (C) đã bị vô hiệu hóa như một sửa đổi cố định. Định lượng không nhãn (LFQ) đã được bật, không cho phép Fast LFQ. Dữ liệu đầu ra Max-Quant đã được xử lý thêm bằng cách sử dụng nền tảng tính toán Perseus (v 1.6.6.0; Tyanova và cộng sự, 2016b). Các giá trị cường độ LFQ được biến đổi thành log2, và các chất gây ô nhiễm và protein tiềm ẩn chỉ được xác định theo vị trí hoặc các peptit ngược đã bị loại bỏ. Các mẫu được nhóm lại trong các loại thí nghiệm và các protein không được xác định trong bốn trong số bốn lần lặp lại trong ít nhất một nhóm cũng bị loại bỏ. Các giá trị bị thiếu được đưa ra bằng cách sử dụng các giá trị được phân phối chuẩn với độ lệch 1,8 (log2) và độ rộng 0,3 ngẫu nhiên (log2) xem xét các giá trị toàn bộ ma trận. Phân tích thống kê (kiểm tra t) được thực hiện để xác định loại protein nào đã được làm giàu đáng kể. Các đồ thị núi lửa đã được tạo và các bảng kết quả phân tích thống kê được tiếp tục xử lý trong Microsoft Excel. Dữ liệu về proteomics MS đã được gửi tới ProteomeXchange Consortium thông qua kho lưu trữ đối tác PRIDE (Perez-Riverol và cộng sự, 2019) với mã định danh tập dữ liệu PXD017940.
Tinh sạch ERCC 1- XPF tái tổ hợp
Việc sản xuất Baculovirus được thực hiện như được mô tả bằng cách sử dụng cấu trúc pMacroBac-His-ERCC1 / XPF-HA (Enzlin và Sch¨ arer, 2 0 0 2). ERCC1WT và ERCC1R156W được cùng xuất hiện với XPFWT từ một loại vi rút trực khuẩn duy nhất trong tế bào côn trùng Sf9. Các dị thể được tinh chế qua ái lực niken, loại trừ kích thước, và sắc ký heparin như đã mô tả (Enzlin và Sch¨ arer, 2002). ERCC 1- XPF được rửa giải từ cột heparin ở khoảng 600 mM NaCl. Nồng độ protein dao động từ 0,1 đến 0,2 mg / ml.
Thử nghiệm Nuclease
Chất nền vòng gốc (GCCAGCGCTCGG (T) 22CCGAGCGCTGGC) có chứa thuốc nhuộm huỳnh quang Cy5 (5 0 pmol) ở 39 termini (IDT) được ủ trong bộ đệm ủ 100- µl (1 0 mM Tris, pH 7,5 và 5 0 mM NaCl) bằng cách đun nóng ở 95 độ trong 5 phút và làm nguội từ từ trong khoảng thời gian 2 giờ. 2 0 0 fmol chất nền ủ được sử dụng trong 20- µl phản ứng có chứa 25 mM HEPES, pH8,0, 2 mM MgCl2, 10 phần trăm glycerol, 0,5 mM -mercaptoethanol, 0,1 mg / ml BSA, 40 mM NaCl, và 0–40 nM protein. Các phản ứng được ủ ở 30 độ trong 30 phút và dừng lại bằng cách thêm 10 µl90 phần trăm formamide / 10 mM EDTA. Sau khi gia nhiệt ở 95 độ trong 5 phút và làm lạnh trên đá, 15 µl mỗi mẫu được nạp trên gel polyacrylamide biến tính 15%. Gel được chạy ở 30 mA trong 30 phút và các dải được hiển thị bằng huỳnh quang bởi Typhoon RGB (Amersham Biosciences).
Thử nghiệm NER trong ống nghiệm
Các chiết xuất tế bào thiếu XPF (XP2YO) và plasmid chứa tổn thương dG-AAF cụ thể tại vị trí được tạo ra như đã mô tả trước đây (Gillet và cộng sự, 2 0 0 5; Shivji và cộng sự, 1999) . Đối với mỗi phản ứng, 2 µl dung dịch đệm sửa chữa (2 {{4 0}} 0 mM Hepes-KOH, 25 mM MgCl2, 2,5 mM DTT, 10 mM ATP, 110 mM photphocreatine và 1,8 mg / ml BSA, pH cuối cùng là 7,8), 0,2 µl đệm creatine phosphokinase (2,5 mg / ml creatine phosphokinase từ cơ thỏ [Sigma Aldrich], 10 mM glycine, pH 9,0 và 50 phần trăm glycerol), 3 µl tế bào thiếu XPF chiết xuất, NaCl (đến nồng độ cuối cùng là 70 mM), và các protein ERCC 1- XPF tinh khiết với tổng thể tích 9 µl được làm ấm trước ở 30 độ trong 10 phút. 1 µl plasmid chứa dG-AAF (50 ng / µl) được thêm vào mỗi phản ứng, và các phản ứng được ủ ở 30 độ trong 45 phút. Hỗn hợp phản ứng sau đó được làm lạnh trên đá trong 5 phút, tiếp theo là thêm 0,5 µl sợi bổ sung 1 µM d (GGGGCATGTGGCGCCGGTAATAGC TACGTAGCTC), và hỗn hợp phản ứng được biến tính bằng cách đun nóng ở 95 độ trong 5 phút. Sau 15 phút ủ ở nhiệt độ phòng, hỗn hợp trình tự 1 µl (chứa 0,13 U của trình tự và 2,0 µCi [-32 P] dCTP cho mỗi phản ứng) được thêm vào. Sau khi ủ trước ở 37 độ trong 3 phút, 1,2 µl hỗn hợp deoxyribonucleotide triphosphat (50 µM dCTP, 100 µM dTTP, 100 µM dATP và 100 µM dGTP) được thêm vào. Hỗn hợp phản ứng được ủ ở 37 độ trong 12 phút, và phản ứng được dừng lại bằng cách thêm thuốc nhuộm tải 8 µl (80% formamide và 10 mM EDTA). Các mẫu được làm nóng ở 95 độ trong 5 phút, làm lạnh trên đá, và được nạp vào gel polyacrylamide biến tính 14%. Gel được chạy ở 45 W trong 2,5 giờ và các dải được hình dung bằng cách sử dụng PhosphorImager (Typhoon RGB).
Tài liệu bổ sung trực tuyến
Hình. S1 cho thấy các giá trị trong phòng thí nghiệm về chức năng gan và thận ở anh chị em 1 và anh chị em 2. Hình S2 cho thấy dữ liệu giải trình tự bộ gen xác nhận đột biến sai lệch và sự mất đoạn intragenic trong gen ERCC1. Hình S3 cho thấy sự biểu hiện protein của ERCC1 và XPF trong nguyên bào sợi của bệnh nhân. Hình S4 cho thấy các protein ERCC1 và XPF tái tổ hợp đã được tinh chế và Co-IP của ERCC1WT và ERCC1R156W. Hình S5 cho thấy hình ảnh hiển vi của UDS, các ổ H2AX và vị trí của các đột biến ở bệnh nhân trong ERCC 1- XPF. Bảng S1 chứa trình tự của tất cả các mồi và mẫu dò được sử dụng trong nghiên cứu này. Bảng S2 liệt kê tất cả các dòng tế bào được thử nghiệm trong nghiên cứu này. Bảng S3 liệt kê tất cả các plasmid tham gia vào nghiên cứu này. Bảng S4 cung cấp trình tự sgRNA của nghiên cứu và Bảng S5 cho thấy các kháng thể. Bảng S6 cung cấp số lượng ô được sử dụng để định lượng trong các hình. Dữ liệu S1 hiển thị tất cả các tệp Western blot chưa được cắt xén.
Sự nhìn nhận
Các tác giả công nhận cả anh chị em và cha mẹ của họ đã đóng góp cho bài báo này, Sylvie Noordermeer (Trung tâm Y tế Đại học Leiden [LUMC], Leiden, Hà Lan) cho vectơ biểu hiện ngoại vi thepLenti-CW 57- TO-GFP và lời khuyên về cách tạo KI tế bào, Joachim Goedhart (Đại học Amsterdam, Amsterdam, Hà Lan) cho mVenus cDNA, Bert van derKooij (LUMC, Leiden, Hà Lan) cho chất ức chế DNA-PK, Wim Vermeulen và Anja Rams (Erasmus MC, Rotterdam, Hà Lan) để cung cấp Tế bào 165TOR, Tomoo Ogi (Đại học Nagoya, Nhật Bản) để cung cấp tế bào CS20LO, Alan Lehman (Đại học Sussex, Vương quốc Anh) để cung cấp tế bào hTERT CSL16NG và CSL16NG, và Joost Schimmel (LUMC, Leiden, Hà Lan) để được tư vấn về cách tạo tế bào KI .
Công trình này được tài trợ bởi Trung tâm Y tế Đại học LeidenResearch Fellowship và Nederlandse Organisatie voor We tenschappelijk Onderzoek tài trợ VIDI (ALW.016.161.320) cho MSLuijsterburg, một Hội đồng Nghiên cứu Châu Âu bắt đầu tài trợ (310913) cho ACO Vertegaal, một khoản tài trợ KWF Kankerbestrijding YoungInvestigator 11367) cho R. Gonz´alez-Prieto, tài trợ KWF Kan kerbestrijding (VU 2013-5983) cho MA Rooimans, và các nhà nghiên cứu từ Viện Khoa học Cơ bản Hàn Quốc (IBS-R 022- A1) và Quốc gia Viện Ung thư (P01CA092584) đến ODSch arer.
Đóng góp của tác giả: K. Apelt tạo ra tế bào KO, tế bào KI và dòng tế bào ổn định; thực hiện phương pháp nhuộm Western blot và nhuộm miễn dịch để biểu hiện ERCC1 và XPF, chuyển nạp siêu vi khuẩn, sự sống sót của dòng vô tính (UV, MMC, IR), thử nghiệm Co-IP để phân tích Western blot, thử nghiệm UDS, thử nghiệm Co-IP cho MS và nhuộm H2AX; và viết giấy. A. Kragten thực hiện DUDS, RRS, và nhuộm miễn dịch sau UV cục bộ. AP Wonder gem đã tạo ra các tế bào KO và KI và thực hiện các thí nghiệm UDS, Western blot và Sanger để xác nhận đột biến sai lệch. SM White đã cung cấp dịch vụ tư vấn cho bệnh nhân, phân tích dữ liệu exome, thực hiện sinh thiết, tạo nguyên bào sợi chính và viết mô tả bệnh nhân lâm sàng. S. Lunke và BT Wilson đã tạo ra dữ liệu NGS. S. Pantaleoand D. Flanagan đã thực hiện qPCR để xác nhận việc xóa. C.Quinlan đã viết mô tả lâm sàng của thận. W. Hardikar đã viết mô tả lâm sàng của gan. MA Rooimans và R.MF Wolthuis đã tạo ra nguyên bào sợi 48BR vàPV50LD bất tử hTERT và thực hiện các xét nghiệm đứt gãy nhiễm sắc thể do MMC gây ra. R. Gonzalez-Prieto và ACO Vertegaal đã phân tích tất cả các thí nghiệm của MS. WW Wiegant và H. vanadium đã thực hiện sự sống sót của dòng vô tính trong các tế bào U2OS (IR). J.-E.Yeo và HS Kim đã tinh chế các protein tái tổ hợp và thực hiện xét nghiệm nuclease và xét nghiệm NER trong ống nghiệm. OD Sch¨arersu giám sát nghiên cứu NER in vitro đã đóng góp vào việc giải thích cấu trúc của alen R156W và chỉnh sửa bài báo. MS Luij sterburg đã giám sát dự án và viết bài báo.

Người giới thiệu
Abdel Ghaffar, TY, ES Elsobky và SM Elsayed. 2011. Ứ mật ở bệnh nhân hội chứng Cockayne và đề xuất các tiêu chuẩn sửa đổi để chẩn đoán lâm sàng. OrphanetJ. Dis hiếm. 6:13. -1172-6-13
Abdullah, UB, JF McGouran, S. Brolin, D. Ptchelkine, AH El-Sagheer, T. Brown, và PJ McHugh. 2017. RPA kích hoạt endonuclease XPF-ERCC1 để bắt đầu xử lý các liên kết chéo giữa các tiểu bang DNA. EMBO J. 36: 2047–2060.
Adair, GM, RL Rolig, D. Moore-Faver, M. Zabelshansky, JH Wilson và RS Nairn. 2000. Vai trò của ERCC1 trong việc loại bỏ các đuôi dài không tương đồng trong quá trình tái tổ hợp tương đồng có mục tiêu. EMBO J. 19: 5552–5561.
Ahmad, A., AR Robinson, A. Duensing, E. van Drunen, HB Beverloo, DB Weisberg, P. Hasty, JH Hoeijmakers và LJ Niedernhofer. 2008. ERCC 1- XPF endonuclease tạo điều kiện sửa chữa đứt gãy sợi kép DNA. Mol Tế bào. Biol. 28: 5082–5092.
Ahmad, A., JH Enzlin, NR Bhagwat, N. Wijgers, A. Raams, E. Appledoorn, AF Theil, JH J Hoeijmakers, W. Vermeulen, NG J Jaspers, et al. 2010. Việc phân loại sai nuclease XPF-ERCC1 góp phần làm giảm quá trình sửa chữa DNA ở bệnh nhân XP-F. PLoS Genet. 6: e1000871.
Auerbach, AD 2009. Thiếu máu Fanconi và chẩn đoán. Thịt cừu. Res. 668: 4–10.
Ben Chehida, A., N. Ghali, R. Ben Abdelaziz, F. Ben Moussa và N. Tebib. 2017. Sự can thiệp của thận vào 2 anh chị em mắc hội chứng Cockayne. Iran. J. Thận Dis. 11: 253–255.
Biggerstaff, M., DE Szymkowski, và RD Wood. 1993. Đồng chỉnh sửa lỗi DNA ERCC1, ERCC4 và xeroderma pigmentosum nhóm F sửa chữa các khiếm khuyết trong ống nghiệm. EMBO J. 12: 3685–3692.
-2075. 1993.tb06043.xBogliolo, M., B. Schuster, C. Stoepker, B. Derkunt, Y. Su, A. Raams, JP Trujillo, J. Minguillón, MJ Ramı´rez, R. Pujol , et al. 2013. Đột biến trong ERCC4, mã hóa endonuclease XPF sửa chữa DNA, gây ra bệnh thiếu máu Fanconi. Là. J. Hum. Genet. 92: 800–806.
Ceccaldi, R., P. Sarangi và AD D'Andrea. 2016. Con đường thiếu máu Fanconi: người chơi mới và chức năng mới. Nat. Linh mục Mol. Biol tế bào. 17: 337–349.
de Laat, WL, E. Appeldoorn, NG Jaspers và JH Hoeijmakers. 1998a. Các yếu tố cấu trúc DNA cần thiết cho hoạt động endonuclease của ERCC 1- XPF. J. Biol. Chèm. 273: 7835–7842.
de Laat, WL, AM Sijbers, H. Odijk, NG Jaspers và JH Hoeijmakers. 1998b. Lập bản đồ các miền tương tác giữa các protein sửa chữa ở người ERCC1 và XPF. Axit nucleic Res. 26: 4146–4152.
nar / 26.18.4146
de Vries, A., CT van Oostrom, FM Hofhuis, PM Dortant, RJ Berg, FR de Gruijl, PW Wester, CF van Kreijl, PJ Capel, H. vanLESg và SJ Verbeek. 1995. Tăng tính nhạy cảm với tia cực tím-B và chất gây ung thư của những con chuột thiếu gen sửa chữa cắt bỏ DNA XPA. Thiên nhiên. 377: 169–173.
DiGiovanna, JJ và KH Kraemer. 2012. Chiếu ánh sáng vào xeroderma pigmentosum. J. Đầu tư. Dermatol. 132: 785–796.
Enzlin, JH và OD Schrer. 2002. Vị trí hoạt động của endonuclease sửa chữa DNA XPF-ERCC1 tạo thành mô típ nuclease được bảo tồn cao. EMBO J. 21: 2045–2053.
Funaki, S., S. Takahashi, H. Murakami, K. Harada và H. Kitamura. 2006. Hội chứng Cockayne với viêm thận mô ống tubulointer cấp tính tái phát. Pathol. Int. 56: 678–682.
.02029.x
Gillet, LC, J. Alzeer và OD Schrer. 2005. Sự kết hợp cụ thể của N- (deoxyguanosine -8- yl) -2- acetylaminofluorene (dG-AAF) vào các oligonucleotide bằng cách sử dụng tổng hợp DNA 'siêu nhẹ' đã được sửa đổi. Axit nucleic Res. 33: 1961–1969.
Gregg, SQ, AR Robinson và LJ Niedernhofer. 2011. Hậu quả sinh lý của các khiếm khuyết trong ERCC 1- XPF DNA sửa chữa endonuclease. Sửa chữa DNA (Amst.). 10: 781–791.
Guo, C., Y. Nakazawa, L. Woodbine, A. Bjorkman, M. Shimada, H. Fawcett, N. Jia, K. Ohyama, TS Li, Y. Nagayama, et al. 2015. Sự thiếu hụt XRCC4 ở người gây ra kiểu hình thần kinh rõ rệt nhưng không gây suy giảm miễn dịch rõ ràng. J. Clin dị ứng. Immunol. 136: 1007–1017.
Helfricht, A., PE Thijssen, MB Rother, RG Shah, L. Du, S. Takada, M. Rogier, J. Moritz, H. IJspeert, C. Stoepker, et al. 2020. Mất ZBTB24 làm suy giảm khả năng kết hợp cuối cùng và tái tổ hợp chuyển đổi lớp không có nguyên nhân ở bệnh nhân mắc hội chứng ICF. J. Exp. Med. 217: e20191688.
Houtsmuller, AB, S. Rademakers, AL Nigg, D. Hoogstraten, JH Hoeij- nhà sản xuất và W. Vermeulen. 1999. Hành động sửa chữa DNA endonuclease ERCC1 / XPF trong tế bào sống. Khoa học. 284: 958–961. h
khoa học.284.5416.958
Jaspers, NG, A. Raams, MC Silengo, N. Wijgers, LJ Niedernhofer, AR Robinson, G. Giglia-Mari, D. Hoogstraten, WJ Kleijer, JH Hoeij- nhà sản xuất và W. Vermeulen. 2007. Bệnh nhân đầu tiên được báo cáo về sự thiếu hụt ERCC1 ở người có hội chứng xương não với khiếm khuyết nhẹ trong việc sửa chữa cắt bỏ nucleotide và suy giảm phát triển nặng. Là. J. Hum. Genet. 80: 457–466.
Joenje, H., AB Oostra, M. Wijker, FM di Summa, CG van Berkel, MA Rooimans, W. Ebell, M. van Weel, JC Pronk, M. Buchwald và F. Arwert. 1997. Bằng chứng cho ít nhất tám gen thiếu máu Fanconi. Là. J. Hum. Genet. 61: 940–944.
Jones, M., F. Beuron, A. Borg, A. Nans, CP Earl, DC Briggs, AP Snijders, M. Bowles, EP Morris, M. Linch, và NQ McDonald. 2020. Các cấu trúc Cryo-EM của XPF-ERCC1 endonuclease cho biết cách thức tương tác nối DNA phá vỡ cấu trúc tự động bị ức chế. Nat. Commun. 11 giờ 20 phút.
Karikkineth, AC, M. Scheibye-Knudsen, E. Fivenson, DL Croteau và VA Bohr. 2017. Hội chứng Cockayne: Các đặc điểm lâm sàng, hệ thống mô hình và con đường. Độ tuổi Res. Khải huyền 33: 3–17.002
Kashiyama, K., Y. Nakazawa, DT Pilz, C. Guo, M. Shimada, K. Sasaki, H. Fawcett, JF Wing, SO Lewin, L. Carr, et al. 2013. Sự cố của nuclease ERCC 1- XPF dẫn đến các biểu hiện lâm sàng đa dạng và gây ra hội chứng Cockayne, xeroderma pigmentosum và thiếu máu Fanconi. Là. J. Hum. Genet. 92: 807–819.


