Nicotine ở người mẹ giúp tăng cường trí nhớ sợ hãi, giảm quản lý nicotine và làm thay đổi chức năng di truyền và thần kinh của hải mã ở con cái
Mar 21, 2022
Liên hệ: Audrey Hu Whatsapp / hp: 0086 13880143964 Email:audrey.hu@wecistanche.com
Lisa R. Goldberg1 *|Dana Zeid1 *|Munir Gunes Kutlu2|Robert D. Cole3|Valeria Lallai4|Aswathy Sebastian5|Istvan Albert5|Christie D. Fowler4|Vinay Parikh6|Thomas J. Gould1
1 Khoa Sức khỏe Hành vi Sinh học, Đại học Bang Penn, Công viên Đại học, Pennsylvania
2 Khoa Dược, Trường Y Vanderbilt, Nashville, Tennessee
3 Đại học Dược, Đại học Kentucky, Lexington, Kentucky
4 Khoa Sinh học Thần kinh và Hành vi, Đại học California Irvine, Irvine, California
5 Tin học, Hóa sinh và Sinh học Phân tử, Đại học Bang Penn, Công viên Đại học, PA
6 Khoa Tâm lý, Đại học Temple, Philadelphia, Pennsylvania
trừu tượng
Việc sử dụng nicotine vẫn còn phổ biến trong các sản phẩm thuốc lá và thuốc lá điện tử được tiêu thụ trên toàn thế giới. Tuy nhiên, ngày càng có nhiều bằng chứng về sự di truyền biểu sinh qua thế hệ cho thấy rằng việc sử dụng nicotin có thể làm thay đổi hành vi và sinh học thần kinh trong các thế hệ tiếp theo. Chúng tôi đã kiểm tra tác động của việc tiếp xúc với nicotine mãn tính của người mẹ ở chuột C57BL6 / J đối với sự điều hòa sợ hãi ở con cái F1 và F2, cũng như sự tuyệt chủng và phục hồi tự phát của nỗi sợ hãi, tự quản lý nicotine, hoạt động cholinergic ở hải mã, biểu hiện RNA và methyl hóa DNA ở F1 con đẻ. Phơi nhiễm nicotine ở người mẹ có liên quan đến việc tăng cường khả năng điều hòa nỗi sợ hãi theo ngữ cảnh và theo ý muốn cũng như phục hồi tự phát những ký ức sợ hãi đã bị dập tắt. Hơn nữa, sự tăng cường nicotine đã giảm ở những con chuột được chọn lọc nicotine, như được đánh giá trong một mô hình tự quản lý. Những kiểu hình hành vi này được kết hợp với phản ứng thay đổi với nicotine, liên kết thụ thể acetylcholine ở hải mã được điều chỉnh, giảm dòng cholinergic ở hải mã, thay đổi quá trình methyl hóa và biểu hiện của các gen ở hải mã liên quan đến sự phát triển thần kinh và tính dẻo. Phân tích biểu hiện gen cho thấy các tác động đa thế hệ trên mạng lưới gen rộng hơn có khả năng liên quan đến sự dẻo dai thần kinh và rối loạn tâm thần. Những thay đổi trong điều kiện sợ hãi tương tự cho thấy các kiểu hình tương tự như rối loạn lo âu tương tự như căng thẳng sau chấn thương.
TỪ KHÓA: cholinergic, hồi hải mã, học tập, đa thế hệ, nicotin, chuyển thế hệ

1. GIỚI THIỆU
Tích lũy bằng chứng cho thấy tác động của việc tiếp xúc với thuốc lạm dụng vượt ra ngoài phạm vi cá nhân để ảnh hưởng đến các kiểu hình sinh lý và hành vi ở con cái không bị phơi nhiễm. 1-3 Đặc điểm của tác động của nicotine qua các thế hệ là rất quan trọng khi xem xét mức độ phổ biến của việc sử dụng sản phẩm thuốc lá4 và sự gia tăng đáng kể sử dụng thuốc lá điện tử.5 Thông qua tác động của nó đối với hệ thống cholinergic của não, việc tiếp xúc với nicotine tạo ra những thay đổi rõ rệt trong chức năng não có thể làm cơ sở cho việc nghiện nicotine và góp phần làm tăng nguy cơ rối loạn tâm thần, bao gồm trầm cảm6 và lo lắng.7 Các biến đổi biểu sinh sau quá trình kích hoạt cholinergic có thể cho phép các tác động dai dẳng lên chức năng tế bào và mạch.8,9 Cho đến gần đây, người ta tin rằng những biến đổi biểu sinh này đã bị xóa bỏ khi thành lập dòng mầm và do đó được cô lập từ các thế hệ tiếp theo. Tuy nhiên, những sửa đổi biểu sinh, bao gồm metyl hóa DNA, sửa đổi sau chuyển đổi mô và các ARN không mã hóa, có được trong một thế hệ có thể được di truyền ở thế hệ tiếp theo. .
Các nghiên cứu về loài gặm nhấm từ nhiều phòng thí nghiệm độc lập đã bắt đầu xác định các hậu quả đa thế hệ và chuyển thế hệ của việc tiếp xúc với nicotine của cha mẹ. Công trình nghiên cứu này cho đến nay đã xác định được các tác động của việc tiếp xúc với nicotine của cha mẹ đối với các kiểu hình như trầm cảm và lo lắng, 1 tính linh hoạt trong nhận thức, 2 hành vi giống như rối loạn tăng động giảm chú ý (ADHD), 3 và biểu hiện gen. 1,2 Hậu quả đa thế hệ và chuyển thế hệ của Tiếp xúc với nicotine có thể ảnh hưởng đến các endophenotype liên quan đến nghiện nicotine và sức khỏe tâm thần. Ví dụ: chúng tôi đã chỉ ra rằng việc tiếp xúc với nicotin điều chỉnh sự điều hòa nỗi sợ hãi theo ngữ cảnh, một mô hình học tập nỗi sợ hãi phụ thuộc vào hồi hải mã có liên quan đến tính dễ bị tổn thương đối với các rối loạn sức khỏe tâm thần như rối loạn căng thẳng sau chấn thương (PTSD) và nghiện ngập. 12-14 Nicotine's Các tác động đối với sự sợ hãi theo ngữ cảnh được điều chỉnh bởi hippocampus.15,16 Chúng tôi đã phát hiện ra rằng việc tiếp xúc với nicotine cấp tính giúp tăng cường sự sợ hãi phụ thuộc vào hippocampus học tập, 15,17 làm giảm sự tuyệt chủng của nỗi sợ hãi theo ngữ cảnh, 18,19 và làm tăng khả năng phục hồi tự phát của nỗi sợ hãi theo ngữ cảnh sau tuyệt chủng.18 Tuy nhiên, tác động đa thế hệ và chuyển thế hệ của việc tiếp xúc với nicotin của người cha đối với những kiểu hình này vẫn chưa được nghiên cứu. Hơn nữa, không có nghiên cứu nào trước đây mô tả tác động đa thế hệ của nicotine lên chức năng cholinergic. Di truyền đa thế hệ đề cập đến các kiểu hình phát sinh trong thế hệ ngay sau các cá thể tiếp xúc, trong khi di truyền qua thế hệ bao gồm sự di truyền qua trung gian mầm của thông tin biểu sinh giữa các thế hệ trong trường hợp không có ảnh hưởng trực tiếp từ môi trường dẫn đến sự biến đổi kiểu hình.11 Ở đây, chúng tôi đã kiểm tra cả đa thế hệ và tác động chuyển thế hệ của việc tiếp xúc với nicotine của người cha đối với việc học theo ngữ cảnh và cảm giác sợ hãi ở thế hệ F1 và F2 cũng như đối với việc tự quản lý nicotine, liên kết thụ thể acetylcholine ở hải mã (nAChR), chức năng cholinergic ở hải mã, biểu hiện gen ở hải mã và methyl hóa DNA ở hải mã trong thế hệ F1. Chúng tôi đưa ra giả thuyết rằng việc tiếp xúc với nicotine của người cha sẽ ảnh hưởng đến việc điều hòa nỗi sợ hãi, biểu hiện gen ở hải mã và chức năng ở con cái và con cháu.

tác dụng của chiết xuất cistanche
2 PHƯƠNG PHÁP VÀ VẬT LIỆU
2.1 Đối tượng
Đối tượng là chuột C57BL / 6J đực và cái (8‐20 tuần tuổi, Phòng thí nghiệm Jackson, Bar Harbour, ME). Ngoại trừ nhà ở để sinh sản trong hậu cung, tất cả các loài động vật đều được nuôi theo nhóm với chu kỳ sáng / tối 12 giờ và khả năng tiếp cận thức ăn và nước uống của chúng. Trong thời gian tự quản lý, các đối tượng bị hạn chế thức ăn ở mức 85% đến 90% trọng lượng cơ thể được cho ăn tự do, và nước được cung cấp. Tất cả thử nghiệm hành vi đã diễn ra trong khoảng thời gian từ 9: 00 SA đến 6: 00 CH. Tất cả các thủ tục được tiến hành theo Hướng dẫn của NIH về Chăm sóc và Sử dụng Động vật Phòng thí nghiệm và được các ủy ban IACUC của Đại học Penn State, Đại học Temple hoặc Đại học California Irvine phê duyệt.
2.2 Phơi nhiễm nicotin ở người mẹ
Nam giới (8 tuần) nhận được 0. Nước muối vô trùng 9% hoặc muối nicotin hydro tartrat (12,6 mg / kg / ngày, trọng lượng cơ bản tự do — Fisher Scientific, Waltham, MA hoặc MP Biomedical, Santa Ana, CA) hòa tan trong 0. Nước muối vô trùng 9 phần trăm, được cung cấp dưới da qua máy bơm mini thẩm thấu (Alzet, Model 1004, Durect, Cupertino, CA) trong 28 ngày. Liều này tạo ra nồng độ nicotin và cotinin trong huyết tương tương đương với nồng độ ở người hút thuốc vừa phải. 20,21
2.3 Thế hệ chuột F1 và F2
Thời gian bán hủy của nicotine ở chuột là khoảng 6 phút.22 Trước đây đã chứng minh rằng tác động của việc cai nicotine sẽ biến mất sau 4 ngày sau khi loại bỏ nicotine. 23-25 Do đó, thời gian trì hoãn 4 ngày giữa điều trị nicotine và nhân giống đã được thực hiện để đảm bảo loại bỏ toàn thân nicotin trước khi nhân giống. Những con chuột đực được cho vào lồng với hai con cái C57BL / 6 J còn non nớt (8‐20 tuần tuổi) trong 2 tuần để tạo ra con cái F1. Những con chuột F2 được tạo ra bằng cách giao phối những con chuột đực F1 ngây thơ với những con cái chưa ngoan.
2.4 Điều hòa nỗi sợ hãi
Các quy trình điều hòa và tuyệt chủng nỗi sợ hãi đã được mô tả chi tiết trước đây.19 Một cách ngắn gọn, chuột được huấn luyện và thử nghiệm trong các buồng giảm tiếng ồn (18,8 × 2 0 × 18,3 cm, tiếng ồn nền 65 dB; MED Associates, St. Albans, VT). Chuột F1 và F2 sợ hãi được điều hòa bởi hai kích thích có điều kiện (CS, 3 0 giây, tiếng ồn trắng 85 ‐ dB) - kích thích không điều chỉnh (Mỹ, 2 giây, 0,57 mA chấn động chân) cách nhau 120 giây. Để kiểm tra tác động cấp tính của nicotin đối với việc điều hòa nỗi sợ hãi ở chuột F1 và F2, con cái nhận được nicotin cấp tính (0,09 mg / kg, trọng lượng cơ bản tự do NIC, ip; muối nicotin hydro tartrat, Fisher Scientific) hoặc nước muối (SAL) trước đó 2 đến 4 phút đến các buổi đào tạo và thử nghiệm. Hai mươi bốn giờ sau khi huấn luyện, những con chuột được quay lại bối cảnh huấn luyện trong 5 phút để đánh giá tình trạng đóng băng theo ngữ cảnh. Sau khi kiểm tra theo ngữ cảnh, những con chuột được đặt trong các buồng riêng biệt để đánh giá khả năng học tập sợ hãi. Người thử nghiệm bị mù trong các điều kiện được đánh giá là đóng băng, được định nghĩa là không có chuyển động tự nguyện ngoài hô hấp, thông qua phương pháp lấy mẫu thời gian không thiên vị.19 Để kiểm tra các hiệu ứng trần tiềm ẩn trong quá trình thử nghiệm được giám sát, một nhóm chuột F1 riêng biệt được huấn luyện giống hệt nhau chỉ với một CS ‐ US sự ghép đôi, và sự tuyệt chủng theo ngữ cảnh và sự phục hồi tự phát cũng đã được kiểm tra. Sự tuyệt chủng nỗi sợ hãi xảy ra trong năm phiên liên tiếp bắt đầu một ngày sau khi kiểm tra mức độ sợ hãi theo ngữ cảnh và được kiểm tra. Sau đợt tuyệt chủng cuối cùng, những con chuột được để nguyên trong lồng nhà của chúng trong 7 ngày và sau đó được kiểm tra lại trong bối cảnh huấn luyện để phục hồi tự phát. Để xác định xem bất kỳ sự khác biệt nào quan sát được trong điều kiện sợ hãi là do sự khác biệt về độ nhạy cảm với cú sốc, lo lắng, hoặc suy giảm khả năng học tập rộng hơn, động vật đực và cái NIC‐ và SAL ‐ Sired được thử nghiệm bổ sung trong môi trường mở, độ nhạy với sốc, tăng cao cộng với mê cung ( EPM), và các mô hình nhận dạng đối tượng mới (xem Thông tin hỗ trợ để biết các phương pháp và kết quả đầy đủ).
2.5 Tự sử dụng nicotine qua đường thực phẩm và đường tĩnh mạch
A separate cohort of adult SAL‐Sired and NIC‐Sired F1 mice were used for food and nicotine self‐administration studies. Beginning at 6 weeks of age, male F1 mice were weighed, mildly food‐restricted to 85% to 90% of their free‐feeding body weight, and then trained to press a lever in an operant chamber (Med Associates) for food chow pellets (20 mg; TestDiet, Richmond, IN) under a fixed‐ratio 5, time out 20 seconds (FR5TO20 sec) schedule of reinforcement (see Supporting Information for full methods). Once stable responding was achieved (>25 viên mỗi phiên trong ba phiên tiếp theo), các đối tượng được đặt ống thông tĩnh mạch bằng isoflurane (1 phần trăm ‐3 phần trăm) / gây mê hơi oxy, như đã mô tả trước đây.26 Chuột được phép lâu hơn hoặc bằng 72 giờ để hồi phục sau phẫu thuật trước khi tiếp cận để trả lời lại cho một phần thưởng thức ăn. Việc thiết lập lại phản ứng thức ăn đảm bảo rằng những con chuột đã hồi phục đầy đủ sau phẫu thuật tiêm tĩnh mạch và biểu hiện phản ứng bình thường của cơ thể mổ sau sự chậm trễ trong việc tiếp cận các buồng mổ. Sau đó, những con chuột được phép tự sử dụng nicotine tĩnh mạch (IV) trong các phiên kéo dài 1 giờ mỗi ngày, 6 đến 7 ngày mỗi tuần (muối nicotine hydro tartrate hòa tan trong 0. 9 phần trăm nước muối vô trùng, {{1 { {12}}}}. 0 3 mg / kg / lần truyền, trọng lượng cơ bản tự do; MP Biomedical, Santa Ana, CA). Nicotine IV được cung cấp bằng bơm tiêm Razel (Med Associates). Mỗi phiên có hai đòn bẩy có thể thu vào (một hoạt động, một không hoạt động). Việc hoàn thành các tiêu chí đáp ứng trên cần hoạt động dẫn đến việc phân phối dịch truyền nicotin IV (0. {{2 0}} thể tích dịch truyền 3 ml; lịch FR5TO20 giây). Các phản hồi trên đòn bẩy không hoạt động đã được ghi lại nhưng không có hậu quả theo lịch trình. Sau tám phiên điều trị ở mức 0,03 mg / kg / lần truyền, liều truyền chuyển sang 0,1 mg / kg / lần truyền trong sáu phiên. Đối với mỗi liều, lượng tiêu thụ trung bình của ba phiên cuối cùng được sử dụng để phân tích thống kê. Các ống thông được rửa hàng ngày bằng nước muối vô trùng sinh lý (0,9% w / v) có chứa heparin (100 đơn vị USP / ml). Khả năng sáng chế của ống thông đã được xác minh với Brevital (methohexital sodium, Eli Lilly, Indianapolis, IN) sau giai đoạn tự quản lý nicotine. Để đánh giá hành vi liên quan đến tái phát, những con chuột đã được kiểm tra về thời gian ủ bệnh sau phiên làm việc ngay sau liều 0,1 mg / kg / lần truyền cuối cùng của việc tự sử dụng nicotin IV; trong quy trình này, những con chuột được phép phản ứng trên đòn bẩy hoạt động nhưng không được truyền nicotine. Trong phiên ủ cơ bản đầu tiên (ngày 1), chuột được đặt trong các buồng mở theo lịch trình FR5TO20 giây với sự kích hoạt ánh sáng tín hiệu ngẫu nhiên. Sau đó, những con chuột được nhốt trong lồng nhà trong 20 ngày. Vào ngày kiêng 21, những con chuột được kiểm tra xem có thèm ăn hay không, với đèn tín hiệu cần gạt hoạt động được phát theo lịch trình FR5TO20 giây. Các nghiên cứu được thực hiện bởi những người thực nghiệm bị mù điều kiện nhóm, và các phản ứng hành vi được phần mềm MedAssociates ghi lại tự động.
2.6 Liên kết với thụ thể nicotinic acetylcholine
Một thử nghiệm liên kết mật độ và phóng xạ16 được thực hiện bằng cách sử dụng hippocampi từ chuột NIC ‐ Sired (5 M và 10F) và SAL ‐ Sired (9 M và 6F) F1. Các mẫu được đồng nhất bằng cách sử dụng đệm ly giải (5 mM Tris cộng với 5 mM EDTA và 5 mM EGTA), được ly tâm ở 100 000 g trong 30 phút ở 4 độ, được tiếp tục trong dung dịch đệm ly giải và lại được ly tâm. Viên nén được ủ lại trong đệm Tris / 10% sucrose và ủ với [3 H] Epibatidine ([3 H] EB) (~ 2 nM dựa trên 27,28) (hoạt tính cụ thể 54,1 Ci / mmol, PerkinElmer, Boston, MA) cho 1 giờ ở nhiệt độ phòng. [3 H] EB đã được chọn để liên kết với nAChR, vì các kết quả trước đó cho thấy rằng 4 2 nAChR ở hải mã làm trung gian cho tác động của nicotine đối với việc điều hòa nỗi sợ hãi.17 Liên kết không đặc hiệu được đánh giá khi có 300 μM nicotine (muối nicotine hydro tartrate hòa tan trong Tris Buffer, nồng độ bazơ tự do). [3 H] nAChR liên kết EB đã được lọc (máy thu hoạch tế bào 24 giếng, Brandel Co, Gaithersburg, MD), và một máy đếm ánh sáng lỏng (Tri ‐ Carb 2810 TR, Perkin Elmer, Boston, MA) đo hoạt độ phóng xạ của bộ lọc. Liên kết cụ thể biểu thị bằng fmol / mg mô được tính toán bằng sự khác biệt giữa liên kết tổng số và liên kết không đặc hiệu.16
2.7 Bản ghi cholinergic amperometric in vivo
Một nhóm thuần tập riêng biệt gồm những con chuột NIC ‐ Sired và SAL ‐ Sired F1 từ 1 0 đến 20 tuần tuổi được sử dụng để đánh giá những thay đổi trong quá trình truyền cholinergic ở hải mã bằng phương pháp đo ampe. Các vi điện cực dựa trên gốm sứ (Trung tâm Công nghệ Vi điện cực, Lexington, KY), với 4 vị trí ghi bạch kim (15 × 333 μm) được sắp xếp theo cặp (trên và dưới), được phủ bằng choline oxidase (EC Number 1.1.3.17; Sigma‐ Aldrich, St. Louis, MO), như đã báo cáo trước đây. 29 Các điện cực được điện trùng hợp với meta ‐ phenylenediamine (m ‐ PD; Sigma ‐ Aldrich, St. Louis, MO) để tăng cường tính chọn lọc để phát hiện dòng choline. Các vi điện cực có độ nhạy lớn hơn hoặc bằng 3pA / μM và giới hạn phát hiện nhỏ hơn hoặc bằng 400 nM đối với choline được sử dụng để cung cấp chỉ số nhạy cảm về giải phóng Acetylcholine (ACh). 30 Động vật được gây mê bằng urethane (1,2‐1,5 g / kg, ip), và các vi điện cực phủ enzym được hạ thấp theo cách lập thể vào mặt lưng (A / P ‐1,7 mm, M / L ± 1,5 mm, D / V ‐2,3 mm) hoặc bụng (A / P −3,1 mm, M / L ± 3,0 mm, D / V −4,3 mm) hồi hải mã. Hồi hải mã bụng và lưng được đánh giá riêng biệt, vì chúng góp phần khác biệt vào việc điều hòa nỗi sợ theo ngữ cảnh: hải mã bụng (vHPC) có vai trò nổi bật hơn trong sự liên kết và biểu hiện nỗi sợ hãi, trong khi hồi hải mã lưng (DHCP) rất quan trọng đối với trí nhớ theo ngữ cảnh.31 Ag / Các điện cực so sánh AgCl được cấy vào vỏ não bên cạnh.
Các bản ghi âm đo amperometric được thực hiện ở tần số 2 Hz bằng cách áp dụng điện thế cố định cộng 0. 7 V và dữ liệu được số hóa (FAST ‐ 16 potentiostat, Quainton, Nicholasville, KY). Dòng điện nền được ổn định trong 60 phút, sau đó thuốc được đưa vào vùng hải mã bằng cách sử dụng một ống mao dẫn thủy tinh (đường kính đầu: 15 μm) gắn vào điện cực. Sự giải phóng ACh do khử cực do khử cực được đo bằng cách áp dụng các xung ngắn của kali (KCl 70 mM; 100 NL) hoặc NIC (1 mM freebase, nicotine tartrate; 100 NL) ở 2 đến 10 psi sau mỗi 2 phút. Các bản ghi được cân bằng đối với vùng hải mã (lưng hoặc bụng) và thuốc (kali hoặc NIC). Biên độ tín hiệu choline được đo bằng sự thay đổi dòng điện trên kênh phủ enzym so với dòng điện cơ bản và được chuyển đổi thành các điểm tương đương μM của choline dựa trên hiệu chuẩn in vitro. Việc tự tham chiếu đã được thông qua để loại bỏ hiện tượng tạo tác bằng cách trừ dòng điện khỏi các kênh giám sát.29 Vị trí vi điện cực đã được xác minh bằng phương pháp nhuộm Nissl của các phần hồi hải mã (Hình S1). Trung bình của hai phản ứng trên mỗi lần thao tác thuốc trên mỗi con vật được sử dụng để phân tích thống kê.
2.8 Phân tích thống kê
So sánh thống kê được thực hiện bằng SPSS (IBM, Armonk, NY) hoặc GraphPad Prism (La Jolla, CA, USA). Các giá trị ngoại lai được xác định bằng các giá trị 2 độ lệch chuẩn trên giá trị trung bình. Nếu một ngoại lệ được phát hiện, thông tin sẽ được bao gồm trong phần kết quả. Tiêu chí về mức độ quan trọng được đặt ở=.05. Phân tích thống kê ban đầu được thực hiện bao gồm giới tính như một yếu tố cho tất cả các thí nghiệm kiểm tra cả con đực và con cái. Các phân tích bị thu hẹp về giới tính khi không phát hiện được tương tác ba chiều hoặc hai chiều với tình dục (P> 0,05). Dữ liệu được phân tích bằng t-test, 1 chiều hoặc ANOVA 2 chiều, nếu thích hợp. Các tác động chính hoặc tương tác đáng kể được theo sau bởi các so sánh sau khi LSD. Các phép đo lặp lại ANOVA được theo sau bởi Bonferroni post hoc so sánh với hiệu chỉnh cho nhiều lần so sánh. Nếu các phương sai không bằng nhau được phát hiện, phép thử t của Welch cho các phương sai không bằng nhau được sử dụng và bậc tự do được làm tròn xuống.
2.9 Phân lập RNA / DNA
Chuột F1 trưởng thành (8 tuần tuổi; n=3 M và 3 F cho mỗi nhóm) đã bị tử vong do lệch cổ tử cung. Hippocampi nhanh chóng được phân chia thành các phần bụng và lưng (theo tỷ lệ 1: 1), gộp lại từ hai bên trái và phải, và đông cứng trên đá khô. DNA và RNA được đồng phân lập và tinh sạch bằng cách sử dụng AllPrep DNA / RNA Mini Kit (Qiagen, Valencia, CA). Nồng độ và chất lượng RNA và DNA được đánh giá bằng cách sử dụng NanoDrop2000 (NanoDrop, Wilmington, DE) và Agilent Bioanalyzer (Agilent, Santa Clara, CA). Đối với chiết tách RNA, Số toàn vẹn RNA (RIN) tối thiểu là 8,5.
2.10 Phân tích bảng phiên mã thông qua
Các thư viện giải trình tự RNA được chuẩn bị bởi Viện nghiên cứu khoa học đời sống Huck Genomics Core Facility (Đại học Penn State) cho 15 0 bp đầu đọc một đầu bằng cách sử dụng Bộ công cụ chuẩn bị thư viện mRNA Illumina TruSeq Stranded (Illumina, San Diego, CA) và trình tự trên Illumina HiSeq 25 0 0 ở chế độ chạy nhanh (ba lần chạy liên tiếp với khoảng 1 0 triệu lần đọc cho mỗi mẫu). Các tệp FASTQ được kiểm tra chất lượng thông qua FASTQC và sở hữu điểm chất lượng Phred trung bình trên mỗi lần đọc lớn hơn 30 (tức là, lỗi trình tự nhỏ hơn 0,1%). Các tệp FASTQ đã được căn chỉnh theo bộ gen tham chiếu chuột (mm10; UCSC Genome Browser) bằng cách sử dụng TopHat (v2.1.0) 32 trên Galaxy Project33. Cufflinks và Cuffmerge (v2.2.1.0) 34 được sử dụng để tập hợp các bảng điểm từ các lần đọc được ánh xạ và hợp nhất các tệp bảng điểm để lắp ráp bảng điểm cuối cùng. Các giá trị P được điều chỉnh theo tỷ lệ phát hiện sai (FDR) được tính toán cho sự biểu hiện gen khác biệt từ các mẫu NIC ‐ Sired và SAL ‐ Sired bằng cách sử dụng Cuffdiff (v2.2.1.3), 34 với mức cắt FDR tiêu chuẩn là 0,05,35 Bộ dữ liệu phiên mã đã được lưu trữ sang Omnibus biểu hiện gen.
2.11 Phân tích làm giàu
Các gen biểu hiện khác biệt đã được phân tích bằng cách sử dụng phân tích con đường khéo léo (IPA, chạy vào tháng 12 năm 2018; www.qiagen.com/ingenuity; Qiagen, Redwood City, CA, USA) 36 để phát hiện ra khả năng làm giàu tiềm năng của các mạng sinh học liên kết. Các thông số chạy chỉ định tối đa 35 phân tử trên mỗi mạng gen và phân tích hạn chế đối với mô hoặc dòng tế bào thần kinh trung ương của động vật có vú. Ý nghĩa thống kê đối với việc làm giàu được xác định bằng cách sử dụng phép thử chính xác của Fisher có đuôi phải được hiệu chỉnh cho nhiều lần thử nghiệm.
2.12 Xác định trình tự bisulfit được nhắm mục tiêu
DNA đồng phân lập với RNA (xem Phần 2.9) được sử dụng để phân tích methyl hóa DNA. RNA ‐ seq lần lượt xác định được 952 và 162 gen biểu hiện khác biệt trong vHPC và DHCP. 1 0 1 0 gen duy nhất từ các danh sách kết hợp này đã được chọn để làm giàu bisulfite ‐ seq bằng cách sử dụng Hệ thống làm giàu SeqCap Epi tùy chỉnh (Roche, Pleasanton, CA, USA; Bảng S1) .38 Bisulfite được nhắm mục tiêu giải trình tự đã được thực hiện tại Viện Penn State Huck của Cơ sở cốt lõi về gen khoa học đời sống. Các thư viện được xây dựng bằng bộ KAPA Hyper Prep (Kapa Biosystems, Wilmington, MA). Các thư viện chuyển đổi natri bisulfit được PCR khuếch đại và làm giàu cho các vùng gen được chọn bằng cách sử dụng bộ đầu dò chụp tùy chỉnh (SeqCap Epi Choice Probes; Roche, Pleasanton, CA, USA). DNA bắt được giải mã trình tự trên Illumina HiSeq 2500 bằng cách sử dụng 100 lần đọc kết thúc cặp đôi. Tệp FASTQ đã được kiểm tra chất lượng qua FASTQC. Trình tự bộ điều hợp Illumina bị loại bỏ và các đế chất lượng thấp được cắt bằng cách sử dụng Trimmomatic.39 Cắt lớp nền chất lượng thấp được thực hiện với phương pháp tiếp cận cửa sổ dạng trượt, cắt khi chất lượng trung bình trong một cửa sổ bốn cặp đế giảm xuống dưới ngưỡng 20, với độ dài đọc tối thiểu là 35. Sau khi cắt, các tệp FASTQ có điểm chất lượng Phred trung bình trên mỗi lần đọc lớn hơn 30 (tức là, lỗi trình tự nhỏ hơn 0,1 phần trăm). Các lần đọc cắt tỉa được ánh xạ tới bộ gen tham chiếu của chuột (mm10) bằng cách sử dụng Bowtie240 được triển khai trong chiết xuất Bismark. 41 Methyl _ trong Bismark được sử dụng để trích xuất thông tin methyl hóa CpG và tạo báo cáo methyl hóa. MethylKit42 được sử dụng để phân tích các vùng bị metyl hóa khác nhau (DMR). Trạng thái metyl hoá được tóm tắt qua các cửa sổ không hoán đổi của 500 cặp bazơ và phân tích metyl hoá khác biệt được thực hiện, với FDR tiêu chuẩn là 0,05,35 Bộ dữ liệu đã được gửi vào Gene Expression Omnibus.

Lợi ích của chiết xuất cistanche
3. KẾT QUẢ
3.1 Nicotine của người mẹ tăng cường điều hòa nỗi sợ theo ngữ cảnh và đảo ngược sự tăng cường nicotine cấp tính của điều hòa sợ hãi theo ngữ cảnh ở chuột thế hệ F1 và F2
Những con chuột đực và cái F1 bị NIC ‐ Sired và SAL ‐ Sired sợ hãi với điều kiện sử dụng SAL hoặc NIC cấp tính (0. 0 9 mg / kg ip, Hình 1A). Phân tích đầy đủ về cơ sở, trước khi CS và đóng băng CS được bao gồm trong Thông tin hỗ trợ. ANOVA 3 chiều về đông lạnh theo ngữ cảnh với điều trị cho đực giống, điều trị bằng thuốc cấp tính và giới tính như các yếu tố cho thấy sự tương tác đáng kể giữa đực giống × việc điều trị bằng thuốc cấp tính (F (1,36)=32. 75, P <. {27="" }}="" 0="" 1).="" bởi="" vì="" không="" có="" tương="" tác="" đáng="" kể="" giữa="" giới="" tính="" và="" đực="" giống="" hoặc="" điều="" trị="" bằng="" thuốc="" cấp="" tính,="" anova="" 2="" chiều="" thu="" gọn="" giữa="" giới="" tính="" đã="" được="" thực="" hiện="" và="" cho="" thấy="" một="" điều="" trị="" đực="" giống="" đáng="" kể="" ×="" tương="" tác="" điều="" trị="" thuốc="" cấp="" tính="" (f="" (1,40)="20." 96="" ,="" p=""><0,001). các="" so="" sánh="" hậu="" kỳ="" chỉ="" ra="" rằng="" chuột="" f1="" được="" xử="" lý="" bằng="" nước="" muối="" có="" nic="" sired="" có="" biểu="" hiện="" điều="" hòa="" sợ="" hãi="" theo="" ngữ="" cảnh="" tăng="" lên="" so="" với="" chuột="" f1="" được="" xử="" lý="" bằng="" nước="" muối="" sal="" ‐="" sired="" (t="" 20="2." 73,="" p=""><0,05). cùng="" với="" những="" phát="" hiện="" trước="" đó,="" 43="" nic="" cấp="" tính="" ở="" mức="" 0,09="" mg="" kg="" tạo="" ra="" điều="" kiện="" sợ="" hãi="" theo="" ngữ="" cảnh="" được="" nâng="" cao="" ở="" chuột="" sal="" ‐="" sired="" (t="" 22="2." 99,="" p=""><0,01). tuy="" nhiên,="" nic="" cấp="" tính="" ở="" mức="" 0,09="" mg="" kg="" làm="" suy="" giảm="" khả="" năng="" điều="" hòa="" sợ="" hãi="" theo="" ngữ="" cảnh="" ở="" chuột="" lai="" tạo="" với="" nic="" (t="" 18="3." 36,="" p=""><0,01). nhìn="" chung,="" mức="" đóng="" băng="" bối="" cảnh="" ở="" chuột="" nic="" sired="" nic="" tương="" đương="" với="" mức="" được="" quan="" sát="" ở="" chuột="" sal="" ‐="" sired="" sal="" ở="" cả="" 0,09="" mg="" kg="" (p=""> 0,05).
Ngoài ra, các động vật đực và cái NIC‐ và SAL ‐ Sired đã được kiểm tra độ nhạy với sốc (Hình S2), mê cung cộng cao (EPM, Hình S3), trường mở và các mô hình nhận dạng đối tượng mới (Hình S4, xem Thông tin hỗ trợ để biết các phương pháp đầy đủ và kết quả). Ngoại trừ những con cái NIC Sired trong EPM (những con có biểu hiện gia tăng hành vi lo lắng) và những con NIC ‐ Sired trong nhạy cảm với cú sốc (những con cho thấy giảm phản ứng giọng nói với cú sốc, điều này sẽ không làm rối loạn kiểu hình đa thế hệ học tập sợ hãi tăng cường), không có sự khác biệt được phát hiện giữa chuột NIC‐ và SAL ‐ Sired.

HÌNH 1 Nicotine của người mẹ tăng cường khả năng điều hòa sợ hãi theo ngữ cảnh và làm giảm mức độ tăng cường nicotine cấp tính của điều hòa sợ hãi. Việc đóng băng theo ngữ cảnh cao hơn đáng kể trong các điều khiển NIC ‐ Sired cộng với SAL so với các điều khiển SAL ‐ Sired cộng với SAL. Nicotine cấp tính ở mức 0. 09 mg / kg nâng cao khả năng điều hòa sợ hãi theo ngữ cảnh ở SAL ‐ Sired nhưng làm giảm đáng kể điều hòa sợ hãi theo ngữ cảnh ở động vật NIC ‐ Sired (n=10 - 12 mỗi nhóm). B, Việc đóng băng theo ngữ cảnh cao hơn đáng kể trong điều khiển NIC ‐ grandire cộng với SAL so với điều khiển SAL ‐ grandire cộng với SAL (n=9 - 11 cho mỗi nhóm). Các thanh lỗi chỉ ra sai số chuẩn của giá trị trung bình (SEM), * P <>
Để xác định xem liệu khả năng điều hòa sợ hãi theo ngữ cảnh bị suy yếu có tiếp tục sang thế hệ tiếp theo (F2) hay không, chuột đực và chuột cái F2 NIC và SAL-cháu trai đã được lai tạo từ những con chuột đực F1 ngây thơ. Phân tích đầy đủ về cơ sở, trước khi CS và đóng băng CS được bao gồm trong Thông tin hỗ trợ. ANOVA 3 cách của đông lạnh theo ngữ cảnh được thực hiện với điều trị bằng thuốc kháng sinh, điều trị bằng thuốc cấp tính và giới tính là các yếu tố độc lập (Hình 1B). Do không có sự tương tác đáng kể giữa giới tính và đực giống hoặc điều trị bằng thuốc cấp tính, ANOVA 2 chiều thu gọn qua giới tính đã được thực hiện. Một tác động chính đáng kể của đực giống (F (1,37)=9. 88, P <. 0="" 1)="" đã="" được="" tìm="" thấy="" và="" các="" so="" sánh="" hậu="" kỳ="" chỉ="" ra="" rằng="" chuột="" nic="" ‐="" cháu="" trai="" có="" biểu="" hiện="" điều="" hòa="" sợ="" hãi="" theo="" ngữ="" cảnh="" tăng="" lên="" so="" với="" với="" chuột="" sal="" ‐="" grandire="" (t="" 39="3." 04,="" p=""><0,01). ngoài="" ra,="" chuột="" sal="" ‐="" cháu="" được="" sử="" dụng="" nic="" cấp="" tính="" đã="" tăng="" cường="" điều="" kiện="" sợ="" hãi="" theo="" ngữ="" cảnh="" (t="" 19="2." 41,="" p="0." 026)="" nhưng="" nic="" cấp="" tính="" không="" tăng="" cường="" điều="" kiện="" sợ="" hãi="" theo="" ngữ="" cảnh="" ở="" chuột="" nic="" cháu="">

HÌNH 2 Nicotine của người mẹ giúp tăng cường khả năng điều hòa nỗi sợ và phục hồi trí nhớ về nỗi sợ hãi một cách tự phát. Để kiểm tra các hiệu ứng trần tiềm năng trong quá trình thử nghiệm được giám sát, một nhóm chuột F1 riêng biệt đã được huấn luyện giống hệt nhau với chỉ một cặp CS-US. Cả điều kiện sợ hãi theo ngữ cảnh và được giám sát đều được gia tăng ở chuột NIC ‐ Sired so với chuột SAL ‐ Sired được huấn luyện với 1 cặp CS ‐ US (n=8 - 10 mỗi nhóm). B, Phơi nhiễm nicotine của người mẹ không ảnh hưởng đến sự tuyệt chủng của nỗi sợ hãi theo ngữ cảnh nhưng tăng cường khả năng phục hồi tự phát của ký ức sợ hãi trong 7 ngày sau phiên tuyệt chủng cuối cùng (n=8 - 10 cho mỗi nhóm). Các thanh lỗi chỉ ra sai số chuẩn của giá trị trung bình (SEM), * P <>
3.2 Nicotine của người mẹ giúp tăng cường khả năng điều hòa nỗi sợ hãi ở chuột thế hệ F1
Để kiểm tra xem liệu hiệu ứng trần có ngăn cản việc phát hiện sự khác biệt giữa các nhóm đối với điều kiện sợ hãi được dự đoán hay không (xem Thông tin hỗ trợ), một nhóm chuột F1 riêng biệt đã được huấn luyện với một cặp CS-US. Trong nhóm thuần tập này, việc tăng cường khả năng điều hòa nỗi sợ hãi theo ngữ cảnh (t 7=3. 21, P <.05) cũng="" như="" điều="" hòa="" nỗi="" sợ="" hãi="" đã="" được="" tìm="" thấy="" ở="" chuột="" nic="" ‐="" sired="" (t="" 6="2." 41,="" p=""><. 05;="" hình="">
3.3 Nicotine của người mẹ giúp tăng cường khả năng phục hồi tự phát trí nhớ sợ hãi theo ngữ cảnh ở chuột thế hệ F1
Sau đó, nhóm chuột F1 nhận một cặp CS-US đã được kiểm tra khả năng tuyệt chủng và khả năng phục hồi tự phát của trí nhớ sợ hãi theo ngữ cảnh. F1 NIC ‐ Chuột Sired cho thấy sự tuyệt chủng sợ hãi bình thường nhưng cho thấy khả năng phục hồi tự phát tăng cường của trí nhớ sợ hãi theo ngữ cảnh so với chuột SAL ‐ Sired (t 7=3. 38, P <0. 05;="" hình="">
3.4 Nicotine của người mẹ làm giảm việc tự sử dụng nicotine
Trước khi được đào tạo để tự quản lý nicotine, các đối tượng đã được phân tích khả năng của họ trong việc học một nhiệm vụ vận hành để nhận được phần thưởng thức ăn, và không có sự khác biệt nào được quan sát (Thông tin hỗ trợ, Hình S5). Để kiểm tra các tác động tiềm ẩn của việc phơi nhiễm nicotin của đực giống đối với việc tăng cường nicotin ở thế hệ con lai F1, việc thu nhận tự sử dụng nicotin IV (0. 03 mg / kg / lần truyền) đã được đánh giá trong ANOVA thiết kế hỗn hợp 2 chiều, đã xác định được hiệu ứng chính của phiên (F (7,119)=13. 60, P <. 00="" 1)="" và="" phiên="" ×="" tương="" tác="" đối="" xử="" với="" đực="" giống="" (f="" (7,119)="5." 00,="" p="">< .001).="" tuy="" nhiên,="" các="" bài="" kiểm="" tra="" post="" hoc="" không="" cho="" thấy="" bất="" kỳ="" sự="" khác="" biệt="" có="" ý="" nghĩa="" thống="" kê="" nào="" giữa="" các="" nhóm="" trong="" mỗi="" lần="" trong="" số="" tám="" phiên="" tiếp="" thu="" (hình="" 3a).="" sau="" đó,="" số="" lượng="" các="" lần="" nhấn="" cần="" hoạt="" động="" và="" không="" hoạt="" động="" được="" phân="" tích="" để="" xác="" định="" xem="" các="" nhóm="" có="" duy="" trì="" sở="" thích="" trên="" toàn="" phiên="" đối="" với="" cần="" hoạt="" động="" trong="" quá="" trình="" chuyển="" đổi="" hay="" không="" (hình="" 3b),="" điều="" này="" đã="" xác="" định="" tác="" động="" chính="" của="" phiên="" (f="" (7.238)="" {{20}="" }="" .18,="" p=""><.001) và="" tương="" tác="" xử="" lý="" phiên="" ×="" đực="" giống="" (f="" (21,238)="11." 40,="" p=""><0,001). phân="" tích="" hậu="" kỳ="" cho="" thấy="" các="" nhóm="" khác="" nhau="" vào="" ngày="" đầu="" tiên="" tự="" sử="" dụng="" nicotine.="" nhóm="" nic="" ‐="" sired="" cho="" thấy="" khả="" năng="" nhấn="" cần="" chủ="" động="" nhiều="" hơn="" so="" với="" nhóm="" sal="" ‐="" sired.="" hiệu="" ứng="" này="" có="" thể="" thể="" hiện="" mức="" độ="" lớn="" hơn="" của="" hành="" vi="" tìm="" kiếm="" ma="" túy="" vào="" ngày="" đầu="" tiên="" tiếp="" xúc,="" sự="" kiên="" trì="" đáp="" ứng="" phần="" thưởng="" thức="" ăn="" và="" hoặc="" giảm="" tính="" linh="" hoạt="" trong="" nhận="" thức="" trong="" việc="" chuyển="" đổi="" phản="" ứng="" từ="" thức="" ăn="" sang="" ma="" túy.="" tuy="" nhiên,="" sự="" khác="" biệt="" này="" không="" kéo="" dài="" trong="" các="" phiên="" tiếp="" theo.="" chuột="" sal="" ‐="" sired="" thể="" hiện="" sở="" thích="" nhất="" quán="" có="" ý="" nghĩa="" thống="" kê="" đối="" với="" đòn="" bẩy="" hoạt="" động="" so="" với="" đòn="" bẩy="" không="" hoạt="" động="" của="" chúng="" (post="" hoc="" p=""><0,01), nhưng="" chuột="" nic="" ‐="" sired="" không="" thể="" hiện="" sở="" thích="" duy="" trì="" này="" trong="" các="" phiên="" từ="" 3="" đến="">
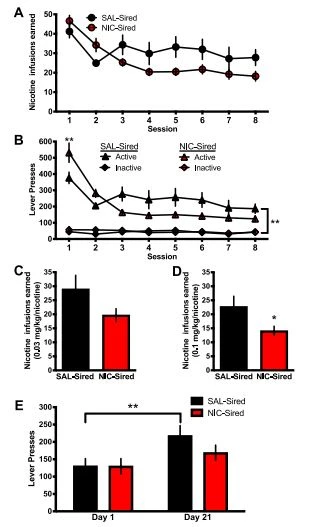
HÌNH 3 Nicotine của người mẹ làm giảm việc tự sử dụng nicotine. Một con chuột đực được nuôi dưỡng NIC‐ và SAL ‐ (n=9 - 1 0 mỗi nhóm) không khác nhau về tổng số lượng dịch truyền thu được cho mỗi phiên trong suốt thời gian thu nhận trên 0 .03 mg / kg / liều truyền. B, Trong quá trình thu nhận, số lần nhấn cần hoạt động và không hoạt động khác nhau đáng kể trong phiên đầu tiên, với chuột NIC ‐ Sired nicotine thể hiện số lần nhấn cần hoạt động nhiều hơn so với chuột SAL ‐ Sired. Tuy nhiên, trong các phiên tiếp theo, chuột NIC ‐ Sired giảm phản ứng, dẫn đến không có sự khác biệt đáng kể giữa số lần nhấn cần hoạt động và không hoạt động của chúng trong các phiên từ 3 đến 8. Ngược lại, động vật SAL ‐ Sired thể hiện sự ưa thích có ý nghĩa thống kê nhất quán đối với đòn bẩy hoạt động qua đòn bẩy không hoạt động của họ. C, Số lần truyền nicotine trung bình trong ba lần thu nhận cuối cùng không khác biệt đáng kể giữa chuột NIC‐ và SAL ‐ Sired. D, Với liều lượng vừa phải 0,1 mg / kg / lần truyền, chuột NIC ‐ Sired đã tự truyền một lượng nicotine thấp hơn đáng kể. E, Quá trình ủ bệnh đánh giá sự thèm muốn cho thấy sự gia tăng đáng kể trong phản ứng trên đòn bẩy hoạt động trước đó sau 21 ngày kiêng cữ chỉ đối với chuột SAL ‐ Sired. Các thanh lỗi chỉ ra sai số chuẩn của giá trị trung bình (SEM), * P <>
Để kiểm tra thêm sự khác biệt của các nhóm tiềm năng trong khi kiểm soát sự thay đổi trong giai đoạn đầu tiếp nhận, số lần truyền nicotine trung bình đã được kiểm tra trong ba phiên cuối cùng, thời điểm mà các đối tượng thể hiện phản ứng nhất quán hơn đối với nicotine (Hình 3C). Các nhóm không có sự khác biệt đáng kể về số lần truyền nicotin trung bình (P>. 0 5). Sau đó, những con chuột được chuyển sang liều 0,1 mg / kg / lần truyền nicotin, trước đây được chứng minh là ưa thích hơn ở chuột C57BL6 / J trưởng thành.44 Ở liều lượng này, chuột NIC ‐ Sired tự sử dụng một số lượng dịch truyền thấp hơn (t { {7}}. 20, P <.05; hình="" 3d).="" để="" ủ="" bệnh="" cho="" hành="" vi="" thèm="" muốn,="" được="" coi="" là="" thước="" đo="" của="" việc="" tăng="" cường="" tìm="" kiếm="" ma="" túy="" trong="" thời="" gian="" kiêng="" khem,="" anova="" thiết="" kế="" hỗn="" hợp="" 2="" chiều="" với="" điều="" trị="" phiên="" và="" đực="" giống="" đã="" xác="" định="" tác="" dụng="" chính="" của="" phiên="" (f="" (1,17)="" {{16}="" }="" .90,="" p=""><.001). trong="" khi="" động="" vật="" sal="" ‐="" sired="" cho="" thấy="" hiệu="" ứng="" ủ="" bệnh="" với="" phản="" ứng="" tốt="" hơn="" vào="" ngày="" kiêng="" 21="" so="" với="" ngày="" 1,="" chuột="" nic="" ‐="" sired="" không="" biểu="" hiện="" sự="" gia="" tăng="" hành="" vi="" tìm="" kiếm="" nicotine="" (p=""><>
3.5 Phơi nhiễm nicotin ở người mẹ làm thay đổi chức năng và liên kết cholinergic ở hải mã
Liên kết nAChR hippocampal có ái lực cao được điều chỉnh ở chuột NIC ‐ Sired F1 (t 28=2. 14, P <. 0="" 5;="" sal="" ‐="" sired="1." 21="" ±="" {{10}="" }="" .043,="" nic="" ‐="" sired="1." 34="" ±="" 0.044).="" một="" chủ="" đề="" (nic="" ‐="" sired)="" đã="" bị="" xóa="" vì="" giá="" trị="" ràng="" buộc="" cao="" hơn="" hai="" độ="" lệch="" chuẩn="" so="" với="" giá="" trị="" trung="">
Các bản ghi amperometric của dòng ACh tạo ra kali và nicotin được đánh giá trong F1 dHPC và vHPC. Do kích thước mẫu không đồng đều theo giới tính, giới tính không được đưa vào làm yếu tố sơ bộ trong các phân tích này. KCl khử cực ‐ tín hiệu cholinergic gợi lên không khác biệt giữa chuột SAL‐ và NIC ‐ Sired trong dHPC (P> 0,05; Hình 4A); tuy nhiên, việc sử dụng nicotine tại chỗ đã làm giảm đáng kể biên độ tín hiệu cholinergic ở chuột NIC ‐ Sired (t 8=2. 33, P <0,05; hình="" 4c).="" trong="" vhpc,="" sự="" giải="" phóng="" ach="" đã="" giảm="" ở="" chuột="" nic="" ‐="" sired="" sau="" khi="" áp="" dụng="" kcl="" (t="" 8="2." 60,="" p=""><.05; hình="" 4b)="" hoặc="" nicotine="" (t="" 8="2." 98,="" p=""><.05 ;="" hình="">
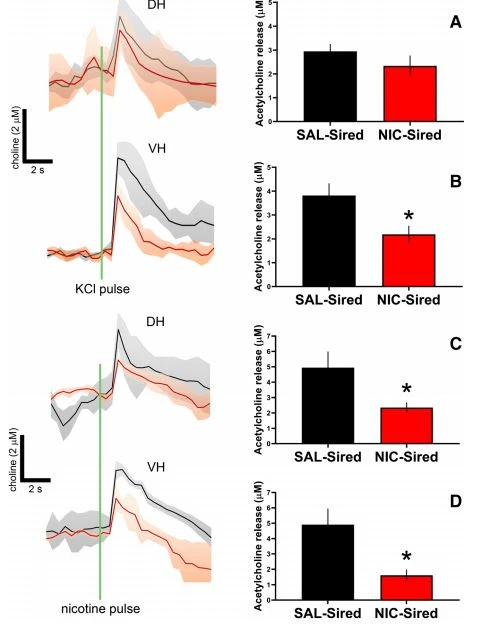
HÌNH 4 Nicotine của người mẹ làm giảm tín hiệu cholinergic ở vùng hải mã. Tín hiệu choline dân số dHPC được tạo ra bởi quá trình khử cực đầu cuối cảm ứng KCl. Không có sự khác biệt đáng kể nào được phát hiện giữa động vật NIC‐ và SAL ‐ Sired (n=5 mỗi nhóm). B, tín hiệu choline dân số vHPC do khử cực đầu cuối gây ra bởi KCl bị giảm ở chuột NIC ‐ Sired. C, Các tín hiệu choline dHPC của quần thể được kích thích bởi nicotine đã giảm ở chuột NIC ‐ Sired. D, Các tín hiệu choline vHPC trong quần thể được kích thích bởi nicotine đã giảm ở chuột NIC ‐ Sired. Không quan sát thấy ảnh hưởng của quan hệ tình dục lên tín hiệu cholinergic. Các thanh lỗi chỉ ra sai số chuẩn của giá trị trung bình (SEM), * P <>
3.6 Phơi nhiễm nicotin của người mẹ làm thay đổi khác biệt sự biểu hiện của gen hồi hải mã ở lưng và bụng
Phân tích phiên mã vùng hải mã F1 thông qua giải trình tự RNA cho thấy 952 gen biểu hiện khác biệt trong vHPC (FDR=0. 05; Bảng S2). Trong số những gen này, 612 gen được điều hòa giảm và 340 gen được điều hòa ở chuột NIC ‐ Sired. Trong dHPC, chỉ có 162 gen được biểu hiện khác biệt ở chuột NIC ‐ Sired so với chuột SAL ‐ Sired (FDR=0. 05). Trong số 162 gen này, 86 đã được điều hòa giảm và 76 gen được điều hòa. Một trăm ba gen có biểu hiện gen bị thay đổi chồng chéo lên nhau giữa vHPC và dHPC.
3.7 Phơi nhiễm nicotin ở người mẹ làm thay đổi các con đường phiên mã liên quan đến sự phát triển hệ thần kinh
Trong vHPC, phân tích IPA đã xác định được mạng hàng đầu "Bệnh thần kinh, Tổn thương và bất thường ở cơ quan, Cái chết và sự sống còn của tế bào" (điểm=41, Bảng S3) và mạng hàng đầu thứ hai "Chức năng và phát triển hệ thần kinh, Hình thái mô, Thần kinh Bệnh tật "(điểm=23). Năm hạng mục chức năng tế bào và phân tử hàng đầu là: "Hình thái tế bào" (88 phân tử), "Tổ chức và tổ chức tế bào" (79 phân tử), "Phát triển tế bào" (96 phân tử), "Chức năng tế bào và duy trì" (79 phân tử), và "Tăng trưởng và Tăng sinh Tế bào" (87 phân tử). Chức năng và phát triển hệ thống sinh lý hàng đầu là "Chức năng và phát triển hệ thần kinh" (175 phân tử), và một số chức năng về bệnh và rối loạn hàng đầu bao gồm "Bệnh thần kinh" (thứ hai, 191 phân tử) và "Rối loạn tâm lý" (thứ tư, 90 phân tử ) (Bảng S4).
Bổ sung cho kết quả IPA, phân tích làm giàu bằng Enrichr đã cung cấp thêm bằng chứng về những thay đổi trong quá trình tăng trưởng và phát triển tế bào trong vHPC, với các thuật ngữ sinh học GO hàng đầu bao gồm "nối RNA", "phản ứng với protein mở ra" và "điều chỉnh tăng trưởng tế bào" và " ổn định protein ”(Bảng S5). Tương ứng, "phức hợp tế bào ghép" được xác định là một thuật ngữ di động GO hàng đầu. Phân tích lộ trình KEGG thông qua Enrichr cũng chỉ ra chức năng spliceosome và tín hiệu MAPK là những con đường có khả năng bị ảnh hưởng.
Mặc dù danh sách các gen được biểu hiện khác biệt trong dHPC ngắn hơn đáng kể so với vHPC, các con đường và thuật ngữ làm giàu dHPC tương tự đã được xác định (Bảng S3 và S4). Phân tích IPA đã xác định mạng hàng đầu "Hành vi, Bệnh thần kinh, Tổn thương cơ quan và các bất thường" (điểm=24) và mạng hàng đầu thứ hai "Bệnh thần kinh, Tổn thương cơ quan và các bất thường và Rối loạn tâm lý (điểm=20) .
Năm hạng mục Chức năng Tế bào và Phân tử hàng đầu trong dHPC là "Phát triển Tế bào" (29 phân tử), "Tăng trưởng và Tăng sinh Tế bào" (29 phân tử), "Hình thái Tế bào" (27 phân tử), "Tổ chức và Tổ chức tế bào" (23 phân tử) và "Chức năng và sự duy trì của tế bào" (25 phân tử). "Chức năng và phát triển hệ thần kinh" một lần nữa được xác định là một thuật ngữ được bổ sung nhiều nhất theo phân loại Chức năng và Phát triển Hệ thống Sinh lý (thứ hai, 44 phân tử). Các thuật ngữ phong phú hàng đầu trong phân loại Bệnh và Rối loạn chức năng bao gồm "Bệnh thần kinh" (thứ nhất, 51 phân tử) và "Rối loạn tâm lý" (thứ năm, 31 phân tử). Phân tích làm giàu bằng Enrichr đã xác định nhiều thuật ngữ sinh học GO khác nhau cho dHPC so với vHPC, bao gồm "điều chỉnh sự chết của tế bào thần kinh" và "phát triển não" (Bảng S5), bổ sung cho chức năng tế bào và phân tử IPA "Tế bào chết và sống sót."
Để khám phá thêm vai trò chức năng của các bản sao được biểu hiện khác biệt chồng chéo giữa dHPC và vHPC, các gen biểu hiện khác biệt chung cho cả hai vùng (tổng số 103) đã được đánh giá. Các bản sao được thể hiện khác biệt chồng chéo giữa hai vùng đều được điều chỉnh giảm hoặc điều chỉnh tăng theo cùng một hướng, cho thấy những thay đổi phổ biến trong các con đường phiên mã qua các vùng não ở chuột lai NIC. Năm danh mục Chức năng Tế bào và Phân tử hàng đầu được IPA xác định là "Sự sống và chết của tế bào" (17 phân tử), "Chuyển động của tế bào" (10 phân tử), "Tín hiệu và tương tác giữa tế bào với tế bào" (17 phân tử), "Tăng trưởng tế bào và Tăng sinh "(18 phân tử), và" Hình thái tế bào "(17 phân tử) (Bảng S4)
Các gen biểu hiện khác biệt duy nhất đối với dHPC và vHPC sau đó đã được phân tích riêng biệt trong IPA để kiểm tra sự thích nghi sinh học thần kinh khác nhau giữa hai vùng (Bảng S6). Không có đường dẫn chính tắc nào được bổ sung chồng chéo giữa các phân tích dHPC duy nhất của vHPC. Các con đường chính tắc được làm giàu hàng đầu duy nhất cho vHPC (tổng cộng 44) bao gồm "Truyền tín hiệu canxi" và "Truyền tín hiệu thụ thể Glucocorticoid", trong khi các lộ trình chuẩn dHPC hàng đầu (tổng số tám) bao gồm "Chuyển hóa Hormone tuyến giáp" và "Truyền tín hiệu qua trung gian Apoptosis của axit retinoic." Các bệnh và chức năng phong phú chỉ có trong vHPC (tổng số 295) bao gồm "Sự hình thành của [Hippocampus] Sừng của Ammon" và "Số lượng Tế bào Protrusions" trong khi các thuật ngữ về chức năng và bệnh được làm giàu dHPC (tổng số 111) bao gồm "Viêm chất trắng" và "Sự khử men . "
3.8 Phơi nhiễm nicotin của người mẹ làm thay đổi quá trình methyl hóa DNA của hải mã
Một phân tích methyl hóa DNA mục tiêu được thực hiện để xác định xem liệu sự methyl hóa DNA bị thay đổi trong các vùng điều hòa tương ứng có gây ra biểu hiện gen khác biệt ở con lai NIC ‐ Sired F1 hay không. Các mục tiêu bao gồm 1114 gen biểu hiện khác biệt được xác định trong dHPC hoặc vHPC. Trong vHPC, 11 vùng được metyl hóa khác nhau (DMRs) được phát hiện, với 8 vùng cho thấy quá trình metyl hóa tăng lên và 3 vùng cho thấy quá trình metyl hóa giảm (Bảng 1). Trong số 11 DMR, 10 người nằm ở các vùng liên kết với gen có biểu hiện bị thay đổi trong vHPC. Trong dHPC, 30 DMR được phát hiện, với 15 cho thấy sự metyl hóa tăng lên và 15 cho thấy sự metyl hóa giảm. Trong số 30 DMR, 29 con nằm ở các vùng liên kết với một gen có biểu hiện bị thay đổi trong dHPC.

Bensự phù hợp của cistanche echinacoside
4. THẢO LUẬN
Sự hiểu biết ngày càng tăng về các quá trình biểu sinh kết hợp với dữ liệu gần đây, bao gồm cả những phát hiện hiện tại, đã thách thức sự hiểu biết truyền thống về thừa kế. Chỉ riêng các yếu tố ngoài kiểu gen có thể xác định kiểu hình trong các thế hệ tiếp theo và sự bộc lộ trong một thế hệ có thể không được tách biệt khỏi thế hệ con cháu. Nghiên cứu hiện tại cho thấy rằng những tác động có hại đến sức khỏe của việc tiếp xúc với nicotine có thể vượt qua mức phơi nhiễm cá nhân và ảnh hưởng đến các thế hệ tiếp theo. Chúng tôi đã xác định được các tác động đa thế hệ và chuyển thế hệ của việc tiếp xúc với nicotine của người cha theo quan niệm trước ở chuột C57BL / 6J đối với chứng sợ hãi Pavlovian, dẫn đến ký ức sợ hãi mạnh mẽ hơn ở thế hệ con cháu F1 và F2. Việc tiếp xúc với nicotine của người mẹ cũng dẫn đến việc giảm khả năng tự sử dụng nicotine và các hành vi liên quan đến tái phát giảm độc lực, cho thấy phản ứng ác cảm hơn với nicotine. Để hỗ trợ cho những khác biệt về hành vi này, những thay đổi đa thế hệ trong chức năng cholinergic của hải mã và các quá trình biểu sinh đã được quan sát thấy. Kết hợp với nhau, những kết quả này chỉ ra những thay đổi trong chức năng hệ thần kinh ở con cái của những con chuột tiếp xúc với nicotine dẫn đến kiểu hình hành vi bị thay đổi.
Con cái F1 và F2 của những con chuột đực tiếp xúc với nicotine thể hiện khả năng điều hòa sợ hãi theo ngữ cảnh và được cải thiện. Mặc dù không có sự khác biệt về sự tuyệt chủng sợ hãi theo ngữ cảnh giữa chuột NIC‐ và SAL ‐ Sired F1, chuột NIC ‐ Sired cho thấy khả năng phục hồi tự phát của ký ức sợ hãi theo ngữ cảnh được nâng cao. Điều quan trọng là không tìm thấy sự khác biệt về độ nhạy sốc giữa chuột NIC‐ và SAL ‐ Sired có thể gây ra chứng sợ hãi gia tăng. Điều chỉnh nỗi sợ tăng cường có thể gợi ý tăng cường tổng quát các quá trình học tập thay vì điều chỉnh các quá trình cụ thể hơn đối với nỗi sợ hãi phải học. Tuy nhiên, không có thay đổi nào về nhận dạng đối tượng mới, huấn luyện thức ăn mở hoặc vận động trường mở được quan sát thấy ở chuột NIC ‐ Sired, mặc dù tác động cụ thể về giới tính của việc tăng thời gian mở cánh tay EPM ở chuột cái NIC ‐ Sired đã được xác định. Mặc dù điều này không loại trừ những thay đổi tiềm năng đối với các hệ thống học tập hoặc quá trình nhận thức khác, nhưng những phát hiện này cùng nhau cho thấy rằng học về nỗi sợ hãi có thể nhạy cảm hơn với các tác động đa thế hệ và chuyển thế hệ của việc tiếp xúc với nicotine của người cha. Hơn nữa, những phát hiện này cho thấy chức năng cholinergic bị thay đổi ở động vật NIC ‐ Sired. Nicotine điều chỉnh sự điều hòa nỗi sợ hãi theo ngữ cảnh. Trong khi nicotine cấp tính tăng cường khả năng điều hòa sợ hãi theo ngữ cảnh, việc cai nghiện nicotin mãn tính 15,45 phá vỡ điều kiện sợ hãi theo ngữ cảnh.16,21 Trong nghiên cứu này, nicotin cấp tính tăng cường điều hòa sợ hãi theo ngữ cảnh ở chuột F1 và F2 từ chuột được điều trị bằng nước muối. Ngược lại, nicotine cấp tính làm gián đoạn sự điều hòa sợ hãi theo ngữ cảnh ở chuột NIC Sired và không có tác dụng ở chuột NIC-cháu trai, điều này có thể chỉ ra chức năng cholinergic bị thay đổi trong hồi hải mã.
Ảnh hưởng của việc tiếp xúc với nicotin của người cha đối với việc tự sử dụng nicotin sau này ở thế hệ F1 cũng chỉ ra rằng chức năng cholinergic bị gián đoạn. Trong quá trình thu nhận tự sử dụng nicotin IV ở liều thấp hơn, các nhóm không khác nhau về số lần truyền nicotin, mặc dù sự gia tăng số lần nhấn đòn bẩy hoạt động được tìm thấy trong nhóm NIC ‐ Sired. Điều này cho thấy rằng những con chuột NIC ‐ Sired có thể đã thể hiện sự kiên trì trong việc đáp ứng phần thưởng thức ăn và / hoặc giảm tính linh hoạt trong nhận thức trong việc chuyển đổi phản ứng từ thức ăn sang thuốc. Tuy nhiên, cũng cần lưu ý rằng các nhóm không khác nhau về ngày thứ nhất của thời kỳ ủ bệnh thèm muốn, điều này thể hiện một phiên tuyệt chủng (ví dụ: không truyền nicotine trong phiên), và do đó, hiệu ứng này dường như đã xuất hiện khi các chất củng cố được chuyển đổi nhưng không phải trong trường hợp không có chất tăng cường trong một phiên tắt. Những con chuột NIC Sired cũng có biểu hiện giảm tự sử dụng nicotin ở liều lượng vừa phải, điều này phù hợp với nghiên cứu gần đây xác định sự giảm sử dụng rượu, cocaine và opioid liên quan đến việc tiếp xúc với rượu của cha mẹ, cocaine và morphine (ví dụ: Vassoler và cộng sự, 46 như được xem xét trong Goldberg và Gould47). Sự giảm quan sát thấy trong quá trình tự sử dụng nicotine có thể là do giảm độ nhạy cảm với các tác dụng bổ ích của nicotine và / hoặc tăng độ nhạy cảm đối với các tác động phản cảm của nicotine. Thật vậy, các nhóm khác nhau ở liều lượng nicotin vừa phải nhưng không phải ở liều lượng nicotin thấp hơn, điều này ủng hộ quan điểm về phản ứng phản ứng gia tăng với liều lượng cao hơn. Điều thú vị là, chúng tôi cũng phát hiện thấy sự thiếu vắng cảm giác thèm ăn vào ngày 21 ở chuột NIC ‐ Sired sau khi tự dùng thuốc ở liều lượng vừa phải, cho thấy rằng hành vi tìm kiếm nicotine giảm có thể liên quan đến trí nhớ liên quan đến chán ghét đối với nicotine. Mặc dù các chất nền thần kinh khác nhau có thể làm nền tảng cho những tác động này đối với lượng nicotine và phản ứng liên quan đến tái phát, một nghiên cứu gần đây cho thấy rằng việc giảm DNA methyltransferase trong vùng CA1 ở hải mã làm giảm khả năng tự sử dụng morphine.48 Phát hiện này cùng với chức năng đã biết của chức năng hồi hải mã cholinergic ở quá trình học tập và ghi nhớ, hỗ trợ thêm cho khái niệm về quá trình xử lý qua trung gian nicotine bị gián đoạn trong hồi hải mã của chuột NIC ‐ Sired.

Dọc theo những dòng này, chuột NIC ‐ Sired biểu hiện tăng liên kết nAChR có ái lực cao ở hải mã. Chúng tôi cũng nhận thấy sự giảm giải phóng ACh do kali trong vHPC cũng như trong giải phóng ACh do nicotin kích thích ở cả dHPC và vHPC của động vật NIC ‐ Sired. Những thay đổi trong giải phóng ACh do khử cực phản ánh chức năng cholinergic bị thay đổi ở hạ nguồn liên kết thụ thể, trong khi những thay đổi trong giải phóng ACh do nicotin kích thích phản ánh chức năng nAChR bị thay đổi. Những dữ liệu này phù hợp với những phát hiện trước đây về liên kết nAChR ái lực cao được điều chỉnh sau khi chức năng nAChR giảm.49 Bởi vì cả giải phóng ACh do kali và nicotin kích thích đều bị thay đổi trong vHPC của chuột NIC ‐ Sired, vHPC có thể nhạy cảm hơn với những tác động đa thế hệ của việc tiếp xúc với nicotine của người cha. DHPC được biết là có khả năng điều chỉnh điều hòa sợ hãi theo ngữ cảnh. 31,50 Ức chế vHPC làm gián đoạn tình trạng sợ hãi theo ngữ cảnh và cả tình trạng sợ hãi theo ngữ cảnh 51,52 và tổn thương cholinergic vHPC làm suy giảm khả năng điều hòa sợ hãi.53

Herb cistanche
Chúng tôi cũng đã chỉ ra rằng việc truyền trực tiếp nicotine vào dHPC giúp tăng cường khả năng điều hòa nỗi sợ theo ngữ cảnh trong khi truyền vào vHPC phá vỡ điều kiện sợ hãi theo ngữ cảnh. 15 vHPC cũng có thể điều chỉnh sự phục hồi tự phát của ký ức sợ hãi theo ngữ cảnh, vì việc vô hiệu hóa mạch tiền ảo vHPC làm giảm khả năng phục hồi tự phát của ký ức sợ hãi theo ngữ cảnh. 54 Trong khi các vùng não khác liên quan đến điều hòa sợ hãi, chẳng hạn như hạch hạnh nhân, 55 cũng có thể bị ảnh hưởng bởi sự tiếp xúc với nicotin của người cha, những phát hiện này cùng với dữ liệu hiện tại cho thấy những thay đổi trong chức năng vHPC có thể là nguyên nhân dẫn đến thay đổi điều hòa sợ hãi ở chuột NIC ‐ Sired . Chúng tôi đưa ra giả thuyết rằng tác động đa thế hệ của việc tiếp xúc với nicotin của người cha có thể liên quan đến những thay đổi trong các tác nhân phiên mã hoạt động ngược dòng của các hệ thống thần kinh này. Giải trình tự phiên mã rộng bộ gen trong vHPC và dHPC của chuột thế hệ F1 đã xác định được 1114 gen biểu hiện khác biệt giữa chuột NIC‐ và SAL ‐ đã chết. Sự khác biệt này lớn hơn ở vHPC (952) so với dHPC (162), phù hợp với sự thay đổi lớn hơn trong vHPC liên quan đến chức năng cholinergic của dHPC và những thay đổi đối với cả điều kiện sợ hãi theo ngữ cảnh và theo ý muốn. Phân tích con đường tiếp theo cho thấy những thay đổi lớn đối với con đường phiên mã liên quan đến tín hiệu glucocorticoid và sự phát triển / dẻo của thần kinh ở cả hai vùng hồi hải mã.
Để xác định các khả năng thích ứng cụ thể đối với vHPC, phân tích lộ trình đã được thực hiện chỉ bằng cách sử dụng các bản sao dành riêng cho một trong hai tiểu vùng hồi hải mã. Không có con đường chuẩn IPA được làm giàu nào trùng lặp giữa vHPC và dHPC, chúng là các tiểu vùng khác biệt về chức năng của hồi hải mã.31 Khi các gen chồng lên nhau giữa dHPC và vHPC bị loại bỏ, các con đường chuẩn được làm giàu hàng đầu duy nhất cho vHPC bao gồm "Tín hiệu thụ thể Glucocorticoid", gợi ý một điểm duy nhất , thay đổi bổ sung cho chức năng của glucocorticoid ở vùng này so với dHPC. Với mục đích xác định các cơ quan điều hòa biểu sinh ngược dòng có thể hoạt động trên biểu hiện gen, chúng tôi đã thực hiện giải trình tự methyl hóa DNA được nhắm mục tiêu bằng cách sử dụng danh sách tổng hợp các gen biểu hiện khác biệt dHPC và vHPC được xác định từ trình tự RNA. Đáng ngạc nhiên là chúng tôi chỉ tìm thấy 11 DMR trong vHPC và 30 DMR trong dHPC giữa động vật NIC‐ và SAL ‐ Sired. Mặc dù điều này là bất ngờ với số lượng các bản sao được biểu hiện khác biệt cao hơn nhiều trong vHPC, nhưng quá trình methyl hóa DNA chỉ là một trong số các yếu tố điều chỉnh có thể tác động đến sự biểu hiện gen và sự methyl hóa DNA không liên tục chuyển thành biểu hiện gen bị thay đổi.56 Trong số 11 vHPC DMR, bảy biểu hiện các kiểu methyl hóa phù hợp với hướng phiên mã khác nhau (phiên mã giảm với sự methyl hóa DNA tăng và sự phiên mã tăng với sự giảm methyl hóa). Các gen được methyl hóa khác nhau trong vHPC bao gồm Fkbp5, Ksr1 và Pnpla2. Điều thú vị là, quá trình phiên mã Fkbp5 và Ksr1 đã bị gián đoạn trong một mô hình chuột hành vi của PTSD, 57 nơi những con chuột được tiếp xúc với một cú giật chân điện và sau đó đưa ra các lời nhắc tình huống. Fkbp5 mã hóa một chaperone thụ thể glucocorticoid có chức năng liên quan đến phản ứng căng thẳng kéo dài không thích hợp ở những người bị PTSD và các rối loạn lo âu khác.58
Cụ thể, các nghiên cứu trên người cho thấy rằng quá trình methyl hóa và phiên mã Fkbp5 tương quan với mức độ nghiêm trọng của các triệu chứng PTSD, như tăng methyl hóa và giảm phiên mã dự đoán triệu chứng PTSD nghiêm trọng hơn. PTSD.59,61 Phát hiện của chúng tôi về khả năng phục hồi tự phát tăng cường trí nhớ sợ hãi kết hợp với sự rối loạn điều hòa các con đường phiên mã liên quan đến tín hiệu glucocorticoid ở động vật NIC ‐ Sired có thể chỉ ra khả năng dễ bị tổn thương đối với các kiểu hình giống như PTSD. Trong dHPC, các mẫu DMR phần lớn không phù hợp với hướng biểu hiện phiên mã khác biệt được tìm thấy bằng trình tự RNA, điều này cho thấy rằng những thay đổi trong quá trình methyl hóa DNA vHPC được tạo ra bởi sự tiếp xúc với nicotine của người cha là do hậu quả của việc tác động đến biểu hiện gen hơn so với những thay đổi trong dHPC. Điều này phù hợp với việc chúng tôi xác định được số lượng nhiều hơn các bản sao được biểu hiện khác biệt và những thay đổi phóng đại hơn trong quá trình truyền cholinergic trong NIC ‐ Sired vHPC so với dHPC. Phương pháp giải trình tự nhắm mục tiêu của chúng tôi có thể đã hạn chế khả năng phát hiện khả năng điều hòa phiên mã tiềm tàng bởi các trình tự bị methyl hóa ở xa. Các nghiên cứu trong tương lai bao gồm phân tích quá trình methyl hóa DNA trên toàn bộ bộ gen, sửa đổi histone và biểu hiện RNA nhỏ sẽ cung cấp cách giải thích đầy đủ hơn về những phát hiện này.
Một hạn chế tiềm ẩn trong thiết kế tiếp xúc nicotine của chúng tôi là tập trung vào việc tiếp xúc với nicotine của người cha để điều tra tác động đa thế hệ và chuyển thế hệ của việc tiếp xúc với nicotine. Mặc dù các nghiên cứu khác tìm thấy kiểu hình đa thế hệ / chuyển thế hệ sau khi người mẹ tiếp xúc với ma túy, bao gồm cocaine46 và morphine, 62 không tìm thấy sự khác biệt trong việc chăm sóc bà mẹ, có thể việc phơi nhiễm nicotine của người cha có thể ảnh hưởng đến việc chăm sóc bà mẹ. Các nghiên cứu trong tương lai điều tra tác động đến việc chăm sóc bà mẹ được đảm bảo. Vì trọng tâm hiện tại của chúng tôi là tiếp xúc với người cha, công việc trong tương lai cũng nên so sánh tác động của việc phơi nhiễm giữa người cha và người mẹ. Nhìn chung, những phát hiện hiện tại cung cấp một hiểu biết mới về tác động đa thế hệ và chuyển thế hệ của việc tiếp xúc với nicotin, được hỗ trợ bởi một tài liệu ngày càng tăng mô tả các tác động đa thế hệ và chuyển thế hệ của việc tiếp xúc với ma túy (như được xem xét trong Goldberg và Gould47). Nghiên cứu này là nghiên cứu đầu tiên kiểm tra điều kiện sợ hãi theo ngữ cảnh ở con cái F1 và F2 của những con đực tiếp xúc với nicotine và xác định sự hình thành trí nhớ sợ hãi được tăng cường và khả năng phục hồi ký ức sợ hãi một cách tự phát. Nghiên cứu này cũng là nghiên cứu đầu tiên xác định khả năng tự sử dụng nicotine bị thay đổi và sự ấp ủ của cảm giác thèm muốn ở con cái F1 tiếp xúc với nicotine.
Sự khác biệt methyl hóa trong các gen liên quan đến rối loạn điều hòa trục PTSD và HPA cũng như sự gián đoạn đồng thời trong các con đường phiên mã liên quan đến stress đã được tìm thấy ở chuột NIC ‐ Sired. Nicotine của người mẹ cũng có liên quan đến việc giảm chức năng cholinergic ở hải mã và tăng liên kết nAChR ở hải mã. Điều thú vị là những bệnh nhân PTSD không hút thuốc cho thấy liên kết nAChR có ái lực cao hơn đáng kể ở vỏ não trung bì khoang miệng63, và PTSD có liên quan đến việc điều hòa nỗi sợ hãi lớn hơn và phục hồi tự phát ký ức sợ hãi đã dập tắt.64 Cùng với đó, phát hiện của chúng tôi cho thấy rằng phơi nhiễm nicotine có thể có tác động đa thế hệ của làm tăng tính nhạy cảm của con cái với các triệu chứng giống PTSD. Phát hiện này cùng với những phát hiện gần đây khác cho thấy tác động đa thế hệ của việc tiếp xúc với nicotine đối với tính linh hoạt của nhận thức2 cho thấy rằng các kết quả sức khỏe tiêu cực của việc tiếp xúc với nicotine tạo ra một mạng lưới rộng hơn những gì đã nghĩ trước đây.

Chiết xuất cistanche
NGƯỜI GIỚI THIỆU
1 Dai J, Wang Z, Xu W, et al. Phơi nhiễm nicotin của người mẹ xác định hành vi khác nhau trong thế hệ tiếp theo thông qua siêu metyl hóa mmu ‐ miR‐ 15b. Đại diện khoa học 2017; 7 (1): 7286.
2. McCarthy DM, Morgan TJ Jr, Lowe SE, et al. Tiếp xúc với nicotine của chuột đực gây ra suy giảm hành vi ở nhiều thế hệ con cháu. PLoS Biol. 2018; 16 (10): e2006497.
3. Zhu J, Lee KP, Spencer TJ, Biederman J, Bhide PG. Sự tăng động lây truyền qua thế hệ trong mô hình chuột mắc chứng ADHD. J Tế bào thần kinh. 2014; 34 (8): 2768‐2773.
4. Cummings KM, Proctor RN. Hình ảnh công khai thay đổi về việc hút thuốc ở Hoa Kỳ: 1964‐2014. Dấu ấn sinh học ung thư Epidemiol Trước đó. 2014; 23 (1): 32‐36.
5. Huang LL, Kowitt SD, Sutfin EL, Patel T, Ranney LM, Goldstein AO. Sử dụng thuốc lá điện tử ở học sinh trung học và mối liên quan của nó với việc sử dụng thuốc lá và cai thuốc lá, Khảo sát về Thuốc lá Thanh niên Bắc Carolina, 2011 và 2013. Prev Chronic Dis. 2016; 13: E103.
6. Holliday ED, Nucero P, Kutlu MG, et al. Ảnh hưởng lâu dài của nicotine mãn tính lên các hành vi cảm xúc và nhận thức cũng như hình thái tế bào hồi hải mã ở chuột: so sánh mức độ phơi nhiễm nicotine của người lớn và thanh thiếu niên. Eur J Neurosci. 2016; 44: 2818‐2828.
7. Johnson JG, Cohen P, Pine DS, Klein DF, Kasen S, Brook JS. Mối liên quan giữa hút thuốc lá và rối loạn lo âu trong thời kỳ thanh thiếu niên và đầu tuổi trưởng thành. JAMA. 2000; 284: 2348‐2351.
8. Jung Y, Hsieh LS, Lee AM, et al. Cơ chế biểu sinh làm trung gian các tác động của nicotine phát triển lên cấu trúc và hành vi của tế bào thần kinh. Nat Neurosci. 2016; 19 (7): 905‐914.
9. Gitik M, Holliday ED, Leung M, et al. Choline cải thiện tình trạng thiếu hụt khả năng học tập của người lớn và đảo ngược sự thay đổi biểu sinh của các yếu tố tái tạo chất nhiễm sắc liên quan đến việc tiếp xúc với nicotine ở tuổi vị thành niên. Neurobiol Tìm hiểu Mem. 2018; 155: 239‐248.
10. Chim A. Nhận thức về biểu sinh. Thiên nhiên. 2007; 447: 396‐398.
11. Skinner MK. Sự di truyền thế hệ biểu sinh môi trường và sự ổn định phân bào biểu sinh soma. Biểu sinh. 2011; 6: 838‐842.
12. Davis JA, Gould TJ. Học liên kết, hồi hải mã và nghiện nicotine. Curr Lạm dụng Ma túy Rev. 2008; 1: 9‐19.
13. Kutlu MG, Parikh V, Gould TJ. Nghiện nicotin và rối loạn tâm thần. Int Rev Neurobiol. 2015; 124: 171‐208.
14. Parikh V, Kutlu MG, Gould TJ. Rối loạn chức năng nAChR như một cơ sở phổ biến cho bệnh tâm thần phân liệt và nghiện nicotin đi kèm: xu hướng và quan điểm hiện tại. Schizophr Res. 2016; 171: 1‐15.
15. Kenney JW, Raybuck JD, Gould TJ. Các thụ thể nicotinic trong hồi hải mã ở lưng và bụng điều chỉnh khác biệt sự điều hòa nỗi sợ hãi theo ngữ cảnh. Hải mã. 2012; 22: 1681‐1690.
16. Wilkinson DS, Turner JR, Blendy JA, Gould TJ. Nền tảng di truyền ảnh hưởng đến tác động của việc cai nghiện nicotin mãn tính đối với việc học và liên kết thụ thể acetylcholine ái lực cao với nicotinic ở hồi hải mã lưng và bụng. Psychopharmacology (Berl). 2013; 225 (1): 201‐208.
17. Davis JA, Gould TJ. Tác động của DHBE và MLA đối với việc tăng cường nicotin gây ra chứng sợ hãi theo ngữ cảnh ở chuột C57BL / 6. Psychopharmacology (Berl). Năm 2006; 184: 345‐352.
18. Kutlu MG, Zeid D, Tumolo JM, Gould TJ. Chuột trước tuổi vị thành niên và thanh thiếu niên ít nhạy cảm hơn với tác động của nicotine cấp tính đối với sự tuyệt chủng và phục hồi tự phát. Brain Res Bull. 2018; 138: 50‐55.
19. Kutlu MG, Gould TJ. Nicotine cấp tính làm chậm quá trình loại bỏ nỗi sợ hãi theo ngữ cảnh ở chuột. Behav Brain Res. 2014; 263: 133‐137.
20. Benowitz NL, Hukkanen J, Jacob P thứ 3. Hóa học, chuyển hóa, động học và dấu ấn sinh học nicotine. Trong: Nicotine psychopharmacology. Berlin, Heidelberg: Springer; Năm 2009: 29‐60.
21. Davis JA, James JR, Siegel SJ, Gould TJ. Việc ngừng sử dụng nicotine mãn tính làm giảm khả năng điều hòa sợ hãi theo ngữ cảnh ở chuột C57BL / 6. J Tế bào thần kinh. Năm 2005; 25: 8708‐8713.
22. Petersen DR, Norris KJ, Thompson JA. Một nghiên cứu so sánh về sự bố trí nicotine và các chất chuyển hóa của nó ở ba dòng chuột lai tạo. Thuốc Metab Dispos. Năm 1984; 12: 725-731.
23. Gould TJ, Giáo sư Bồ Đào Nha, Andre JM, et al. Khoảng thời gian bỏ nicotine liên quan đến sự thiếu hụt trong điều kiện sợ hãi theo ngữ cảnh song song với những thay đổi trong việc điều hòa thụ thể nicotinic acetylcholine có ái lực cao ở hải mã. Neuropharmacology. 2012; 62: 2118‐2125.
24. Kutlu MG, Oliver C, Huang P, Liu ‐ Chen LY, Gould TJ. Suy giảm khả năng sợ hãi theo ngữ cảnh do nicotine mãn tính và ngừng sử dụng nicotine mãn tính có liên quan đến việc điều chỉnh nAChR ở vùng hải mã. Neuropharmacology. 2016; 109: 341‐348. 25. Damaj MI, Kao W, Martin BR. Đặc điểm của quá trình rút nicotine tự phát và kết tủa ở chuột. J Pharmacol Exp Ther. Năm 2003, 307: 526‐534.
26. Fowler CD, Lu Q, Johnson PM, Marks MJ, Kenny PJ. Tín hiệu tiểu đơn vị thụ thể nicotinic alpha5 Habenular kiểm soát lượng nicotine vào cơ thể. Thiên nhiên. 2011; 471: 597‐601.
27. Lomazzo E, MacArthur L, Yasuda RP, Wolfe BB, Kellar KJ. Phân tích định lượng các thụ thể nicotinic tế bào thần kinh đo ở vùng hải mã chuột. J Neurochem. 2010; 115: 625‐634.
28. Turner JR, Castellano LM, Blendy JA. Song song tác dụng giải lo âu và điều hòa các thụ thể acetylcholine nicotinic tế bào thần kinh sau nicotine mãn tính và varenicline. Nicotine Tob Res. 2011; 13: 41‐46.
29. Parikh V, Ji J, Decker MW, Starter M. Tiểu đơn vị beta2 trước trán và thụ thể alpha7 nicotinic acetylcholine kiểm soát khác biệt tín hiệu glutamatergic và cholinergic. J Tế bào thần kinh. 2010; 30: 3518‐3530.
30. Parikh V, Starter M. Forebrain Hệ thống cholinergic và nhận thức: những hiểu biết mới dựa trên việc phát hiện nhanh các gai choline bằng cách sử dụng cảm biến sinh học dựa trên enzyme. Trong: Cảm biến sinh học vi điện cực. Totowa, NJ: Humana Press; Năm 2013: 257‐277.
31. Fanselow MS, Dong HW. Hippocampus lưng và bụng có cấu trúc khác biệt về chức năng không? Nơron. 2010; 65 (1): 7‐19.
32. Kim D, Pertea G, Trapnell C, Pimentel H, Kelley R, Salzberg SL. TopHat2: sự sắp xếp chính xác của các transcriptomes khi có chèn, xóa và dung hợp gen. Genome Biol. 2013; 14 (4): R36.
33. Afgan E, Baker D, van den Beek M, et al. Nền tảng Galaxy dành cho các phân tích y sinh hợp tác, có thể tái tạo và có thể truy cập được: Bản cập nhật năm 2016. Axit nucleic Res. 2016; 44: W3 ‐ w10.
34. Trapnell C, Williams BA, Pertea G, và cộng sự. Việc lắp ráp và định lượng phiên mã bằng RNA ‐ Seq cho thấy các phiên mã không có chú thích và chuyển đổi đồng dạng trong quá trình biệt hóa tế bào. Nat Biotechnol. 2010; 28 (5): 511‐515.
35. Benjamini Y, Drai D, Elmer G, Kafkafi N, Golani I. Kiểm soát tỷ lệ phát hiện sai trong nghiên cứu di truyền hành vi. Behav Brain Res. Năm 2001; 125 (1‐2): 279‐284.
36. Kramer A, Green J, Pollard J Jr, Tugendreich S. Các cách tiếp cận phân tích nhân quả trong Phân tích lộ trình tài năng. Tin sinh học. 2014; 30 (4): 523‐530.
37. Kuleshov MV, Jones MR, Rouillard AD, et al. Enrichr: bản cập nhật máy chủ web phân tích làm giàu bộ gen toàn diện năm 2016. Axit nucleic Res. 2016; 44 (W1): W90 ‐ W97.
38. Wendt J, Rosenbaum H, Richmond TA, Jeddeloh JA, Burgess DL. Xác định trình tự bisulfit được nhắm mục tiêu bằng cách sử dụng hệ thống làm giàu epi SeqCap. Phương pháp Mol Biol. 2018; 1708: 383‐405.
39. Bolger AM, Lohse M, Usadel B. Trimmomatic: một tông đơ linh hoạt cho dữ liệu trình tự Illumina. Tin sinh học. 2014; 30 (15): 2114‐2120.
40. Langmead B, Salzberg SL. Căn chỉnh nhanh chóng đọc ‐ với các phương pháp Bowtie 2. Nat. 2012; 9 (4): 357‐359.
41. Krueger F, Andrews SR. Bismark: một chất đánh dấu và gọi methyl hóa linh hoạt cho các ứng dụng Bisulfite ‐ Seq. Tin sinh học. 2011; 27 (11): 1571‐1572.
42. Akalin A, Kormaksson M, Li S, và cộng sự. methylKit: một gói R toàn diện để phân tích các cấu hình methyl hóa DNA rộng của bộ gen. Genome Biol. 2012; 13 (10): R87.
43. Gould TJ, Lommock JA. Nicotine tăng cường điều hòa nỗi sợ hãi theo ngữ cảnh và cải thiện sự thiếu hụt do ethanol gây ra trong điều hòa nỗi sợ hãi theo ngữ cảnh. Behav Neurosci. 2003; 117 (6): 1276‐1282.
44. Fowler CD, Kenny PJ. Sự tự sử dụng nicotine qua đường tĩnh mạch và sự phục hồi do tín hiệu gây ra ở chuột: ảnh hưởng của liều lượng nicotine, tốc độ truyền thuốc và huấn luyện dụng cụ trước đó. Neuropharmacology. 2011; 61 (4): 687-698.
45. Gould TJ, Wehner JM. Nicotine tăng cường điều hòa nỗi sợ hãi theo ngữ cảnh. Behav Brain Res. 1999; 102 (1‐2): 31‐39.
46. Vassoler FM, White SL, Schmidt HD, Sadri ‐ Vakili G, Pierce RC. Thừa kế biểu sinh của kiểu hình kháng cocaine. Nat Neurosci. 2013; 16 (1): 42‐47.
47. Goldberg LR, Gould TJ. Ảnh hưởng đa thế hệ và chuyển thế hệ của việc người cha tiếp xúc với thuốc lạm dụng lên chức năng hành vi và thần kinh. Eur J Neurosci. 2018; 50 (3): 2453‐2466.
48. Zhang JJ, Jiang FZ, Zheng W, et al. DNMT3a trong CA1 hồi hải mã là yếu tố quan trọng trong việc thu nhận cơ chế tự quản lý morphin ở chuột. Addict Biol. 2019; ▪: ▪ ‐ ▪.
49. Schwartz RD, Kellar KJ. Các vị trí gắn kết thụ thể cholinergic nicotinic trong não: điều hòa in vivo. Khoa học. Năm 1983; 220 (4593): 214‐216.
50. Logue SF, Paylor R, Wehner JM. Các tổn thương ở vùng hải mã gây ra tình trạng thiếu khả năng học tập ở những con chuột lai trong mê cung nước Morris và gây ra chứng sợ hãi có điều kiện. Behav Neurosci. Năm 1997; 111 (1): 104‐113.
51. Zhang WN, Bast T, Feldon J. Hồi hải mã bụng và điều hòa nỗi sợ hãi ở chuột: các chứng sợ hãi đối kháng khác nhau sau khi truyền N ‐ methyl ‐ D ‐ aspartate hoặc chất đối kháng không cạnh tranh MK ‐ 801 của nó vào vùng hải mã não thất. Behav Brain Res. Năm 2001; 126 (1‐2): 159‐174.
52. Maren S, Holt WG. Hippocampus và Pavlovian điều hòa nỗi sợ hãi ở chuột: truyền muscimol vào vùng bụng, nhưng không phải lưng, hồi hải mã làm giảm khả năng nhận được sự đóng băng có điều kiện thành một kích thích thính giác có điều kiện. Behav Neurosci. Năm 2004; 118 (1): 97‐110.
53. Staib JM, Della Valle R, Knox DK. Sự gián đoạn của vách ngăn giữa và các dải chéo của Broca cholinergic phóng xạ đến vùng hải mã não thất phá vỡ trí nhớ sợ hãi thính giác. Neurobiol Tìm hiểu Mem. 2018; 152: 71‐79.
54. Vasquez JH, Leong KC, Gagliardi CM, Harland B, Apicella AJ, Muzzio IA. Sự kích hoạt cụ thể theo con đường của các tế bào hồi hải mã ở bụng chiếu tới vỏ não trước làm giảm sự đổi mới sợ hãi. Neurobiol Tìm hiểu Mem. 2019; 161: 63‐71.
55. LeDoux JE, Cicchetti P, Xagoraris A, Romanski LM. Nhân amygdaloid bên: giao diện cảm giác của hạch hạnh nhân trong điều kiện sợ hãi. J Tế bào thần kinh. Năm 1990; 10 (4): 1062‐1069.
56. Jones PA. Các chức năng của quá trình methyl hóa DNA: đảo, vị trí bắt đầu, cơ quan gen và hơn thế nữa. Nat Rev Genet. 2012; 13 (7): 484‐492.
57. Tanaka M, Li H, Zhang X, và cộng sự. Điều hòa gen phụ thuộc vào vùng và thời gian trong hạch hạnh nhân và vỏ não trước của mô hình chuột giống PTSD. Bộ não Mol. 2019; 12 (1): 25.
58. Chất kết dính EB. Vai trò của FKBP5, một đồng phụ của thụ thể glucocorticoid trong bệnh sinh và liệu pháp điều trị rối loạn ái kỷ và lo âu. Thần kinh nội tiết. 2009; 34 (Phụ lục 1): S186 ‐ S195.
59. Sarapis C, Cai G, Bierer LM, et al. Dấu hiệu di truyền cho nguy cơ PTSD và khả năng phục hồi của những người sống sót sau các cuộc tấn công của Trung tâm Thương mại Thế giới. Không đánh dấu. 2011; 30 (2/3): 101‐110.
60. Yehuda R, Daskalakis NP, Desarnaud F, et al. Dấu ấn sinh học biểu sinh như những yếu tố dự đoán và tương quan về sự cải thiện triệu chứng sau liệu pháp tâm lý ở những cựu chiến binh chiến đấu với PTSD. Psych phía trước. 2013; 4: 118.
61. Yehuda R, Cai G, Grolier JA, et al. Các mẫu biểu hiện gen liên quan đến rối loạn căng thẳng sau chấn thương sau khi tiếp xúc với các cuộc tấn công của Trung tâm Thương mại Thế giới. Khoa tâm thần sinh học. Năm 2009; 66: 708‐711.
62. Li CQ, Luo YW, Bi FF, et al. Phát triển hành vi giống như lo lắng thông qua tín hiệu IGF ‐ 2 ở hồi hải mã ở con cái của việc tiếp xúc với morphin của cha mẹ: ảnh hưởng của môi trường được làm giàu. Y học thần kinh. 2014; 39 (12): 2777‐2787.
63. Czermak C, Staley JK, Kasserman S, et al. beta2 Tính khả dụng của thụ thể nicotinic acetylcholine trong rối loạn căng thẳng sau chấn thương. Int J Neuropsychopharmacol. Năm 2008; 11 (3): 419‐424.
64. Milad MR, Pitman RK, Ellis CB, et al. Cơ sở sinh học thần kinh của việc không nhớ lại trí nhớ đã tuyệt chủng trong rối loạn căng thẳng sau chấn thương. Khoa tâm thần sinh học. Năm 2009; 66 (12): 1075‐1082.