

Nghiên cứu về một số phương pháp điều trị chấn thương thận
Mar 17, 2022
joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
IL -22- lập trình lại chuyển hóa ở thận qua trung gian PFKFB3 để điều trị chấn thương thận
Wei Chen, et al
Trừu tượng đồ họa
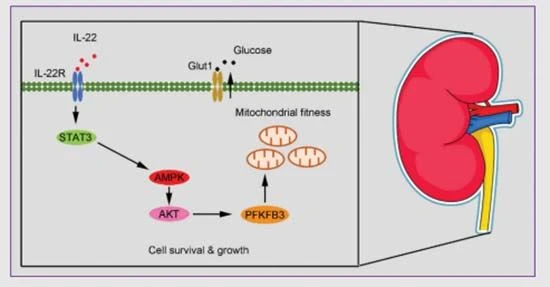
IL -22 giảm dầnquả thậnvết thươngthông qua việc tái lập trình trao đổi chất của các TEC ở thận, điều chỉnh chức năng của ty thể và đường phân trong các TEC bị hư hỏng, và làm giảm bớt sự tích tụ của ROS ty thể và các ty thể bị rối loạn chức năng thông qua việc cảm ứng các hoạt động AMPK / AKT và PFBFK3. Cải tiếnquả thậnvết thươngofIL -22 thông qua quy định tín hiệu liên quan đến chuyển hóa được chứng nhận trong các mô hình động vật bị bệnh thận do tiểu đường và tổn thương thận do cisplatin.
trừu tượng
Tổn thương thận bắt đầu tình trạng trao đổi chất xấu đi trong các tế bào ống dẫn đến sự phát triển của bệnh thận giai đoạn cuối (ESTD). Interleukin -22 (IL - 22) là thuốc giải độc trị liệu hiệu quả choquả thậnvết thươngthông qua việc thúc đẩy sự phục hồi của thận, nhưng ít được biết về các cơ chế phân tử cơ bản. Ở đây, trước tiên, chúng tôi cung cấp bằng chứng cho thấy IL -22 làm giảmquả thậnvết thươngthông qua tái lập trình trao đổi chất của các tế bào biểu mô ống thận (TEC). Cụ thể, dữ liệu của chúng tôi cho thấy IL -22 điều chỉnh chức năng ti thể và đường phân trong các TEC bị hư hỏng. Các quan sát thêm chỉ ra rằng IL -22 làm giảm bớt sự tích tụ của các loại oxy phản ứng trong ty thể (ROS) và các ty thể bị rối loạn chức năng thông qua việc cảm ứng các hoạt động của tín hiệu AMPK / AKT và PFBFK3. Ở chuột, cải thiệnquả thậnvết thươngvà hoại tử và cải thiện các chức năng thận thông qua việc điều chỉnh các tín hiệu liên quan đến chuyển hóa này và sự phù hợp của ti thể của IL tái tổ hợp -22 được chứng nhận trong các mô hình động vật bị tổn thương thận do cisplatin và bệnh thận do đái tháo đường (DN). Kết hợp với nhau, phát hiện của chúng tôi làm sáng tỏ những hiểu biết cơ học mới về tác dụng bảo vệ của IL -22 đối với thận và làm nổi bật các cơ hội điều trị của IL -22 và các chất điều hòa chuyển hóa liên quan trong các bệnh thận khác nhau.
TỪ KHÓAinterleukin -22,quả thậnvết thương, tái lập trình trao đổi chất, rối loạn chức năng ty thể
Cistanchetubulosangăn ngừa bệnh thận, bấm vào đây để lấy mẫu
1. GIỚI THIỆU
Nhọnquả thậnvết thương(AKI), một mối quan tâm sức khỏe cộng đồng phổ biến liên quan đến tỷ lệ tử vong và bệnh tật cao, ảnh hưởng đến hàng triệu bệnh nhân nhập viện trên toàn thế giới và cho thấy tỷ lệ mắc bệnh ngày càng tăng nhanh. các tế bào biểu mô hình ống (TEC), đặc biệt là ở ống lượn gần. bệnh thận giai đoạn cuối (ESTD) .8–10 Thật không may, ngoài chăm sóc hỗ trợ dựa trên lọc máu, không có phương pháp điều trị nào được thiết lập tốt choquả thậnvết thươngcó sẵn. Do đó, điều trị chủ động là rất cần thiết để giảm bớt những đau khổ mà nó gây ra cho bệnh nhân và gánh nặng tài chính đáng kể củaquả thậnvết thươngđối với cá nhân và xã hội.
Interleukin -22 (IL -22), một thành viên quan trọng của cytokine họ IL -10, gần đây đã thu hút sự chú ý to lớn như một tác nhân tồn tại trong nhiều rối loạn do tổn thương biểu mô. 11–13 IL -22 kích thích sự bảo vệ mô và cân bằng nội môi chủ yếu thông qua việc kích hoạt con đường tín hiệu STAT3 và thúc đẩy tăng sinh biểu mô.14,15 Quan trọng là, các nghiên cứu đã chứng minh rằng sự biểu hiện của IL -22 R1 chỉ giới hạn ở các TEC gần thận và điều trị bằng IL -22 có thể bảo vệ khỏi tổn thương biểu mô thận và đẩy nhanh quá trình tái tạo ống.16,17 Tuy nhiên, mặc dù tích lũy bằng chứng cho thấy IL - 22 là một thuốc giải độc trị liệu hiệu quả choquả thậnvết thương, ít được biết về cơ chế cơ bản của việc phục hồi IL - 22- gây ra TECs. Việc hiểu cơ sở phân tử của IL -22 có ý nghĩa quan trọng đối với cả việc khám phá cách IL -22 hoạt động để ức chế AKI hoặc ESTD và để khám phá các chất điều chỉnh phân tử cũng như các quá trình quan trọng liên quan đến việc ngăn ngừa tổn thương thận.
Việc sửa chữa thận sau tổn thương là một quá trình phức tạp và phụ thuộc vào trao đổi chất.18 Bằng chứng gần đây chỉ ra rằng các dấu hiệu chuyển hóa tế bào có thể điều chỉnh sự sống còn và độ dẻo của tế bào thận và do đó cung cấp những hiểu biết cơ học hữu ích về cách các quá trình trao đổi chất kiểm soát việc sửa chữa mô. 19,20 Cụ thể, những phát hiện này cho thấy rằng việc lập trình lại quá trình trao đổi chất bằng PGC1 hoặc hệ thống khử S-nitroso-CoA bảo vệ chống lạiquả thậnvết thương. Về mặt cơ học, tăng quá trình phân giải đường phân và quá trình phosphoryl hóa oxy hóa (OXPHOS) có thể thúc đẩy tăng trưởng và các con đường tín hiệu phòng thủ hoặc có thể cung cấp nhu cầu năng lượng cao hơn của quá trình nguyên phân và sinh tổng hợp đồng hóa trong quá trình sửa chữa các cơ quan. 19,21 Gần đây, các nghiên cứu của chúng tôi đã chứng minh rằng IL -22 làm giảm bớt rối loạn chức năng ti thể ở gan, liên quan đến quá trình trao đổi chất của tế bào.22,24 Vì vậy, chúng tôi đặt câu hỏi liệu IL -22 có bảo vệ chống lại tổn thương thận và quá trình chết rụng thông qua điều chỉnh trạng thái trao đổi chất của chúng hay không. Để xác định cơ chế sửa chữa thận qua trung gian IL -22, chúng tôi điều trị các tế bào biểu mô ống gần ở người (PTEC) bằng kích thích căng thẳng. Chúng tôi đề xuất rằng IL -22 thúc đẩy quá trình tái lập trình trao đổi chất để tăng cường quá trình đường phân và OXPHOS, giúp ngăn ngừa rối loạn chức năng TEC. Chúng tôi chứng minh thêm rằng IL -22 đã gây ra chương trình này thông qua việc kích hoạt tín hiệu AMPK / AKT và các chất điều chỉnh phân tử của nó để giảm bớt rối loạn chức năng ti thể. Các quan sát của chúng tôi làm sáng tỏ việc điều chỉnh các trạng thái trao đổi chất để điều trị và ngăn ngừa các bệnh về thận và cung cấp những hiểu biết mới để phát triển các biện pháp can thiệp mới hiệu quả cho tổn thương nội tạng nói chung.
Cistanche có thể điều trịquả thậnvết thương
2. VẬT LIỆU VÀ PHƯƠNG PHÁP
2.1 Thuốc thử
Oligomycin, rotenone và cyanide p-trifluoromethoxy phenyl-hydrazone (FCCP) được lấy từ Sea Horse Biosciences; IL tái tổ hợp -22 được cung cấp bởi Novoprotein (Trung Quốc); cisplatin (Crisp.), MitoTrackerGreen, LY294002, 5,5 ′, 6,6′-tetrachloro -1, 1 ′, 3,3′-tetraethylbenzimidazolylcarbocyanineiodide (JC -1) và hợp chất C đã được thu được từ Beyotime Biotechnology (Trung Quốc); các kháng thể nhắm mục tiêu Glut1, -Actin, p-AMPK, AMPK và GAPDH được mua từ Abcam; kháng thể choSTAT3, p-STAT3 (Y705), AKT, p-AKT (S473), PFKFB3 và Caspase -3 đã được mua từ Cell SignalingTechnology; rapamycin, axit palmitic (Palm.), Z-VAD-FMK và glucose được lấy từ Sigma-Aldrich; MitoSOX, Hoechst33342, MitoTracker Red và PKH26 được lấy từ Invitrogen.
2.2 Nuôi cấy tế bào
Tế bào biểu mô ống lượn gần của người (HK {{0}}) được lấy từ Ngân hàng Tế bào của Viện Hóa sinh và Sinh học Tế bào Thượng Hải, Học viện Khoa học Trung Quốc và được duy trì theo các quy trình tiêu chuẩn. HK -2 được gieo hạt trong đĩa sáu giếng (1 × 1 0 6 ô / giếng) hoặc 96- đĩa giếng (1 × 1 0 5 ô / giếng) và được nuôi cấy trong môi trường 90% RPMI1640 (Gibco) bổ sung 100 U / ml penicillin, 100 µg / ml streptomycin, và 10% huyết thanh bò thai (FBS) (Gibco). Đầu tiên chúng tôi ủ HK -2 với IL -22 (0,5 µg / ml) trong 0,5 giờ, sau đó 50 mM d-glucose hoặc 5 µg / ml cisplatin hoặc 0,2 mM axit palmitic hoặc hoặc 4 µM doxorubicin (DOX ) trong 24 giờ. Trong một số trường hợp, tế bào được nuôi cấy với sự hiện diện của Z-VAD-FMK (10 µM), hợp chất C (5 µM), LY294002 (20 µM), hoặc rapamycin (50 nM) trong thời gian được chỉ định.
2.3 Thí nghiệm cá ngựa
Chúng tôi đã phân tích TEC bằng Máy phân tích thông lượng ngoại bào Seahorse XF96 để tìm những thay đổi trong tốc độ axit ngoại bào (ECAR) và tốc độ tiêu thụ oxy (OCR). Tóm lại, HK -2 (1 × 1 0 5) đã được trồng trên 96- đĩa Seahorse tốt qua đêm. Sau đó, chúng tôi rửa các tế bào bằng môi trường xét nghiệm cá ngựa có chứa 1 mM pyruvate, 1 0 mM glucose và 2 mM glutamine (hoặc không có glucose để thử nghiệm ECAR) trong môi trường không có CO2 ở 37◦C cho {{18 }}. 5 giờ Dữ liệu thử nghiệm được ghi lại sau khi các chất ức chế được đề cập dưới đây được tiêm ở nồng độ tối ưu của FCCP (1. 0 µM), oligomycin (1,0 µM), rotenone / antimycin A (0,5 µM), 2- DG (50 mM), hoặc glucozơ (10 mM).

Cistanche có thể điều trịchấn thương thận
2.4 Mô hình chuột và động vật
Chuột đực BALB / c (6–8 tuần) được mua từ Công ty Động vật Thực nghiệm Slaccas (Thượng Hải, Trung Quốc). Chuột Db / db và Db / m do Trung tâm Nghiên cứu Động vật Mẫu thuộc Đại học Nam Kinh (Nam Kinh, Trung Quốc) cung cấp. Tất cả những con chuột được nuôi trong các cơ sở không có mầm bệnh (SPF) cụ thể và được nuôi theo các quy trình tiêu chuẩn. Đối với mô hình AKI, chuột BALB / c được tiêm cisplatin (2 0 mg / kg) hoặc kiểm soát nước muối bằng cách tiêm trong phúc mạc. Những con chuột Db / db được cho ăn với chế độ ăn nhiều chất béo (HFD) vào những thời điểm được chỉ định để gây ra bệnh thận do đái tháo đường (DN). Những con chuột Db / m được cho ăn với khẩu phần chow là nhóm đối chứng. Trong các thí nghiệm trên động vật AKI, IL -22 được tiêm trong màng bụng với liều 0,5 mg / kg / ngày hoặc 1,5 mg / kg / ngày trong 4 ngày liên tiếp. Trong các thí nghiệm trên động vật DN, IL -22 được tiêm trong màng bụng với liều 2,5 mg / kg hai lần mỗi tuần trong tám tuần liên tiếp. Những con chuột đối chứng đã nhận được lượng PBS thích hợp. Các quy trình thử nghiệm trên động vật của chúng tôi được thực hiện theo các quy trình được đánh giá và phê duyệt bởi Ủy ban Đạo đức Sử dụng và Chăm sóc Động vật của Trường Dược, Đại học Fudan. Nhuộm hóa học miễn dịch histo, đo điện thế màng ty thể, nhuộm mô học và oxy phản ứng (ROS) của các phần thận được thực hiện như đã mô tả trước đây.22–24
2.5 PCR thời gian thực
Chúng tôi thu được RNA tổng số bằng thuốc thử TRNzol (Công nghệ sinh học Beyotime, Trung Quốc) từ các mẫu tế bào hoặc mô và sau đó phiên mã chúng thành cDNA bằng cách sử dụng bộ thử nghiệm men sao chép ngược MMLV (Công nghệ sinh học Beyotime). Mức độ biểu hiện của mRNA được phân tích bằng thiết bị PCR thời gian thực (BioRad) sử dụng bộ xét nghiệm qPCR-mix màu xanh lá cây SYBR (Công nghệ sinh học Beyotime) và được chuẩn hóa theo GAPDH.
2.6 Phép đo tế bào dòng chảy
Tế bào thận được nuôi cấy và xử lý như mô tả ở trên. Quá trình nhuộm MitoSOX (mitochondrial ROS), MitoTracker Green (tổng khối lượng mitochondrial) và MitoTracker Red (tiềm năng màng ty thể) được thực hiện theo hướng dẫn của nhà sản xuất và nghiên cứu trước đó. 22–24 Chúng tôi thu được kết quả bằng Máy đo lưu lượng điện tử Beckman Coulter và Phần mềm CytExpert (BD Biosciences).
2.7 Sự hấp thụ glucose
Chúng tôi đo nồng độ glucose trong dịch nuôi cấy tế bào bằng xét nghiệm kiểm tra sự hấp thụ glucose theo quy trình của nhà sản xuất và nghiên cứu trước đó (GAHK20; Sigma). Chuẩn hóa kết quả được thực hiện theo số lượng tế bào.
2.8 Đánh sập gen
Chúng tôi đã sử dụng RNA can thiệp nhỏ (siRNA; RiboBio, China) để loại bỏ các gen cụ thể. Đầu tiên, Lipofectamine RNAiMAX và siRNA (1 0 0 pmol) được trộn nhẹ qua pipet và ủ ở 37◦C trong 0,5 giờ. Sau đó, chúng tôi thay đổi môi trường nuôi cấy tế bào tiêu chuẩn thành một cocktail chuyển nạp và ủ các tế bào trong 6 giờ để chuyển gen siRNA. Tiếp theo, chúng tôi thay đổi cocktail chuyển nạp sang môi trường nuôi cấy tế bào tươi. Sau 48 giờ, các tế bào thận được ủ với IL -22 để nghiên cứu thêm.
Cistanche có thể điều trịchấn thương thận
2,9 Western blot
Chúng tôi chiết xuất tổng số protein từ tế bào hoặc mô bằng đệm ly giải RIPA (Công nghệ sinh học Beyotime, Trung Quốc). Sau đó, chúng tôi thu thập dịch ly tâm bằng cách ly tâm ở 4◦C ở 12 000 vòng / phút trong 10 phút. Sau đó, các chất ly giải được làm nóng với bộ đệm mẫu ở 100◦C trong 15 phút, chịu điện di trên gel natri dodecyl sulfat-polyacrylamide (SDS– PAGE), và được truyền điện tới màng polyvinylidene difluoride (PVDF) (Millipore, Đức). Các màng sau đó được chặn bằng 5% albumin huyết thanh bò (BSA) trong 2 giờ và được ủ chung với các kháng thể chính ở 4◦C qua đêm. Sau khi rửa ba lần, các màng được ủ với các kháng thể thứ cấp liên hợp với peroxidase của cây cải ngựa (CST, Hoa Kỳ). Các khối protein được hình dung bằng hệ thống hình ảnh phát quang hóa học nâng cao.
2.10 Miễn dịch huỳnh quang
Các tế bào thận được cố định bởi 3 phần trăm –4 phần trăm paraformaldehyde và được ổn định bằng 0. 1 phần trăm Triton X -100. Sau đó, chúng tôi đã chặn các ô bằng BSA 5 phần trăm trong 2 giờ. Tế bào được ủ qua đêm với kháng thể kháng GLUT1 ở 4◦C, rửa bốn lần, sau đó nhuộm bằng PKH26. Sau đó, các tế bào thận được nhuộm bằng Hoechst 33342 và gắn trên các phiến kính. Dữ liệu thu được bằng kính hiển vi đồng tiêu.
2.11 RNA-seq và tin sinh học
Các mẫu của TEC (2 × 1 0 7) đã được ly giải và RNA tổng số được chiết xuất bằng bộ kit RNeasy mini, theo giao thức của nhà sản xuất (Beyotime, Thượng Hải, Trung Quốc). RNA-seq của sinh vật nhân chuẩn được thực hiện bằng công nghệ giải trình tự thế hệ tiếp theo (NGS) trên hệ thống giải trình tự Illumina HiSeq, cung cấp độ dài đọc cơ sở 50-. Việc căn chỉnh các lần đọc trình tự đã được thực hiện bằng cách sử dụng TopHat v2.0.12 so với UCSC mm10 Assembly. Phân tích biểu thức sai biệt được tính toán bằng gói DESeq2 (http://www.bioconductor.org/packages/release/ bioc / html / DESeq2.html) và phân tích ý nghĩa thống kê được thực hiện trong R (v3.1.1; http: // www .r-project.org /). Trình bày quá mức của Pathway đã được thực hiện bằng cách sử dụng gói R ReactomePA.
2.12 Thống kê
Dữ liệu được biểu thị dưới dạng trung bình ± độ lệch chuẩn (SD) và được hiển thị bằng GraphPad Prism 5. 0. Đối với kết quả so sánh hai hoặc nhiều nhóm, sự khác biệt được tính toán bằng phép thử t của Student hoặc phân tích phương sai một chiều (ANOVA): *** p <0. 0="" 0="" 1,="" **="" p=""><0,01 và="" *="" p=""><>

Cistanche có thể điều trịchấn thương thận
3. KẾT QUẢ
3.1 IL -22 duy trì sự trao đổi chất của tế bào trong các TEC
Bởi vì ty thể đã được đề xuất là bào quan quan trọng tích hợp quá trình trao đổi chất và apoptotic của tế bào, chúng tôi đã đánh giá chức năng của ty thể trong các TEC được kích thích bằngquả thậnvết thươngcác yếu tố và được điều trị bằng IL -22. 25 Như thể hiện trong Hình 1A – D, tốc độ tiêu thụ oxy cơ bản của ty thể (OCR), khả năng hô hấp tối đa (MRC) và hô hấp đã bị chặn đáng kể trong các TEC dưới các tình huống căng thẳng. Đáng chú ý, những bất thường này phần lớn đã được ngăn chặn bằng cách điều trị IL - 22. Quá trình đường phân trong các TEC bị hư hỏng, được chứng minh bằng tốc độ axit hóa ngoại bào (ECAR), cũng bị hạn chế rõ rệt, so với IL -22 cộng với các TEC bị kích thích (Hình 1B và E). Chúng tôi chứng minh thêm rằng quá trình phosphoryl hóa oxy hóa (OXPHOS) bị tổn thương và quá trình đường phân trong các TEC bị tổn thương không phải là tác động thứ cấp của quá trình apoptosis thông qua việc đồng điều trị với chất ức chế pan-caspase (Hình S1). Và tác dụng đối chiếu qua trung gian IL -22- đối với các khuyết tật chuyển hóa là đặc hiệu đối với TEC ở thận (Hình S2). Ngoài ra, IL -22 thúc đẩy tế bào HK2 OXPHOS và đường phân khi không có kích thích, cho thấy tác động của IL -22 ′ trên con đường trao đổi chất không đặc hiệu cho các TEC bị hư hỏng (Hình S3). Hơn nữa, kết quả của chúng tôi cũng chỉ ra rằng IL -22 đã thúc đẩy biểu thức và chuyển vị của IL -22 R1. Trong khi đó, quá trình phosphoryl hóa STAT3 và hiệu ứng tái lập trình trao đổi chất của IL -22 đã bị loại bỏ hoàn toàn bởi IL -22 R1 (Hình S4). Những phát hiện này cho thấy IL -22 đã khôi phục trạng thái trao đổi chất của TEC bằng cách kích hoạt trực tiếp IL -22 R1. Vì nhiều bằng chứng cho thấy Glut1 đóng vai trò chính trong quá trình đường phân và cân bằng nội môi của glucose, do đó, 26 chúng tôi đã hỏi liệu IL -22 có ảnh hưởng đến sự chuyển vị hoặc biểu hiện Glut1 hay không. Như dự đoán, chúng tôi đã chứng minh rằng IL -22 không chỉ thúc đẩy Glut1 đã chuyển vị lên bề mặt màng tế bào (PKH26) và biểu hiện Glut1, mà còn tăng cường hấp thu glucose (Hình 1F và G). Nhìn chung, những quan sát này chỉ ra rằng IL -22 có thể tăng cường OXPHOS và đường phân trong các TEC bị thương.
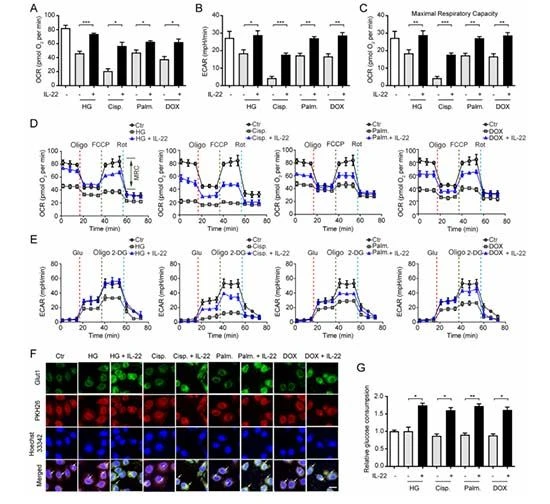
HÌNH 1 IL -22 duy trì trạng thái hoạt động của ty thể và quá trình đường phân trong TEC. (A và B) Chúng tôi sử dụng Máy phân tích thông lượng ngoại bào Seahorse XF96 để kiểm tra những thay đổi trong tốc độ axit ngoại bào (ECAR) và tốc độ tiêu thụ oxy (OCR) của TEC. OCR và ECAR trong TEC được ủ với 5 0 mM glucose, hoặc 5 µg / mL cisplatin, hoặc 0. 2 mM axit palmitic, hoặc 4 µM DOX khi có hoặc không có IL {{8} }. (C) Khả năng hô hấp tối đa (MRC) của TEC được đánh giá bằng những thay đổi trong thời gian thực trong OCR. (D và E) Các đường cong trong OCR và ECAR của TEC sau khi ủ với oligomycin, FCCP, glucose, rotenone và {{1 0}} DG. (F) Bản địa hóa và biểu hiện của hạt nhân (xanh lam), Glut1 (xanh lục) và màng sinh chất (đỏ) trong TEC. (G) Tiêu thụ glucose trong TEC sau khi điều trị IL -22 trong 24 giờ. n=3; vạch chia độ, 2 0 µm; Bài kiểm tra t của học sinh (không ghép đôi); *** p <0,001, **="" p=""><0,01, *="" p=""><>
3.2 IL -22 cải thiện sự tích tụ của các ty thể bị rối loạn chức năng trong TEC thông qua việc kích hoạt mitophagy
sự hình thành các dấu chấm LC3 trong TECs sau khi tiếp xúc với các kích thích (Hình 2F). Sau đó, chúng tôi làm cạn kiệt mitophagy để đánh giá chức năng của nó đối với sự trao đổi chất của tế bào ống thông qua siRNA-ATG5 (Hình S6). Dữ liệu của chúng tôi gợi ý rằng sự suy giảm của ty thể trong TECs đã ức chế đáng kể tác dụng bảo vệ của IL -22 trong quá trình hoạt động của ty thể trước khi phục vụ (Hình 2E), cho thấy rằng IL -22 ngăn ngừa rối loạn chức năng của ty thể thông qua việc kích hoạt ty thể.
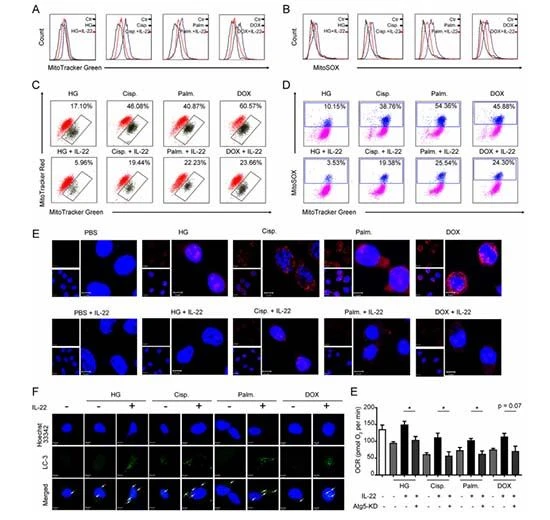
HÌNH 2 IL -22 ức chế rối loạn chức năng ti thể và sự tích tụ ROS của ti thể thông qua cảm ứng của ti thể. (A) Khối lượng ti thể được nhuộm màu và đánh giá bằng MitoTracker Green và đo tế bào dòng chảy. ROS của ty thể được đánh giá trong TEC được nhuộm bằng MitoSOX (B). Tiềm năng màng ty thể được đánh giá trong TECs nhuộm với MitoTracker Green và MitoTracker Red (C); Sự tích tụ ROS của ty thể được đánh giá bởi MitoTracker Green và MitoSOX (D). (E) Kết quả hình ảnh đồng bộ gợi ý quá trình sản xuất ROS của ty thể được dán nhãn MitoSOX. (F) Hình ảnh hiển vi đại diện cho thấy sự hình thành lỗ thủng LC 3- GFP khi có hoặc không có IL -22 TECs được kích thích như (A) trong 24 giờ. (E) OCR được đánh giá khi có hoặc không có IL -22 và siRNA-ATG5 trong 24 giờ. n=3; Bài kiểm tra t của học sinh (không ghép đôi); *** p <0. 0="" 0="" 1,="" **="" p=""><0,01, *="" p=""><>
3.3 IL -22 duy trì tính toàn vẹn ti thể của các TEC thông qua kích hoạt tín hiệu AMPK / AKT
Tín hiệu AMPK, như một trung tâm tín hiệu chính liên kết sự sống còn của tế bào và quá trình trao đổi chất, chuyển hóa glucose được kiểm soát, tổng hợp lipid và chức năng của ty thể.28 Theo tác dụng bảo vệ thận của interleukin -22 qua trung gian tái lập trình trao đổi chất của TEC, chúng tôi đã đánh giá xem IL -22 điều chỉnh tính toàn vẹn của ti thể thông qua kích hoạt truyền tín hiệu AMPK. Chúng tôi nhận thấy rằng IL -22 làm tăng hoạt động dẫn truyền tín hiệu STAT3 / AMPK / AKT trong các TEC bị thương, bằng chứng là quá trình phosphoryl hóa STAT3, AMPK và AKT (Hình 3A). Ngoài ra, các quá trình này bị chặn trong các tế bào hình ống thiếu STAT3, điều này chứng tỏ IL -22 điều chỉnh tín hiệu AMPK / AKT thông qua STAT3 (Hình 3B và C; Hình S7). Chúng tôi tiếp tục ủ các TEC với hợp chất C và LY294002 để ức chế trực tiếp quá trình truyền tín hiệu AMPK / AKT, sau đó đánh giá các chức năng ty thể và trạng thái chuyển hóa của chúng. Kết quả cho thấy rằng việc đồng điều trị với các chất ức chế tín hiệu này đã ngăn chặn đáng kể sự cải thiện OXPHOS và thông lượng glycolytic gây ra bởi điều trị IL -22 (Hình 3D – I), điều này cho thấy IL -22 thúc đẩy quá trình trao đổi chất TEC thông qua kích hoạt AMPK / Lộ trình báo hiệu AKT.

HÌNH 3 Sự cảm ứng tín hiệu AMPK / AKT bởi IL -22 duy trì trạng thái hoạt động của ty thể. TEC được kích thích 5 0 mM glucose, hoặc 5 µg / mL cisplatin, hoặc 0. 2 mM axit palmitic hoặc 4 µM DOX khi có hoặc không có IL -22, Hợp chất C hoặc LY294 0 0 2 cho thời gian đã chỉ định. (A và B) Kích hoạt đường dẫn tín hiệu AMPK / AKT trong TEC hoặc STAT 3- WT và STAT3 – KD TEC được đánh giá bằng phân tích Western blot. (C và D) Những thay đổi trong OCR và ECAR của TEC đã được phân tích. (E) Sự kích hoạt lộ trình tín hiệu AMPK / AKT trong TEC được đánh giá bằng phân tích Western blot. (F – I) Những thay đổi về OCR và ECAR của TEC được đo bằng TEC so với TEC được xử lý bằng Hợp chất C và LY294002. Bài kiểm tra t của học sinh (không ghép đôi); n=3; *** p <0,001, **="" p=""><0,01, *="" p=""><>
3.4 IL -22 duy trì sự trao đổi chất của tế bào và tính toàn vẹn của ty thể của các TEC thông qua cảm ứng PFKFB3
Hơn nữa, để khám phá cách cải thiện khả năng trao đổi chất và hoạt động của ty thể của TEC, chúng tôi đã sử dụng phân tích trình tự RNA (RNA-seq) để đánh giá biểu hiện gen sau tổn thương kích thích và điều trị IL -22. Chúng tôi đã chứng minh rằng nhiều gen đã bị thay đổi đáng kể trong TEC sau khi ủ IL -22 (Hình 4A). Sử dụng cơ sở dữ liệu có sẵn, phân tích làm giàu tập hợp gen của những gen được điều chỉnh đó đã được thực hiện, điều này cho thấy sự phong phú đáng kể của các gen trong con đường tín hiệu AMPK và con đường tín hiệu mục tiêu MYC (Hình S8). Đáng chú ý, PFKFB3 được gây ra đáng kể bởi IL -22 từ trong số các gen trongquả thậnvết thươngcác yếu tố kích thích (Hình 4A). Những quan sát này cũng được chỉ ra bằng hình ảnh đồng tiêu, Q-PCR và Western blot. Biểu hiện cao của PFKFB3 là phụ thuộc vào tín hiệu AMPK / AKT (Hình 4B và C; Hình S9).
Các nghiên cứu trước đây đã gợi ý rằng PFKFB3 có thể được điều chỉnh bởi nhiều quá trình truyền tín hiệu để đẩy nhanh quá trình tái tạo và sửa chữa biểu mô sau chấn thương. . Chúng tôi quan sát thấy rằng sự ức chế tín hiệu AMPK / AKT làm giảm biểu hiện PFKFB3 (Hình 4D). Vì vậy, chúng tôi đã tắt tiếng PFKFB3 để nghiên cứu thêm các chức năng của nó trong TEC sau khi IL -22 ủ. Các phát hiện của chúng tôi chỉ ra rằng PFKFB3 im lặng đã làm giảm bớt tác động lập trình lại trao đổi chất của IL -22 trong việc khôi phục ECAR và OCR (Hình 4E và F), đồng thời ngăn chặn sự hấp thu glucose cũng như các ty thể bị rối loạn chức năng (Hình 4G và H). Hơn nữa, chúng tôi đã chứng minh thêm rằng các hiệu ứng tái lập trình trao đổi chất của IL -22 hoàn toàn bị loại bỏ bởi STAT 3- trong khi sự biểu hiện quá mức của PFKFB3 có thể giải cứu các kiểu hình này, cho thấy IL -22 đã khôi phục trạng thái chuyển hóa của các tế bào biểu mô thận bị tổn thương thông qua nhắm mục tiêu STAT {17}} AMPK / AKT-PFKFB3 truyền tín hiệu trực tiếp (Hình S10). Tổng hợp lại, những phát hiện này chỉ ra rằng việc kích hoạt PFKFB3 đóng một vai trò quan trọng trong hoạt động thể lực của ty thể và sự loại bỏ ty thể bị rối loạn chức năng sau khiquả thậnvết thương.

HÌNH 4 IL -22 duy trì tính toàn vẹn của ti thể và chuyển hóa tế bào của TEC thông qua cảm ứng PFKFB3. (A) Đồ thị núi lửa biểu hiện gen trong TEC được kích thích bằng glucose, hoặc cisplatin, hoặc axit palmitic, hoặc CCl4 khi có hoặc không có IL -22 trong 24 giờ. (B) Dữ liệu hiển vi tiêu điểm cho thấy PFKFB3 biểu hiện quá mức trong các TEC sau khi điều trị IL -22, yêu cầu kích hoạt tín hiệu AMPK / AKT. (C) Kết quả PCR thời gian thực chỉ ra rằng IL -22 gây ra sự biểu hiện quá mức PFKFB3 trong TEC, có thể bị khối tín hiệu AMPK / AKT ức chế. (D) Kích hoạt đường truyền tín hiệu AMPK / AKT / PFKFB3 trong TEC sau khi điều trị bằng Hợp chất C và LY294 0 0 2. (E và F) ECAR và OCR trong TEC khi có hoặc không có IL -22 hoặc si-PFKFB3 trong 24 giờ. (G) Tiêu thụ glucose trong TECs sau khi điều trị IL -22 hoặc si-PFKFB3 trong 24 giờ. (H) Rối loạn chức năng ty thể được đánh giá trong TECs nhuộm với MitoTracker Red và MitoTracker Green. Bài kiểm tra t của học sinh (không ghép đôi); n=3; *** p <0. 001,="" **="" p=""><0,01, *="" p=""><>
3.5 IL -22 làm giảm chấn thương thận trong AKI do cisplatin gây ra thông qua ức chế sự tích tụ ROS ở thận và rối loạn chức năng ti thể
Để kiểm tra giả thuyết của chúng tôi rằng IL -22 điều chỉnh cấu hình trao đổi chất ở thận để ngăn chặn tổn thương ống thận in vivo, ban đầu chúng tôi đánh giá chức năng thận ở những con chuột được điều trị bằng IL -22- đã được dùng cisplatin (Hình 5A). Bốn ngày sau khi tiêm cisplatin, IL -22 không chỉ làm giảm đáng kể tổn thương tế bào ống thận và xuất huyết; rối loạn chức năng thận của họ cũng đã giảm độc lực đáng kể, được đánh giá bằng nồng độ urê huyết thanh nitơ (BUN) và creatinin (Cr) (Hình 5B – D). Chúng tôi đề xuất thêm IL -22 được ngăn chặnquả thậnvết thươngthông qua tăng cường tái tạo thận và kích hoạt tín hiệu AMPK / AKT và PFKFB3 (Hình 5E và F; Hình S11). Tiếp theo, chúng tôi sử dụng MitoSOX (thuốc nhuộm ROS đặc hiệu cho ty thể) và JC -1 (thuốc nhuộm phụ thuộc vào tiềm năng màng ty thể) để đánh giá rối loạn chức năng của ty thể liên quan đến quá trình chuyển hóa tế bào và quá trình apoptosis. Trong phần thận của những con chuột được điều trị bằng cisplatin, có sự tích tụ ROS tương đương. Đáng chú ý, ở bốn ngày sau khi điều trị IL -22, mức độ ROS ở thận bị thương đã giảm rõ rệt so với ROS ở chuột sau khi điều trị PBS (Hình 5G). Tổng hợp lại, những quan sát này cung cấp bằng chứng rằng IL -22 đóng vai trò bảo vệ trong AKI do cisplatin gây ra thông qua việc kiểm soát hoạt động của ty thể.

HÌNH 5 IL -22 làm giảm bớt tổn thương thận trong AKI do cisplatin gây ra bằng cách ức chế sự tích tụ ROS ở thận và rối loạn chức năng ti thể. (A) Sơ đồ các quy trình thử nghiệm để đánh giá tác dụng bảo vệ của IL -22 trong cisplatin (2 {0 mg / kg) gây tổn thương thận. PBS với tư cách là nhóm kiểm soát phương tiện và N-acetyl-l-cysteine (NAC, 15 0 mg / kg) là nhóm kiểm soát tích cực. (B và C) Nồng độ BUN huyết thanh, nồng độ Cr huyết thanh, trọng lượng thận và trọng lượng cơ thể được đánh giá. Hình ảnh đại diện HE (D), nhuộm Ki -67 (E), MitoSOX (G), và JC {{1 0}} (G) của các phần thận đã được trình bày. (F) So sánh sự hoạt hóa STAT3 / AMPK / AKT / PFKFB3 trong chất chiết xuất từ thận từ những con chuột được điều trị IL -22- được đánh giá bởi Western blot. Bài kiểm tra t của học sinh (không ghép đôi); n=3; *** p <0,001, **="" p=""><0,01, *="" p=""><>
3.6 IL -22 cải thiện tổn thương thận do bệnh tiểu đường thông qua ức chế rối loạn chức năng ti thể thông qua việc kích hoạt tín hiệu AMPK / AKT và PFKFB3
Chúng tôi và những người khác đã chứng minh rằng IL -22 có thể phát huy hiệu lực bảo vệ trong bệnh thận do đái tháo đường (DN), đây là nguyên nhân chính gây ra ESTD.31–33 Để nghiên cứu sâu hơn các cơ chế cơ bản, chúng tôi đã cho chuột ăn db / db cao chế độ ăn kiêng chất béo (HFD) và sau đó điều trị chúng bằng IL -22 (2,5 mg / kg, IP) trong 8 tuần (Hình 6A). Khi chỉ cho chuột ăn HFD, chúng tôi thấy ống thận bị xơ hóa và giãn ra, ngoài ra còn có hiện tượng teo. Ngược lại, khi chuột được điều trị bằng IL -22, tình trạng xơ hóa thận và mô bệnh học được cải thiện đáng kể, cũng như các chức năng của thận. Các chức năng thận được cải thiện cũng được chứng minh bằng việc giảm nồng độ Cr, BUN trong huyết thanh và tổng mức albumin trong nước tiểu / 24 giờ (UAE) (Hình 6B – E). Để nghiên cứu xem liệu những hoạt động này có liên quan đến ty thể hay không, chúng tôi đánh giá chức năng của ty thể liên quan đến quá trình trao đổi chất và quá trình chết của tế bào. Kết quả chỉ ra rằng mức độ ROS của ty thể tăng lên và các ty thể bị rối loạn chức năng tích lũy đã được giảm bớt đáng kể nhờ điều trị IL -22 (Hình 6F và G). Để nghiên cứu thêm xem các chức năng bảo vệ của IL -22 trong thận có được trung gian thông qua PFKFB3 hay không, chúng tôi đã tiêm vào chuột PFKFB3 shRNA adenovirus để đánh bại PFKFB3. Dữ liệu của chúng tôi chỉ ra rằng tác dụng có lợi của IL -22 đối với tổn thương thận do HFD gây ra, hoại tử, nhiễm mỡ, rối loạn chức năng ty thể, tích tụ ROS và kích hoạt các đường truyền tín hiệu liên quan đã bị chặn đáng kể bởi PFKFB3 (Hình 6B – G) . Sự biểu hiện tăng tín hiệu AMPK / AKT cũng được quan sát thấy sau khi điều trị bằng IL -22 (Hình 6H). Cùng với việc giảm thiểu rối loạn chức năng thận, các biểu hiện của PFKFB3 và các enzym quan trọng trong chuyển hóa tế bào cũng được cải thiện ở thận của chuột được điều trị bằng IL -22- (Hình 6H và I). Ngoài ra, phân tích mô học trên các cơ quan chính cho thấy không có tổn thương hình thái sau khi tiêm IL -22, cho thấy IL -22 có thể là một loại thuốc giải độc an toàn mà không có tác dụng phụ đáng kể hoặc phản ứng độc hại đối vớiquả thậnvết thươngrối loạn (Hình 12S). Nhìn chung, dữ liệu của chúng tôi cho thấy IL - 22 làm giảm bớt tổn thương thận thông qua việc kích hoạt dẫn truyền tín hiệu AMPK / AKT, ức chế sự tích tụ ROS và điều hòa chức năng ti thể thông qua PFKFB3.
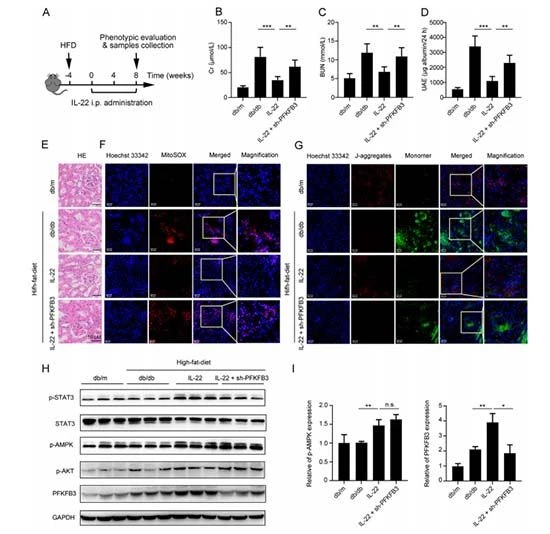
HÌNH 6 IL -22 làm giảm bớt tổn thương thận do bệnh tiểu đường gây ra thông qua tín hiệu AMPK / AKT và ức chế các ty thể bị rối loạn chức năng thông qua hoạt hóa PFKFB3. (A) Sơ đồ các quy trình thử nghiệm để đánh giá tác dụng bảo vệ của IL -22 trong tổn thương thận do đái tháo đường. Db / m làm nhóm điều khiển phương tiện. (B – D) Mức BUN huyết thanh, mức Cr huyết thanh, và UAE được đánh giá. Hình ảnh đại diện HE (E), MitoSOX (F), và JC -1 (G) của các phần thận đã được trình bày. (H và I) So sánh kích hoạt STAT3 / AMPK / AKT / PFKFB3 trong chiết xuất thận từ IL -22- chuột được điều trị được đánh giá bằng phương pháp Western blot. Bài kiểm tra t của học sinh (không ghép đôi); n=3; *** p <0. 0="" 0="" 1,="" **="" p=""><0,01, *="" p=""><>
4. THẢO LUẬN
IL -22 được tiết ra bởi các tế bào miễn dịch, chẳng hạn như tế bào NK, bạch cầu trung tính, tế bào lymphoid bẩm sinh (ILC) và tế bào T, nhưng không ảnh hưởng trực tiếp đến các tế bào này. Nó chủ yếu điều chỉnh các chức năng của tế bào biểu mô do biểu hiện IL -22 R1 hạn chế trên các tế bào biểu mô bao gồm TECs.15,34 Các nghiên cứu trước đây đã gợi ý rằng IL -22 có thể bảo vệ chống lại tổn thương biểu mô thận và đẩy nhanh quá trình tái tạo ống thông qua việc ức chế sự xâm nhập NLRP3 và kích hoạt tín hiệu STAT3 và AKT. 16,31 Tuy nhiên, cơ chế cơ bản của sự bảo vệ này vẫn chưa được làm sáng tỏ. Để xác định thêm cơ sở phân tử của chức năng IL - 22 ′ trongquả thậnvết thương, trước tiên chúng tôi điều tra xem IL -22 có thể làm giảm bớt rối loạn chức năng tế bào thận và quá trình chết rụng tiếp theo thông qua việc điều chỉnh trạng thái trao đổi chất của chúng hay không. Hơn nữa, chúng tôi nghiên cứu hai mô hìnhquả thậnvết thươngbệnh (AKI và DN) với việc quản lý IL -22 và so sánh các quan sát với các quan sát của các nhóm chứng. Chúng tôi chỉ ra rằng IL -22 điều chỉnh quá trình tái lập trình trao đổi chất để duy trì tính toàn vẹn của ty thể, giảm sự tích tụ ROS của ty thể trong các TEC bị thương, đồng thời làm giảm bớt tổn thương và hoại tử thận tiến triển. Hơn nữa, phát hiện của chúng tôi cho thấy IL - 22 có thể kích hoạt các đường dẫn tín hiệu liên quan đến AMPK / AKT trong TEC và thận, những chất trung gian quan trọng của quá trình chữa lành vết thương biểu mô và sự tồn tại của tế bào, để cải thiện rối loạn chức năng ty thể và cấu hình trao đổi chất xấu đi và mở ra một cuốn tiểu thuyết trường cho IL -22 cơ chế bảo vệ thận qua trung gian. Nhìn chung, kết quả của chúng tôi chỉ ra rằng tác dụng bảo vệ thận của IL -22 được thực hiện thông qua quá trình tái lập trình trao đổi chất.
Vai trò quan trọng của OXPHOS và quá trình đường phân trong việc bảo vệ thận đã được tiết lộ trong các nghiên cứu trước đây, trong đó cân bằng việc sử dụng nhiên liệu bằng cách ức chế S-nitrosyl hóa của pyruvate kinase M2 (PKM2) bảo vệ chống lạiquả thậnvết thương.19 Kết quả của chúng tôi, cho thấy việc thúc đẩy OXPHOS và đường phân bởi IL -22 thông qua việc tăng biểu hiện của các chất điều hòa chuyển hóa và hấp thu glucose, chứng minh rằng IL -22 đảo ngược các trạng thái trao đổi chất xấu đi liên quan đếnquả thậnvết thương. Những quan sát này phù hợp với chức năng bảo vệ thận của irisin tái tổ hợp và cũng phù hợp với những phát hiện từ tế bào gan, nơi cả OXPHOS và đường phân đều cần thiết cho các chức năng của tế bào, nhưng nếu chúng bị ức chế, thì tế bào ống chính và tế bào gan trở nên rối loạn chức năng.35, 36
Rối loạn chức năng ty thể đã nổi lên như là cơ sở phân tử quan trọng kết hợp các cấu hình trao đổi chất và quá trình chết tế bào. Ở đây, chúng tôi minh họa rằng khi kích thích các yếu tố chấn thương, việc điều trị TEC với IL -22 đã cải thiện sự tích tụ của ROS ty thể và rối loạn chức năng của ty thể so với việc giảm tính toàn vẹn và chức năng của ty thể ở các nhóm đối chứng. Điều quan trọng là các đường dẫn tín hiệu AMPK, cảm biến năng lượng quan trọng, điều chỉnh quá trình trao đổi chất để duy trì cân bằng nội môi tế bào và ngăn ngừa tổn thương tế bào hoặc mô.37–39 Trong nghiên cứu hiện tại, các quan sát của chúng tôi chỉ ra rằng IL -22 duy trì tính toàn vẹn và chức năng của ti thể thông qua việc kích hoạt Báo hiệu AMPK / AKT để chứng minh rằng IL -22 ngăn ngừa rối loạn chức năng ti thể theo phương pháp trực tiếp, điều này rất quan trọng để duy trì khả năng hô hấp của TEC. Hơn nữa, chúng tôi chứng minh rằng tín hiệu IL -22 thông qua STAT3 có tác động trực tiếp đến việc duy trì trạng thái hoạt động của ty thể, vì những điều đó đã được nghiên cứu trước đây rằng sự phosphoryl hóa STAT3 gây ra là rất quan trọng để duy trì tính toàn vẹn của ty thể.40,41
Nhiều loại tài liệu trước đây đã chỉ ra PFKFB3 đóng một phần của bộ điều biến trung tâm trong chuyển hóa tế bào. 29–30,42 Ở đây, trước tiên chúng tôi chứng minh rằng IL -22 thúc đẩy sự hoạt hóa PFKFB3 thông qua tín hiệu AMPK / AKT trong TEC, gợi ý IL { {6}} điều chỉnh các trạng thái trao đổi chất thông qua việc kiểm soát PFKFB3. Hơn nữa, các nghiên cứu trước đây còn chỉ ra rằng PFKFB3 rất quan trọng để kiểm soát OXPHOS phóng đại và quá trình đường phân trong nhiều tế bào hoặc mô. các TEC được xử lý thông qua việc kích hoạt PFKFB3. Trong số rất nhiều bộ điều biến hạ lưu của IL -22 đã được nghiên cứu, dữ liệu của chúng tôi minh họa rằng PFKFB3 được điều chỉnh đáng kể sau khi xử lý IL -22 trong quá trình TEC bị hư hỏng và trục STAT3 – AMPK / AKT PFKFB3 là rất quan trọng để bảo quản tính toàn vẹn của ty thể trong suốtquả thậnvết thương(Hình 7). Chúng vẫn đang được điều tra xem IL -22 cũng điều chỉnh các quá trình và cơ quan điều hòa chuyển hóa khác liên quan đến chấn thương thận thông qua việc kích hoạt đường truyền tín hiệu STAT3 – AMPK / AKT-PFKFB3.
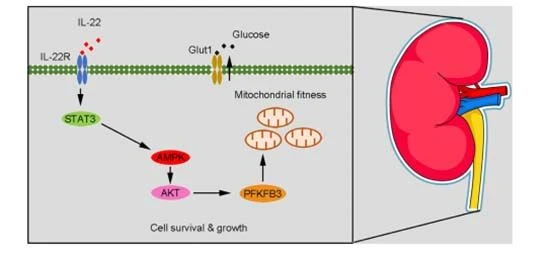
HÌNH 7 Phát hiện của chúng tôi minh họa vai trò quan trọng của IL -22 trong việc kiểm soát chuyển hóa tế bào thận để điều trị tổn thương thận thông qua việc kích hoạt trục STAT 3- AMPK / AKT-PFKFB3. Những kết quả này cho thấy rằng các cơ hội điều trị của IL -22 và việc nhắm mục tiêu tín hiệu chuyển hóa liên quan có thể trực tiếp thuận lợi cho việc điều trị hoặc phòng ngừa tổn thương thận nhiều
5. KẾT LUẬN
Kết luận, chúng tôi đã chứng minh tiềm năng điều trị và cơ chế cơ bản của IL -22 trong tổn thương thận. IL -22 điều chỉnh sự trao đổi chất của tế bào thận thông qua lập trình lại trao đổi chất để bảo toàn tính toàn vẹn của ti thể. Việc ức chế các chất điều hòa của chúng (tức là AMPK, Akt và PFKFB3) có thể dẫn đến cấu hình trao đổi chất bất thường và làm mất khả năng hoạt động của ty thể, như được chỉ ra trong TEC với điều trị -22 tự phát, làm tăng sự tích tụ ROS của ty thể rối loạn chức năng và sự tích tụ ROS của ty thể. Quan trọng nhất, tổn thương thận do rối loạn chức năng ti thể và tích tụ ROS ở các mô hình chuột đã được giảm bớt đáng kể nhờ điều trị IL -22 thông qua việc kích hoạt tín hiệu STAT 3- AMPK-AKT-PFKFB3. Do đó, nghiên cứu của chúng tôi chỉ ra rằng việc nhắm mục tiêu tín hiệu trao đổi chất liên quan có thể trực tiếp thuận lợi cho nhiều bệnh tổn thương thận và IL -22 là một tác nhân điều trị tiềm năng để ngăn ngừa và điều trị những bệnh này.
Sản phẩm Cistanche có thể điều trịchấn thương thận
Từ: 'IL -22- tái lập trình chuyển hóa ở thận qua trung gian qua PFKFB3 để điều trịquả thậnvết thương' quaWei Chen, et al
---Clin. Bản dịch. Med. Năm 2021; 11: e324.
NGƯỜI GIỚI THIỆU
1. Mehta RL, Burdmann EA, Cerdá J, et al. Nhận biết và quản lý cấp tínhquả thậnvết thươngtrong Hiệp hội Thận học Quốc tế 0 by25 Global Snapshot: một nghiên cứu cắt ngang đa quốc gia. Cây thương. 2016; 387: 2017-2025.
2. Lameire NH, Bagga A, Cruz D, và cộng sự. Nhọnquả thậnvết thương: mối quan tâm ngày càng tăng trên toàn cầu. Cây thương. 2013; 382: 170-179.
3. Mehta RL, Cerdá J, Burdmann EA, et al. Sáng kiến 0 by25 của Hiệp hội thận học quốc tế về bệnh cấp tínhquả thậnvết thương(không có trường hợp tử vong có thể ngăn ngừa được vào năm 2025): một trường hợp nhân quyền đối với bệnh thận. Năm 2015; 385: 2616-2643.
4. Levey AS, James MT. Nhọnquả thậnvết thương. Ann Intern Med.2017; 167: ITC 66- ITC80.
5. Jansen MPB, Florquin S, Mái che JJTH. Vai trò của tiểu cầu trong cấp tínhquả thậnvết thương. Nat Rev Nephrol. 2018; 14: 457-471.
6. Agarwal A, Dong Z, Harris R, et al. Cơ chế tế bào và phân tử của AKI. J Am Soc Nephrol. 2016; 27: 1288-1299.
7. Linkermann A, Chen GC, Dong G, Kunzendorf U, KrautwaldS, Dong Z. Sự chết tế bào được điều chỉnh trong AKI. J Am Soc Nephrol.2014; 25: 2689-2701.
8. Ferenbach DA, Bonventre JV. Cơ chế sửa chữa sai lầm sau AKI dẫn đến tăng tốc độ lão hóa thận và CKD.Nat Rev Nephrol. 2015; 11: 264-276.
9. Chawla LS, Eggers PW, Star RA, Kimmel PL. Nhọnquả thậnvết thươngvà bệnh thận mãn tính là các hội chứng liên kết với nhau. N Engl J Med. 2014; 371: 58-66.
10. He L, Wei QQ, Liu J, et al. AKI trên CKD: chấn thương tăng cao, khả năng sửa chữa bị ức chế và các cơ chế cơ bản. Kidney Int.2017; 92: 1071-1083.
11. Forbester JL, Lees EA, Goulding D, et al. Interleukin -22 thúc đẩy hợp nhất phagolysosome để tạo ra sự bảo vệ chống lại vi khuẩn salmonella enterica Typhimurium trong tế bào biểu mô của người.Proc Natl Acad Sci USA. 2018; 115: 10118-10123.
12. Geng H, Bu HF, Liu F, et al. Trong các mô ruột bị viêm và tế bào biểu mô, tín hiệu interleukin 22 làm tăng biểu hiện của RNA không mã hóa dài H19, giúp thúc đẩy quá trình tái tạo niêm mạc. Khoa tiêu hóa. 2018; 155: 144-155.
13. Aden K, Tran F, Ito G, et al. ATG16L1 điều phối tín hiệu interleukin -22 trong biểu mô ruột thông qua cGAS-STING. J ExpMed. 2018; 215: 2868-2886.
14. Huber SN, Gagliani LA, Zenewicz FJ, et al. IL -22 HA được điều chỉnh bởi hệ thống viêm và điều chỉnh sự hình thành khối u trong ruột. Thiên nhiên. 2012; 491: 259-263.
15. Lindemans CA, Calafiore M, Mertelsmann AM, et al.Interleukin -22 thúc đẩy quá trình tái tạo biểu mô trung gian tế bào gốc-ruột. Thiên nhiên. 2015; 528: 560-564.
16. Xu MJ, Feng D, Wang H, Guan Y, Yan X, Gao B. IL -22 cải thiện tổn thương do thiếu máu cục bộ do tái tưới máu ở thận bằng cách nhắm mục tiêu biểu mô ống lượn gần. J Am Soc Nephrol. 2014; 25: 967-977.
17. Kulkarni OP, Hartter I, Mulay SR, et al. Thụ thể giống Toll 4- IL cảm ứng -22 làm tăng tốc độ tái tạo thận. J Am Soc Nephrol. 2014; 25: 978-989.
18. Kang HM, Ahn SH, Choi P, et al. Quá trình oxy hóa axit béo bị khiếm khuyết trong tế bào biểu mô ống thận có vai trò quan trọng trong sự phát triển xơ hóa thận. Nat Med. 2015; 21: 37-46.
19. Zhou HL, Zhang R, Anand P, et al. Tái lập trình trao đổi chất bởi hệ thống khử S-nitroso-CoA bảo vệ chống lạiquả thậnvết thương. Thiên nhiên. 2019; 565: 96-100.
20. Dumesic PA, Egan DF, Gut P, et al. UORF được bảo tồn tiến hóa điều hòa PGC1 và quá trình trao đổi chất oxy hóa ở chuột, ruồi và cá ngừ vây xanh. Siêu thị di động. 2019; 30: 190-200.
21. Shyh-Chang N, Zhu H, Yvanka de Soysa T, et al. Lin28 tăng cường sửa chữa mô bằng cách lập trình lại quá trình trao đổi chất của tế bào. Tế bào. 2013; 155: 778-792.
22. Chen W, Luan J, Wei G, et al. Biểu hiện tế bào gan in vivo của interleukin -22 bằng cách sử dụng các hạt nano lai dựa trên sự thâm nhập làm phương pháp điều trị chống viêm gan tiềm năng. Vật liệu sinh học. 2018; 187: 66- 80.
23. Chen W, Zhang X, Fan J, et al. Kết nối interleukin -22 với apolipoprotein AI cải thiện chuột khỏi tổn thương gan do acetaminophen gây ra. Thần học. 2017; 7: 4135-4148.
24. Zai W, Chen W, Wu Z, et al. Phân phối gen interleukin -22 vào gan bằng polymetformin và các hạt nano lai dựa trên sự thâm nhập để điều trị bệnh gan nhiễm mỡ không do rượu. Giao diện ACS Appl Mater. 2019; 11: 4842-4857.
25. Khacho M, Harris R, Slack RS. Ti thể là cơ quan điều hòa trung tâm của số phận tế bào gốc thần kinh và chức năng nhận thức. Nat Rev Neurosci. 2019; 20: 34-48.
26. Ip WKE, Hoshi N, Shouval DS, Snapper S, Medzhitov R. Tác dụng chống viêm của IL -10 qua trung gian giao phối chương trình trao đổi chất của đại thực bào. Khoa học. 2017; 356: 513-519.
27. Saito Y, Chapple RH, Lin A, Kitano A, Nakada D. AMPK bảo vệ các tế bào khởi phát bệnh bạch cầu trong bệnh bạch cầu dòng tủy khỏi căng thẳng chuyển hóa trong tủy xương. Tế bào gốc Tế bào. 2015; 17: 585- 596.
28. Mihaylova MM, Shaw RJ. Con đường tín hiệu AMPK điều phối sự phát triển của tế bào, quá trình tự động và sự trao đổi chất. Nat Cell Biol. 2011; 13: 1016-1023.
29. Li FL, Liu JP, Bao RX, et al. Quá trình acetyl hóa tích tụ PFKFB3 trong tế bào chất để thúc đẩy quá trình đường phân và bảo vệ tế bào khỏi quá trình apoptosis do cisplatin gây ra. Nat Commun. 2018; 9: 508.
30. De Bock K, Georgiadou M, Schoors S, et al. Vai trò của PFKFB 3- thúc đẩy quá trình đường phân trong quá trình nảy mầm của mạch. Tế bào. 2013; 154: 651-663.
31. Dudakov JA, Hanash AM, van den Brink MR. Interleukin -22: sinh học miễn dịch và bệnh học. Annu Rev Immunol. 2015; 33: 747- 785.
32. Wang S, Li Y, Fan J, et al. Interleukin -22 cải thiện tình trạng tổn thương và xơ hóa thận trong bệnh thận do đái tháo đường thông qua việc ức chế kích hoạt bệnh viêm NLRP3. Cell Death Dis. 2017; 8: e2937.
33. Shen YL, Chen W, Han L, et al. Kháng thể VEGF-B và protein dung hợp interleukin -22 cải thiện bệnh thận do tiểu đường thông qua việc ức chế sự tích tụ lipid và các phản ứng viêm. Acta Pharm Sin B. 2020. https://doi.org/10.1016/j. apsb.2020.07.002.
34. Ouyang W, O'Garra A. IL -10 cytokines họ IL -10 và IL -22: từ khoa học cơ bản đến dịch thuật lâm sàng. Miễn dịch. 2019; 50: 871- 891.
35. Xiang X, Feng D, Hwang S, và cộng sự. Interleukin -22 cải thiện tình trạng suy gan cấp tính-mãn tính bằng cách lập trình lại các con đường tái tạo bị suy giảm ở chuột. J Hepatol. Năm 2020; 72: 736-745.
36. Chen W, Zai W, Fan J, et al. Interleukin -22 thúc đẩy quá trình tái lập trình thích ứng trao đổi chất để duy trì trạng thái hoạt động của ty thể và điều trị chấn thương gan. Thần học. Năm 2020; 10: 5879-5894.
37. Peng H, Wang Q, Lou T, et al. Sự xuyên âm cơ-thận qua trung gian myokine ngăn chặn quá trình tái lập trình trao đổi chất và xơ hóa ở thận bị tổn thương. Nat Commun. 2017; 8: 1493.
38. Saberi B, Ybanez MD, Johnson HS, Gaarde WA, Han D, Kaplowitz N. Protein kinase c (PKC) tham gia vào quá trình thải độc gan acetaminophen thông qua con đường tín hiệu c-jun-n-terminal kinase (jnk)-phụ thuộc và-phụ thuộc. Khoa gan mật. 2014; 59: 1543-1554.
39. Mo R, Lai R, Lu J, et al. Chế độ autophagy nâng cao góp phần vào tác dụng bảo vệ IL -22 chống lại tổn thương gan do acetaminophen gây ra. Thần học. 2018; 8: 4170-4180.
40. Wegrzyn J, Potla R, Chwae YJ, et al. Chức năng của Stat3 ti thể trong hô hấp tế bào. Khoa học. 2009; 323: 793-797.
41. Chen W, Hu Y, Ju D. Liệu pháp gen cho các rối loạn thoái hóa thần kinh: những tiến bộ, hiểu biết sâu sắc và triển vọng. Acta Pharm Sin B. 2020; 10: 1347-1359.
42. Cao Y, Zhang X, Wang L, et al. PFKFB 3- đường phân nội mô qua trung gian thúc đẩy tăng áp động mạch phổi. Proc Natl Acad Sci Hoa Kỳ. 2019; 116: 13394-13403.
43. Doménech E, Maestre C, Esteban-Martínez L, et al. AMPK, và PFKFB3 làm trung gian cho quá trình đường phân và sự sống sót để đáp ứng với mitophagy trong quá trình bắt giữ nguyên phân. Nat Cell Biol. 2015; 17: 1304- 1316.


