Mối liên kết động giữa các vị trí tích hợp Provirus và đặc tính bộ gen chức năng của vật chủ cùng với các trường hợp nhiễm HIV-1 liên quan đến liệu pháp kháng vi-rút
Dec 19, 2023
Trừu tượng:
(1. Bối cảnh:Ổ chứa tiềm ẩn HIV-1 chứa các provirus có khả năng sao chép là rào cản lớn trong việc tìm kiếm phương pháp chữa khỏi bệnh nhiễm HIV-1. Nhiễm HIV-1 ở tất cả các giai đoạn tiến triển của bệnh có liên quan đến việc kích hoạt miễn dịch và rối loạn chức năng sản xuất các yếu tố hòa tan tiền viêm (cytokine và chemokine), và người ta cho rằng trong quá trình nhiễm HIV-1, các thành phần miễn dịch và hệ thống miễn dịch khác nhau sẽ lần lượt các tế bào tham gia vào các phản ứng miễn dịch, sau đó kích hoạt các con đường sinh học xuôi dòng. Tuy nhiên, sự tương tác chức năng giữa sự tích hợp HIV{5}} và sự kích hoạt các con đường sinh học của vật chủ hiện chưa được hiểu đầy đủ.
(2) Phương pháp: Trong nghiên cứu này, tôi đã sử dụng các gen được nhắm mục tiêu bởi các provirus từ các bộ dữ liệu đã xuất bản để tìm kiếm các dấu hiệu miễn dịch phong phú hơn và lưu trữ các con đường sinh học cùng với các trường hợp lây nhiễm HIV{0}} dựa trên phân tích biểu hiện quá mức MSigDb và KEGG.
(3. Kết quả: Tôi quan sát thấy rằng sự kết hợp khác nhau giữa các dấu hiệu miễn dịch của các loại tế bào miễn dịch và các yếu tố hòa tan tiền viêm xuất hiện cùng với các trường hợp nhiễm HIV{0}} liên quan đến liệu pháp kháng vi-rút. Hơn nữa, các con đường KEGG được làm giàu thường liên quan đến "các loại ung thư đặc hiệu", "hệ thống miễn dịch", "vi-rút bệnh truyền nhiễm" và "truyền tín hiệu".
(4.Kết luận: Các quan sát trong nghiên cứu này cho thấy rằng các bộ gen chứa các vị trí tích hợp provirus có thể xác định các tế bào miễn dịch cụ thể và các yếu tố hòa tan tiền viêm trong quá trình nhiễm HIV-1 liên quan đến liệu pháp kháng vi-rút.

cistanche tubulosa-cải thiện hệ thống miễn dịch
Từ khóa: virus gây suy giảm miễn dịch ở người loại 1 (HIV-1); các trang web tích hợp HIV-1; Cơ sở dữ liệu chữ ký phân tử (MSigBb); tương tác giữa virus và vật chủ; nhiễm trùng và miễn dịch
1. Giới thiệu
Nhiễm HIV-1 có quá trình phát triển bệnh năng động liên quan đến sự kết hợp của các tế bào miễn dịch, các thành phần miễn dịch và các yếu tố hạn chế tế bào khác nhau nhằm chống lại nhiễm trùng. Được biết, nhiễm HIV{1}} tạo ra rất nhiều yếu tố hòa tan tiền viêm, tuyển dụng và kích hoạt các tế bào liên quan đến miễn dịch bẩm sinh đến vị trí nhiễm HIV-1 để hạn chế sự nhân lên và lây lan của vi rút. Mặc dù các cơ chế bảo vệ này bắt đầu ở giai đoạn đầu của quá trình nhiễm HIV-1, HIV-1 vẫn cố gắng hoàn thành vòng đời của mình và hình thành các ổ chứa tiềm ẩn.
Một số gen chủ, còn được gọi là gen tích hợp tái diễn [1–3], đã được chứng minh là thường xuyên bị HIV nhắm tới-1 ở những người bị nhiễm bệnh. Tuy nhiên, cơ chế dẫn các vị trí tích hợp HIV{4}} đến các gen tích hợp tái diễn này và ý nghĩa sinh học của hiện tượng này vẫn chưa rõ ràng. Tuy nhiên, một nghiên cứu đáng chú ý đã cố gắng trả lời câu hỏi này bằng cách chỉ ra sự tương tác giữa việc lựa chọn các vị trí tích hợp HIV{5}} và các con đường chức năng được chỉ định bởi các quá trình sinh học khác nhau trong tế bào chủ [4]. Phát hiện của họ ngụ ý rằng cơ chế có thể dẫn đến sự tích hợp HIV-1 vào các gen điểm nóng có thể xảy ra ở cấp độ đặc tính bộ gen chức năng được hình thành bởi một nhóm gen chứ không phải mỗi gen.

lợi ích cistanche cho nam giới - tăng cường hệ thống miễn dịch
Nhấn vào đây để xem các sản phẩm Tăng cường miễn dịch Cistanche
【Hỏi thêm] Email:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Để tiếp tục khái niệm này, trong nghiên cứu này, tôi đã tìm kiếm bất kỳ mối liên kết chức năng nào giữa các gen nhắm mục tiêu provirus và khả năng miễn dịch của vật chủ cùng với việc lây nhiễm HIV{1}}. Tôi đã sử dụng các gen chủ được nhắm mục tiêu bởi provirus [5,6] làm danh sách gen đầu vào. Danh sách gen này bao gồm các vị trí tích hợp được lấy từ những người kiểm soát ưu tú [6] và những người nhiễm HIV-1-được điều trị bằng thuốc kháng vi-rút (ART) [5]. Đáng chú ý, các trang web tích hợp được xuất bản bởi Einkauf et al. (2022) [5] được thu thập theo chiều dọc từ những người nhiễm HIV-1-, do đó cho phép chúng tôi theo dõi quá trình phát triển của ổ chứa HIV{10}} trong giai đoạn điều trị ARV. Dựa trên phân tích biểu hiện quá mức, tôi quan sát thấy các dấu hiệu miễn dịch khác nhau được làm phong phú cùng với các trường hợp nhiễm HIV{12}} liên quan đến ART. Ngược lại, rất ít dấu hiệu miễn dịch được làm phong phú ở những người kiểm soát ưu tú. Ngoài ra, các bộ gen được làm giàu chủ yếu liên quan đến các con đường sinh học liên quan đến "các loại ung thư đặc hiệu", "hệ thống miễn dịch", "vi-rút bệnh truyền nhiễm" và "truyền tín hiệu". Cuối cùng, tôi phát hiện ra rằng các dấu hiệu miễn dịch phong phú được tạo ra bởi các gen nhắm mục tiêu provirus có liên quan đến các sản phẩm gen của HIV-1 hoặc ảnh hưởng đến sự sao chép và lây nhiễm của HIV-1. Nhìn chung, những phát hiện này có vẻ giống với khái niệm về lý thuyết mạng lưới [7–9] rằng các gen nhắm mục tiêu provirus tham gia vào các chức năng sinh học tương tự có thể hình thành một cộng đồng (tham khảo "chữ ký" trong nghiên cứu này) để đáp ứng nhu cầu về khả năng miễn dịch của vật chủ trong quá trình các giai đoạn nhiễm HIV{20}} khác nhau liên quan đến ART. Dựa trên logic này, tôi đã đề xuất một giả thuyết rằng có thể có sự tương tác động giữa các vị trí tích hợp HIV{21}} và đặc tính bộ gen chức năng của vật chủ: tần số tích hợp HIV{22}} có thể được sử dụng làm đại diện cho các bộ gen, có thể xác định các loại tế bào miễn dịch cụ thể và các yếu tố hòa tan tiền viêm trong quá trình nhiễm HIV{23}}.
2. Vật liệu và phương pháp
2.1. Thu thập và xử lý các bộ dữ liệu công cộng
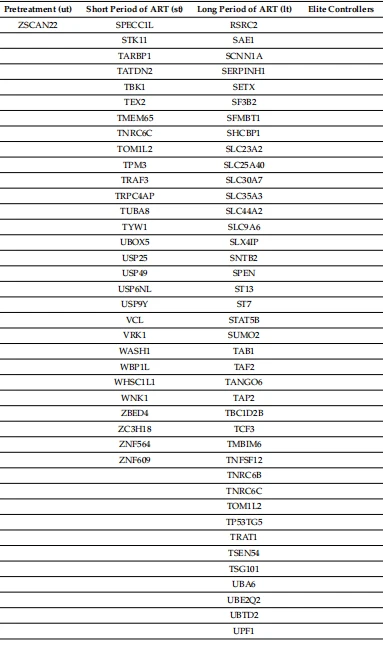
Các trang web tích hợp HIV{0}} được thu thập từ Jiang et al. (2020) [6] dành cho những người kiểm soát ưu tú và Einkauf et al. (2022) [5] dành cho những người nhiễm HIV-1-trước điều trị (virut) và bệnh nhân được điều trị ARV trong thời gian ngắn (1 năm) và thời gian dài (7,5–12 năm). Tổng cộng có 232 địa điểm tích hợp từ 64 bộ điều khiển ưu tú được Jiang và cộng sự áp dụng. (2020) [6] đã được phân tích trong nghiên cứu này. Trong số đó, 103 địa điểm đã được chèn bởi các provirus nguyên vẹn. Các trang web tích hợp được lấy từ bộ điều khiển ưu tú được phủ lên bộ gen_GENCODE_v32.bed của Con người do dự án GENCODE phát hành [10] để xác định xem liệu việc chèn từng HIV{{20} } tích hợp là gen hoặc không gen bằng cách thực thi lệnh giao với các tùy chọn mặc định được cung cấp trong bedtools [11]. Do nhiều loại provirus được quan sát thấy tích hợp vào cùng một vị trí gen, nên cuối cùng, 104 gen nhắm mục tiêu vào provirus đã được giải phóng; trong số đó, 22 gen đã được các provirus nguyên vẹn nhắm tới. Tổng cộng có 1270 gen nhắm mục tiêu provirus từ 6 bệnh nhân (P1: 468 vị trí tích hợp; P2: 149 vị trí tích hợp; P3: 128 vị trí tích hợp; P4: 94 vị trí tích hợp; P5: 305 vị trí tích hợp; P6: 125 vị trí tích hợp) được sử dụng trong Einkauf và cộng sự. (2022) [5] đã được chọn cho nghiên cứu này. Tổng cộng, 317 địa điểm tích hợp thuộc danh mục cá nhân nhiễm HIV (vi rút trong máu) trước điều trị đã tạo ra 121 gen nhắm mục tiêu provirus, 396 địa điểm tích hợp thuộc danh mục bệnh nhân phải điều trị trong thời gian ngắn (1 năm) ART mang lại 149 gen nhắm mục tiêu provirus và 557 vị trí tích hợp thuộc nhóm bệnh nhân phải điều trị ART trong thời gian dài (7,5–12 năm) mang lại 176 gen nhắm mục tiêu provirus. Trong số đó, 26 gen nhắm mục tiêu provirus nguyên vẹn được tìm thấy ở những người nhiễm HIV trước điều trị, 6 gen nhắm mục tiêu provirus nguyên vẹn được tìm thấy ở những bệnh nhân được điều trị ARV trong thời gian ngắn và 14 gen nhắm mục tiêu provirus nguyên vẹn được tìm thấy ở bệnh nhân phải trải qua một thời gian dài điều trị ART. Danh sách các gen đầu vào được sử dụng để phân tích được trình bày trong Bảng 1; các gen được nhắm mục tiêu bởi các provirus nguyên vẹn được tóm tắt trong Bảng S26.
Bảng 1. Danh sách gen đầu vào.

Bảng 1. Tiếp

Bảng 1. Tiếp theo

Bảng 1. Tiếp theo
Bảng 1. Tiếp theo

2.2. Phân tích dữ liệu và tin sinh học
2.2.1. Phân tích đại diện quá mức MsigDb
Chữ ký miễn dịch phong phú được tính toán bằng cách sử dụng gói R clusterProfiler (Phiên bản 4.4.1) [12,13] với bộ làm giàu chức năng và các tùy chọn mặc định. Phân tích biểu hiện quá mức [14] được thực hiện bằng cách sử dụng bộ gen chữ ký miễn dịch C7 được quản lý trong Cơ sở dữ liệu chữ ký phân tử (MsigDb) [15–17] làm tài liệu tham khảo. Chỉ những dấu hiệu miễn dịch được làm giàu với giá trị p (được điều chỉnh bằng phương pháp Stewamini–Hochberg) nhỏ hơn 0.05 mới được chọn. Tất cả các kết quả phân tích đại diện quá mức được tạo ra trong nghiên cứu này đều được quản lý trong Tài liệu bổ sung. Các hệ số giàu [13] đã được tính toán thêm để biểu thị điểm làm giàu cho mọi dấu hiệu miễn dịch được làm giàu (Hình 1c) bằng cách chia GeneRatio cho BgRatio bằng các dòng lệnh được mô tả bên dưới.
>MsigDb_đầu ra_file$GeneRatio<-as. numeric(gsub("(\\d+)/(\\d+)", "\\1", MsigDb_output_file$GeneRatio, perl = T))/as.numeric(gsub("(\\d+)/(\\d+)", "\\2", MsigDb_output_file$GeneRatio, perl = T)) # Convert GeneRatio to numerical variables. >MsigDb_đầu ra_file$BgRatio<-as.numeric(gsub("(\\d+)/(\\d+)", "\\1", MsigDb_output_file$BgRatio, perl = T))/as. numeric(gsub("(\\d+)/(\\d+)", "\\2", MsigDb_output_file$BgRatio, perl = T)) # Convert BgRatio to numerical variables. >Tệp MsigDb_đầu ra_<-MsigDb_output_file %>% dplyr::mutate(rich_factor=GeneRatio/BgRatio) # Tính toán hệ số giàu.
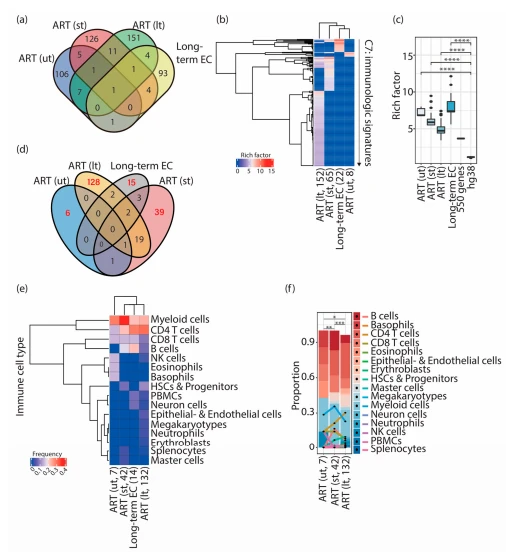
Hình 1. Các dấu hiệu miễn dịch riêng biệt đã được cải thiện ở những người-1-bị nhiễm HIV và những người kiểm soát ưu tú. (a) Sơ đồ Venn thể hiện sự chồng chéo của các gen đầu vào ở những cá nhân-1- bị nhiễm HIV và những người kiểm soát ưu tú. Các gen được chia sẻ giữa các nhóm gen đầu vào khác nhau được liệt kê trong Bảng S27. (b) Sơ đồ nhiệt cụm biểu thị các dấu hiệu miễn dịch được làm phong phú ở những cá nhân-1-bị nhiễm HIV và những người kiểm soát ưu tú. Dấu ngoặc đơn đặt dưới cột cho biết trạng thái điều trị ARV ("lt" chỉ những người nhiễm HIV-1-được điều trị ARV trong thời gian dài; "st" chỉ những người nhiễm HIV-1-được điều trị trong thời gian ngắn của ART; "ut" dùng để chỉ những người nhiễm HIV-1-trước điều trị) theo sau là số lượng dấu hiệu miễn dịch được làm giàu. Thang màu thể hiện mức độ phong phú được thể hiện bằng các yếu tố phong phú. ( c ) Các sơ đồ hình hộp thể hiện sự phong phú của các dấu hiệu miễn dịch được thể hiện bằng các yếu tố phong phú. Các lệnh được thực hiện để tính toán hệ số phong phú được mô tả trong Tài liệu và Phương pháp. Ý nghĩa thống kê được tính toán bằng thử nghiệm Wilcoxon trong R với các tùy chọn mặc định. (d) Biểu đồ Venn thể hiện sự chồng chéo của các dấu hiệu miễn dịch được làm giàu ở những người nhiễm HIV-1-và những người kiểm soát ưu tú. Các con số màu đỏ biểu thị số lượng dấu hiệu miễn dịch được làm giàu duy nhất. (e) Sơ đồ nhiệt cụm biểu thị tần số của các loại tế bào miễn dịch hiện diện trong các dấu hiệu miễn dịch được làm giàu độc đáo ở những người nhiễm HIV-1-và những người kiểm soát ưu tú. Dấu ngoặc đơn đặt dưới cột cho biết số lượng loại tế bào miễn dịch được tính trong các dấu hiệu miễn dịch được làm giàu. (f) Biểu đồ thanh xếp chồng biểu thị tỷ lệ thành phần khác nhau của các loại tế bào miễn dịch ở những người nhiễm HIV{{10}}trước điều trị và bệnh nhân được điều trị ARV. Dấu ngoặc đơn đặt dưới cột cho biết số lượng loại tế bào miễn dịch được tính trong các dấu hiệu miễn dịch được làm giàu. Ý nghĩa thống kê được tính toán bằng phép kiểm tra chi bình phương của Pearson trong R với các tùy chọn mặc định, * p Nhỏ hơn hoặc bằng 0.05, ** p Nhỏ hơn hoặc bằng 0. 01, *** p Nhỏ hơn hoặc bằng 0,001, **** p Nhỏ hơn hoặc bằng 0,0001. NGHỆ THUẬT; Điều trị kháng retrovirus. EC; những người kiểm soát ưu tú. HSC; Tế bào gốc tạo huyết. tế bào NK; là những tế bào tiêu diệt tự nhiên. PBMC; tế bào đơn nhân máu ngoại vi.
Đáng chú ý, sau khi thực hiện phân tích đại diện quá mức MsigDB, các thuật ngữ về loại tế bào miễn dịch và các yếu tố hòa tan tiền viêm thể hiện trong tên tiêu chuẩn của các dấu hiệu miễn dịch được làm giàu đã được thu thập để tính toán thống kê thêm. Dựa trên biểu đồ Dòng tế bào máu được công bố trong Mô-đun đào tạo SEER của trang web NIH (https://training.seer.cancer.gov/leukemia/anatomy/lineage.html (truy cập vào ngày 10 tháng 9 năm 2022)), các loại tế bào miễn dịch được phân loại thành 16 nhóm, cụ thể là (1) tế bào B, bao gồm tế bào plasma, (2) bạch cầu ưa kiềm, (3) tế bào T CD4, (4) tế bào T CD8, (5) bạch cầu ái toan, (6) tế bào biểu mô và nội mô, (7) nguyên hồng cầu, (8) tế bào gốc tạo máu (HSC) và tế bào tiền thân, (9) tế bào chủ, (10) tế bào megakaryocytes, (11) tế bào tủy, (12) tế bào thần kinh, bao gồm microglia, (13) bạch cầu trung tính, (14) Kẻ giết người tự nhiên (NK), (15) tế bào đơn nhân máu ngoại vi (PBMC) và (16) tế bào lách. Nhóm (8) tế bào gốc tạo máu (HSC) và tế bào tiền thân bao gồm tế bào gốc và tế bào tuyến ức; nhóm (11) tế bào tủy bao gồm tế bào đuôi gai có nguồn gốc từ tủy xương, đại thực bào có nguồn gốc từ tủy xương, tế bào đuôi gai, đại thực bào có nguồn gốc từ bạch cầu đơn nhân và đại thực bào. Tỷ lệ phần trăm hoặc mức độ phong phú của dấu hiệu của các loại tế bào miễn dịch và các yếu tố hòa tan tiền viêm từ tổng số dấu hiệu miễn dịch được làm giàu được biểu diễn dưới dạng bản đồ nhiệt cụm được tạo bằng gói R ComplexHeatmap [18] với các tùy chọn mặc định. Tất cả các sơ đồ được trình bày trong bản thảo này được tạo trong R với các tùy chọn mặc định.
Để có được các dấu hiệu miễn dịch được làm phong phú bằng các gen được chọn ngẫu nhiên và toàn bộ bộ gen, các gen mã hóa protein ở người đã được lấy từ bộ gen_gen_GENCODE _v32 của Người. giường do dự án GENCODE phát hành [10] và mẫu lệnh R_n() (có thay thế) đã được thực thi để chọn ngẫu nhiên 150, 250, 350, 450, 550, 650 và 1000 gen người hoặc tất cả các gen mã hóa protein đã được sử dụng để thực hiện phân tích biểu hiện quá mức MSigDb được mô tả ở trên.

cistanche thực vật tăng cường hệ thống miễn dịch
2.2.2. Phân tích đại diện quá mức của con đường KEGG
Đường dẫn KEGG phong phú được tính toán bằng cách tiến hành đường dẫn KEGG qua phân tích biểu diễn bằng cách sử dụng gói R clusterProfiler [12] với ngưỡng cắt giá trị p bằng 0.5. Dựa trên hệ thống phân cấp KEGG BRITE được ghi lại tại https://www.genome. jp/kegg/brite.html, được truy cập vào ngày 2 tháng 10 năm 2022, mọi lộ trình được làm giàu đều được chỉ định cho phân loại KEGG BRITE tương ứng của nó để tạo ra các sơ đồ trong Hình 2b–d. Đáng chú ý, để tạo Hình 2c, các đường dẫn KEGG được làm phong phú được tìm thấy trong tất cả các yếu tố nhóm III (được gọi là "Đã chia sẻ" trong bảng hình) trước tiên được tách ra khỏi các đường dẫn chỉ có trong các yếu tố nhóm III riêng lẻ, và sau đó là bản đồ nhiệt cụm đã được tạo.

Hình 2. Các thành phần khác nhau của dấu hiệu yếu tố hòa tan tiền viêm đã xuất hiện cùng với các trường hợp nhiễm HIV{1}} liên quan đến điều trị ARV. (a) Sơ đồ nhiệt cụm thể hiện sự phong phú của các yếu tố hòa tan tiền viêm hiện diện trong các dấu hiệu miễn dịch đặc biệt được làm giàu ở những người nhiễm HIV-1-và những người kiểm soát ưu tú. Dấu ngoặc đơn đặt dưới cột biểu thị số lượng yếu tố hòa tan tiền viêm từ tổng số chữ ký. (b) Sơ đồ nhiệt cụm thể hiện sự phong phú của từng phân loại KEGG BRITE chứa đựng các con đường phong phú liên quan đến các yếu tố nhóm II ở những người nhiễm HIV-1- sau một khoảng thời gian ngắn (st) và (lt) dài điều trị ART. (c) Sơ đồ nhiệt cụm biểu thị sự phong phú của từng phân loại KEGG BRITE chứa đựng các con đường phong phú liên quan đến các yếu tố nhóm III ở những người nhiễm HIV-1-sau một thời gian dài điều trị ARV. Các đường dẫn được làm giàu được tìm thấy trong tất cả các yếu tố nhóm III (còn gọi là "hsaID được chia sẻ") được tách ra khỏi các đường dẫn được làm giàu khác dành riêng cho các yếu tố nhóm III riêng lẻ để tạo bản đồ nhiệt cụm. ( d ) Biểu đồ Venn cho thấy sự chồng chéo của các con đường KEGG được làm giàu được biểu thị bằng hsaID giữa các yếu tố nhóm II và nhóm III. ( e ) Sơ đồ nhiệt cụm biểu thị tần suất phân loại KEGG BRITE chứa đựng các con đường phong phú giữa các yếu tố nhóm II và nhóm III. NGHỆ THUẬT; Điều trị kháng retrovirus. EC; những người kiểm soát ưu tú. "hsaID"; ID Homo sapiens (con người).
2.2.3. Xác định các gen nhắm mục tiêu Provirus tương tác với HIV-1
Cơ sở dữ liệu tương tác giữa con người với HIV-1 (https://www.ncbi.nlm.nih.gov/genome/virus/retroviruses/HIV-1/interactions/, được truy cập vào ngày 30 tháng 10 năm 2022) đã được sử dụng để xác minh xem các gen nhắm mục tiêu provirus có tương tác với HIV-1 hay không. Cơ sở dữ liệu này ghi lại tất cả các tương tác đã biết giữa HIV{6}} và gen người đã được báo cáo là ảnh hưởng đến sự sao chép và khả năng lây nhiễm của HIV-1 cũng như sự tương tác giữa các sản phẩm gen HIV-1 và protein của tế bào chủ, hoặc protein từ các sinh vật gây bệnh liên quan đến HIV-1/AIDS [19–21].
2.2.4. Số liệu thống kê
Tất cả các bài kiểm tra thống kê được thực hiện trong R với các tùy chọn mặc định. Thông tin chi tiết được cung cấp khi thích hợp trong văn bản chính.
3. Kết quả
3.1. Các dấu hiệu miễn dịch khác nhau đã được làm phong phú cùng với các ca nhiễm HIV-1 liên quan đến điều trị ARV
Tổng cộng, 121, 149 và 176 gen từ những người nhiễm HIV-1-trước điều trị (ut), những người nhiễm HIV-1- phải điều trị ARV trong thời gian ngắn (st) và những người phải điều trị trong thời gian dài của ART (lt) [5], và 104 gen từ bộ điều khiển ưu tú [6] (Bảng 1) đã được sử dụng để thực hiện phân tích biểu hiện quá mức. Một số gen đầu vào được chia sẻ giữa các bộ điều khiển ut, st, lt và Elite (Hình 1a và Bảng S27). Tổng cộng, 8 (Bảng S1), 65 (Bảng S2), 152 (Bảng S3) và 22 (Bảng S4) dấu hiệu miễn dịch đã được làm phong phú ở những người nhiễm HIV{20}}trước điều trị, những người nhiễm HIV{21}} tương ứng là những người phải điều trị ART trong thời gian ngắn, những người phải điều trị ART trong thời gian dài và những người kiểm soát ưu tú (Hình 1b). Điều cần thiết là phải nhấn mạnh rằng do thiếu dữ liệu biểu thức tương ứng với các vị trí tích hợp được sử dụng trong công việc này, do đó tôi đã tính toán các hệ số giàu [13] (xem Vật liệu và Phương pháp), thay vì điểm làm giàu ròng, để biểu thị cường độ làm giàu. Tôi đã sử dụng 150, 250, 350, 450, 550, 650 và 1000 gen được chọn ngẫu nhiên (dữ liệu không được hiển thị) và toàn bộ bộ gen làm đối chứng trong phân tích đại diện quá mức để xác thực tầm quan trọng của điểm số của yếu tố phong phú (Hình 1c ). Không có dấu hiệu miễn dịch nào được làm phong phú bằng cách sử dụng 150, 250, 350, 450, 650 và 1000 gen (dữ liệu không được hiển thị) và một dấu hiệu miễn dịch được làm phong phú bằng cách sử dụng 550 gen được chọn ngẫu nhiên (yếu tố phong phú: 3.681). Mặc dù 4872 dấu hiệu miễn dịch đã được làm phong phú bằng cách sử dụng toàn bộ bộ gen (yếu tố giàu: trung vị, 1,162; trung bình, 1,154), các yếu tố giàu được đo lường ở những người nhiễm HIV{47}}(cả trước điều trị và nhận ART) và ở nhóm đối chứng ưu tú cho thấy tầm quan trọng so với các điều khiển (Hình 1c, các điều khiển: 550 gen và hg38 được dán nhãn trong bảng hình), cho thấy các dấu hiệu miễn dịch được phát hiện trong nghiên cứu này đã được làm phong phú đáng kể.
3.2. Sự kết hợp khác nhau của các dấu hiệu tế bào miễn dịch đã được quan sát thấy cùng với các ca nhiễm HIV-1 liên quan đến điều trị ARV
Cùng với phát hiện rằng các gen nhắm mục tiêu provirus làm phong phú thêm các dấu hiệu miễn dịch cụ thể cùng với các trường hợp nhiễm HIV{1}} liên quan đến ART, tôi liên tục điều tra xem liệu các dấu hiệu được làm giàu này có thể chỉ định các loại tế bào miễn dịch cụ thể và các yếu tố hòa tan tiền viêm được nêu trong nghiên cứu hay không. giả thuyết của tác phẩm này Tôi đã truy xuất các dấu hiệu miễn dịch được làm phong phú độc đáo ở những người nhiễm HIV-1-trước điều trị (ut, 6 chữ ký, 75%), những người nhiễm HIV-1-được điều trị ARV trong một thời gian ngắn (st, 39 chữ ký, 60%) , những người nhiễm HIV-1-phải điều trị ARV trong thời gian dài (lt, 128 chữ ký, 84%) và những người kiểm soát ưu tú (15 chữ ký, 68%) (Hình 1d). Từ chúng, tôi lần lượt đếm sự xuất hiện của tên các loại tế bào miễn dịch trong tên tiêu chuẩn của các dấu hiệu miễn dịch được làm giàu (Hình 1e, f). Tôi còn phân loại thêm các loại tế bào miễn dịch thành 16 nhóm dựa trên biểu đồ Dòng tế bào máu được xuất bản trong Mô-đun đào tạo SEER của trang web NIH (các loại tế bào phụ trong mỗi loại tế bào được mô tả trong Vật liệu và Phương pháp). Điều quan trọng cần lưu ý là ART làm gián đoạn quá trình phát triển của HIV{17}}/AIDS; thành phần của các loại tế bào miễn dịch quan sát được ở đây là trong tình trạng nhiễm HIV{18}} sinh lý liên quan đến ART. Đầu tiên, người ta đã tìm thấy ngày càng nhiều loại tế bào miễn dịch ở những người nhiễm HIV{19}}được điều trị ARV trong thời gian dài (lt, 132 thuật ngữ tế bào miễn dịch) (Hình 1e,f); trong đó, tế bào T CD4 (tìm thấy 40 lần, 30,3%) có tần suất cao nhất, tiếp theo là tế bào tủy (tìm thấy 35 lần, 26,5%) (Hình 1e,f). Thành phần dấu hiệu tế bào miễn dịch này cho thấy sự khác biệt giữa những người nhiễm HIV trước điều trị-1-(ut, tìm thấy 7 lần) và bệnh nhân được điều trị ARV trong thời gian ngắn (st, tìm thấy 42 lần) (Hình 1e,f, Pearson's chi -kiểm tra hình vuông). Thành phần dấu hiệu tế bào miễn dịch ở những người kiểm soát ưu tú (được tìm thấy 14 lần) là duy nhất ở những người nhiễm HIV-1-trước điều trị và bệnh nhân được điều trị bằng ART (Hình 1e). Đáng chú ý, tỷ lệ của nhóm "tế bào B" ở nhóm kiểm soát ưu tú cao hơn nhiều so với bệnh nhân được điều trị bằng ART (được tìm thấy 3 lần, 21,4%) (Hình 1e); trong khi đó, ở những bệnh nhân được điều trị bằng ART, kết quả cho thấy số người nhiễm HIV phải điều trị ARV trong thời gian ngắn (7 lần, 16,7%) và điều trị ARV trong thời gian dài (9 lần, 6,8%) giảm (Hình 1e ,f). Nhóm "tế bào B" không được tìm thấy trong các dấu hiệu miễn dịch được làm giàu đặc biệt ở những người nhiễm HIV{53}}trước điều trị (Hình 1e,f). Tế bào T CD4, loại tế bào ổ chứa HIV{56}} chính, cho thấy sự gia tăng tỷ lệ của chúng cùng với các trường hợp nhiễm HIV-1 liên quan đến điều trị ARV (ut, được tìm thấy 1 lần, 14,3%; st, được tìm thấy 9 lần, 21,4 %; lt, được tìm thấy 40 lần, 30,3%). Tuy nhiên, sự hồi quy về sự hiện diện của tế bào T CD8 (ut, tìm thấy 1 lần, 14,3%; st, tìm thấy 6 lần, 14,3%; lt, tìm thấy 11 lần, 8,3%) đã được quan sát thấy sau một thời gian dài điều trị ARV (Hình 1e, f). Tỷ lệ dấu hiệu tế bào tủy đạt đỉnh cao nhất được tìm thấy ở những người nhiễm HIV{78}}được điều trị ARV trong thời gian ngắn (được tìm thấy 15 lần, 35,7%). Ngoài ra, tỷ lệ tế bào tủy giữa những người nhiễm HIV-1-trước điều trị (được tìm thấy 2 lần, 28,6%) và bệnh nhân được điều trị ARV trong thời gian dài (được tìm thấy 35 lần, 26,5%) là tương đương nhau (Hình 1f). Điều thú vị là sự hiện diện của dấu hiệu tế bào NK đã được quan sát thấy ở những người nhiễm HIV-1-trước điều trị (tìm thấy 1 thuật ngữ, 14,3%) và những người nhiễm HIV-1-được điều trị ARV trong thời gian dài (tìm thấy 4 lần, 3%) (Hình 1f). Nói chung, những phát hiện này cho thấy rằng các tổ hợp tế bào miễn dịch khác nhau với số lượng ngày càng đa dạng đã xuất hiện cùng với các ca nhiễm HIV{98}} khi điều trị bằng ART.
3.3. Sự kết hợp khác nhau của các dấu hiệu yếu tố hòa tan tiền viêm đã được quan sát thấy cùng với các ca nhiễm HIV-1 liên quan đến điều trị ARV
Để tiếp tục logic trước đó, tôi cũng đếm sự xuất hiện của tên các yếu tố hòa tan tiền viêm, bao gồm cytokine và chemokine, trong mỗi dấu hiệu miễn dịch được làm giàu duy nhất (Hình 2a), và thấy rằng 1, 8, 33 và 6 dấu hiệu miễn dịch duy nhất. chữ ký chứa tên của các yếu tố hòa tan tiền viêm ở những người nhiễm HIV-1-trước điều trị, những người nhiễm HIV-1-được điều trị ARV trong thời gian ngắn, những người được điều trị ARV trong thời gian dài và những người kiểm soát ưu tú, tương ứng ( Hình 2a). Tôi đã nhóm thêm các yếu tố hòa tan tiền viêm này dựa trên sự xuất hiện của chúng ở những người nhiễm HIV-1-: các yếu tố nhóm I, bao gồm IL4 và IL12, đã có mặt ở những người nhiễm HIV{11}}trước điều trị và trong toàn bộ quá trình lây nhiễm (Hình 2a); các yếu tố nhóm II, bao gồm CXCR5, IFNG, IFNB, IL10 và TGFB, đều xuất hiện ở những người nhiễm HIV{15}}được điều trị ARV bất kể thời kỳ (Hình 2a); và các yếu tố nhóm III gồm CXCL4, IFNA, IL1, IL2, IL6, IL7, IL15, IL18, TNF chỉ xuất hiện sau một thời gian dài điều trị ARV (Hình 2a). Để nghiên cứu sâu hơn về từng nhóm yếu tố hòa tan tiền viêm, tôi đã tìm kiếm các con đường KEGG được làm giàu bằng các gen lấy được từ các dấu hiệu miễn dịch được làm giàu độc đáo với các yếu tố hòa tan tiền viêm tương ứng (Hình 2b, c). Không quan sát thấy sự phân tách rõ ràng giữa các con đường KEGG được làm giàu liên quan đến các yếu tố nhóm II giữa những người nhiễm HIV{26}}được điều trị ARV trong thời gian ngắn và dài (Hình 2b), ngụ ý rằng việc làm giàu các con đường này không liên quan đến giai đoạn điều trị ARV liệu pháp. Tuy nhiên, các con đường phong phú ở "các loại ung thư cụ thể" thường liên quan đến IFNB (lt), CXCR5 (st) và IFNG (lt); các con đường phong phú trong "truyền tín hiệu" và "hệ thống miễn dịch" có liên quan nhiều hơn đến IL10 (st) và IFNB (st); các con đường được làm giàu trong "vi-rút bệnh truyền nhiễm" có liên quan nhiều hơn đến CXCR5 (st) (Hình 2b). Đối với các yếu tố nhóm III, các con đường "truyền tín hiệu", "hệ thống miễn dịch" và "vi-rút bệnh truyền nhiễm" phổ biến đối với mọi yếu tố hòa tan tiền viêm trong nhóm này (Hình 2c, cột đầu tiên từ bên trái). Các con đường trong "vận chuyển màng" (hsaID uniq. IL12), "sinh tổng hợp và chuyển hóa glycan" (hsaID uniq. IL17), "phân tử tín hiệu và tương tác" (hsaID uniq. IL1), "chuyển hóa carbohydrate" (hsaID uniq. CXCL4), "sao chép và sửa chữa" (hsaID uniq. CXCL4) và "bệnh nội tiết và chuyển hóa" (hsaID uniq. CXCL4) trở nên đặc hiệu đối với các yếu tố hòa tan tiền viêm được chỉ định (Hình 2c). Khi tôi so sánh các con đường KEGG được làm giàu giữa các yếu tố nhóm II và nhóm III, hơn một nửa (61 con đường) của các con đường là phổ biến (Hình 2d). Trong số đó, "vi-rút bệnh truyền nhiễm", "hệ thống miễn dịch" và "truyền tín hiệu" là ba phân loại KEGG BRITE hàng đầu được chia sẻ trong cả hai nhóm yếu tố (Hình 2e). Các con đường phong phú trong phân loại "các loại ung thư cụ thể" chỉ được tìm thấy ở các yếu tố nhóm II (Hình 2e). Nói chung, những phát hiện này cho thấy rằng sự kết hợp khác nhau của các yếu tố hòa tan tiền viêm đã tham gia vào quá trình miễn dịch cùng với các trường hợp nhiễm HIV{46}} liên quan đến ART.

lợi ích cistanche-tăng cường hệ thống miễn dịch
Để xác minh xem liệu các con đường được làm giàu thêm liên quan đến "các loại ung thư đặc hiệu", "hệ thống miễn dịch", "truyền tín hiệu" và "vi-rút bệnh truyền nhiễm" có thực sự cần thiết trong quá trình nhiễm HIV-1 hay không, tôi đã loại bỏ tất cả các gen có trong bốn gen này Phân loại KEGG BRITE từ danh sách gen đầu vào (Bảng 1) và lặp lại phân tích biểu diễn quá mức được thực hiện trong Hình 1b. Đầu tiên, tôi quan sát thấy rằng phần lớn các gen có trong "loại ung thư", "hệ thống miễn dịch" và "vi-rút bệnh truyền nhiễm" là phổ biến, trong khi các gen có trong "truyền tín hiệu" dường như khác biệt với ba phân loại còn lại. (Hình 3a). Điều thú vị là các gen có trong bốn phân loại KEGG BRITE này chỉ dành cho những người nhiễm HIV-1-được điều trị ARV và đặc trưng cho các giai đoạn điều trị khác nhau (Hình 3), ngoại trừ các gen rapgfe2 và ppp3cc. Gen rapgfe2 được quan sát thấy trong suốt thời gian nhiễm HIV{12}} (Hình 3e) và ppp3cc xuất hiện sau khi bệnh nhân được điều trị ARV (Hình 3c–e). Gen cyth1 được tìm thấy ở những người nhiễm HIV{17}}trước điều trị và những bệnh nhân được điều trị ARV trong thời gian dài; liệu sự vắng mặt của cyth1 ở những người nhiễm HIV{19}}được điều trị ARV trong thời gian ngắn (Hình 3e) là do lý do kỹ thuật hay có liên quan đến mặt sinh học thì cần phải điều tra thêm. Hơn nữa, số lượng dấu hiệu miễn dịch được làm giàu có ý nghĩa nhỏ đã giảm đi khi các gen trong bốn phân loại KEGG BRITE này và đã bị rút (Hình 3f, g) (Bảng S5, S12). Ngoài ra, ở những người nhiễm HIV{24}}được điều trị ARV trong thời gian dài, một số dấu hiệu của yếu tố hòa tan tiền viêm (IL4, IL6, IL7, IL15, IFNG) hiếm khi xuất hiện (Hình 3h), đặc biệt là khi các gen liên quan đến " truyền tín hiệu” đã bị loại bỏ (Hình 3h, cột 5). Một cách nhất quán, mô hình tương tự cũng xuất hiện trong biểu đồ tương quan (Hình 3j). Tuy nhiên, chữ ký liên quan đến IL3, IL12 và IL18 không bị ảnh hưởng (Hình 3h). Các chữ ký khác dường như là ngẫu nhiên (IFNA) hoặc bị ảnh hưởng đôi chút (CXCL4, CXCR5, IFNB, IL1, IL2, IL10, IL35, TGFB) khi các gen trong các phân loại KEGG BRITE khác nhau bị rút (Hình 3h, cột 1–5). Tác động của các gen lấy được từ những người nhiễm HIV{46}}được điều trị ARV trong thời gian ngắn là rất nhỏ (Hình 3h), do đó gây ra sự phân tách rõ ràng giữa hai cụm chính giữa thời gian điều trị ARV ngắn và dài (Hình 3h). Tuy nhiên, mối tương quan giảm đi vẫn được quan sát thấy ở những người nhiễm HIV{49}}được điều trị ARV trong thời gian ngắn khi các gen trong "hệ thống miễn dịch" bị lấy đi (Hình 3i).
 ="" 0.05,="" **="" p="" ≤="" 0.01,="" ****="" p="" ≤="" 0.0001.="" art;="" antiretroviral="" therapy.="" ec;="" elite="" controllers.="" hiv="" is;="" hiv="" integration="" sites.="" alt="Figure 3. Impact of enriched KEGG pathways involved in " cancer-specific="" types",="" "immune="" system",="" "signal="" transduction",="" and="" "infectious="" disease="" viral"="" in="" hiv-1-infected="" individuals="" subjected="" to="" art.="" (a)="" venn="" diagram="" representing="" the="" overlap="" of="" the="" genes="" present="" in="" enriched="" kegg="" pathways="" involved="" in="" the="" four="" kegg="" brite="" classifications.="" (b–e)="" cluster="" heatmap="" representing="" the="" presence="" of="" the="" genes="" in="" enriched="" kegg="" pathways="" related="" to="" "cancer-specific="" types"="" (b),="" "immune="" system"="" (c),="" "infectious="" disease="" viral"="" (d),="" and="" "signal="" transduction"="" (e)="" in="" hiv-1-infected="" individuals="" before="" art="" (ut)="" and="" after="" a="" short="" (st)="" or="" a="" long="" period="" (lt)="" of="" art,="" and="" in="" elite="" controllers.="" (f)="" numbers="" of="" immunologic="" signatures="" enriched="" by="" either="" a="" complete="" list="" of="" input="" genes="" (all="" genes)="" or="" a="" gene="" list="" with="" the="" removal="" of="" the="" genes="" in="" the="" four="" kegg="" brite="" classifications="" in="" hiv-1-infected="" individuals="" after="" a="" short="" (st)="" or="" a="" long="" period="" (lt)="" of="" art.="" (g)="" violin="" plots="" representing="" the="" distribution="" of="" adjusted="" p-values="" corresponding="" to="" immunologic="" signatures="" enriched="" by="" either="" a="" complete="" list="" of="" the="" genes="" (all="" genes)="" or="" a="" gene="" list="" with="" the="" removal="" of="" the="" genes="" in="" the="" four="" kegg="" brite="" classifications.="" statistical="" significance="" was="" calculated="" using="" the="" wilcoxon="" test="" in="" r="" with="" default="" options.="" (h)="" cluster="" heatmap="" representing="" the="" abundance="" of="" proinflammatory="" soluble="" factor="" signatures="" enriched="" by="" either="" a="" complete="" list="" of="" the="" genes="" (all="" genes,="" column="" 1="" and="" column="" 6)="" or="" a="" gene="" list="" with="" the="" removal="" of="" the="" genes="" in="" the="" four="" kegg="" brite="" classifications="" in="" hiv-1-infected="" individuals="" after="" a="" short="" (st,="" columns="" 7–10)="" or="" a="" long="" period="" (lt,="" columns="" 2–5)="" of="" art.="" (i,j)="" correlation="" plots="" representing="" the="" pearson="" correlation="" calculated="" based="" on="" the="" abundance="" of="" proinflammatory="" soluble="" factors="" in="" hiv-1-infected="" individuals="" after="" a="" short="" (i)="" or="" a="" long="" period="" (j)="" of="" art.="" ns="" >="" 0.05,="" **="" p="" ≤="" 0.01,="" ****="" p="" ≤="" 0.0001.="" art;="" antiretroviral="" therapy.="" ec;="" elite="" controllers.="" hiv="" is;="" hiv="" integration="" sites.="" width="495" height="656" border="0" vspace="0" style="width: 495px; height: 656px;">
Hình 3. Tác động của con đường KEGG được làm giàu liên quan đến "các loại ung thư đặc hiệu", "hệ thống miễn dịch", "truyền tín hiệu" và "vi-rút bệnh truyền nhiễm" ở những người nhiễm HIV{2}}được điều trị ART. ( a ) Biểu đồ Venn biểu thị sự chồng chéo của các gen có trong con đường KEGG được làm giàu liên quan đến bốn phân loại KEGG BRITE. (b–e) Sơ đồ nhiệt cụm biểu thị sự hiện diện của các gen trong con đường KEGG được làm giàu liên quan đến "các loại ung thư đặc hiệu" (b), "hệ thống miễn dịch" (c), "vi-rút bệnh truyền nhiễm" (d) và "truyền tín hiệu" " (e) ở những người nhiễm HIV-1-trước ART (ut) và sau một (st) hoặc một thời gian dài (lt) ART và ở những người kiểm soát ưu tú. (f) Số lượng dấu hiệu miễn dịch được làm phong phú bằng danh sách đầy đủ các gen đầu vào (tất cả các gen) hoặc danh sách gen có loại bỏ các gen trong bốn phân loại KEGG BRITE ở những người nhiễm HIV-1-sau một thời gian ngắn (st). ) hoặc một thời gian dài (lt) điều trị ART. ( g ) Các sơ đồ vĩ cầm biểu thị sự phân bố các giá trị p được điều chỉnh tương ứng với các dấu hiệu miễn dịch được làm giàu bằng danh sách đầy đủ các gen (tất cả các gen) hoặc danh sách gen với việc loại bỏ các gen trong bốn phân loại KEGG BRITE. Ý nghĩa thống kê được tính toán bằng thử nghiệm Wilcoxon trong R với các tùy chọn mặc định. (h) Sơ đồ nhiệt cụm thể hiện sự phong phú của các dấu hiệu yếu tố hòa tan tiền viêm được làm phong phú bằng danh sách đầy đủ các gen (tất cả các gen, cột 1 và cột 6) hoặc danh sách gen với việc loại bỏ các gen trong bốn phân loại KEGG BRITE ở HIV -1-các cá nhân bị nhiễm bệnh sau một thời gian ngắn (st, cột 7–10) hoặc một thời gian dài (lt, cột 2–5) điều trị ART. (i,j) Biểu đồ tương quan biểu thị mối tương quan Pearson được tính toán dựa trên mức độ phong phú của các yếu tố hòa tan tiền viêm ở những người nhiễm HIV{14}}sau một (i) hoặc một thời gian dài (j) điều trị ARV. NS > 0.05, ** p Nhỏ hơn hoặc bằng 0,01, **** p Nhỏ hơn hoặc bằng 0,0001. NGHỆ THUẬT; Điều trị kháng retrovirus. EC; những người kiểm soát ưu tú. XIN CHÀO VIS; Các địa điểm tích hợp HIV.
3.4. Phần lớn các dấu hiệu miễn dịch phong phú là kết quả từ các bộ gen tương tác với HIV-1
Như tôi đã đưa ra giả thuyết rằng tần số tích hợp HIV{0}} có thể được sử dụng làm đại diện cho các bộ gen nhằm xác định các loại tế bào miễn dịch cụ thể và các yếu tố hòa tan tiền viêm cần thiết trong quá trình nhiễm HIV-1, do đó, tôi đã kiểm tra xem có bất kỳ mối liên hệ nào không hiện diện giữa sự tích hợp HIV{2}} và các gen mục tiêu. Nếu đúng như vậy, tôi hy vọng rằng các dấu hiệu miễn dịch cần thiết sẽ được làm phong phú thêm nhờ các bộ gen thể hiện sự tương tác giữa protein với các sản phẩm gen của HIV-1 hoặc ảnh hưởng đến sự sao chép và lây nhiễm của HIV-1; trong khi đó, các bộ gen khác không tương tác với HIV-1 không chịu trách nhiệm làm phong phú thêm bất kỳ dấu hiệu miễn dịch nào trong quá trình nhiễm HIV-1. Để xác minh giả thuyết này, tôi đã tách các gen đầu vào được báo cáo là có tương tác với HIV-1 khỏi các gen khác không tương tác với HIV-1 (xem Vật liệu và Phương pháp) và quan sát thấy rằng 38,8% (47 gen trong số 121 gen ), 40,5% (60 gen trong số 148 gen), 37,5% (66 gen trong số 176 gen) và 29,8% (31 gen trong số 104 gen) gen đã được báo cáo là có tương tác với HIV-1 ở những người nhiễm HIV{26}} trước điều trị, những người nhiễm HIV{27}}được điều trị ARV trong thời gian ngắn, những người được điều trị ARV trong thời gian dài và những người kiểm soát ưu tú, tương ứng. Phần lớn các gen thể hiện sự tương tác với các gen gag-pol của HIV-1, tiếp theo là gen tat, gen env và gen nef; một số gen nhắm mục tiêu HIV{30}}đã được tìm thấy có tương tác với các gen HIV-1 vpr, vif, rev và vpu (Hình 4a).
Tôi tiếp tục thực hiện phân tích biểu hiện quá mức trên cả hai tập hợp con của gen đầu vào (tương tác với HIV-1 hoặc không) và nhận thấy rằng việc làm phong phú các dấu hiệu miễn dịch chủ yếu được đóng góp bởi các gen tương tác với HIV-1 ( Hình 4b) (Bảng S14 và S16). Chỉ một tỷ lệ nhỏ dấu hiệu miễn dịch được làm phong phú nhờ các gen không tương tác với HIV-1 (Bảng S15 và S17) (Hình 4b). Đáng chú ý là các gen tương tác với HIV{10}} ở những người nhiễm HIV{11}}trước điều trị chỉ chịu trách nhiệm tạo ra một tỷ lệ nhỏ các dấu hiệu miễn dịch được làm giàu (Hình 4b) (Bảng S13). Không có dấu hiệu miễn dịch nào có thể được làm phong phú hơn bằng cách sử dụng các gen không tương tác với HIV-1 ở những người nhiễm HIV-1-trước điều trị (Hình 4b). Điều thú vị là các yếu tố phong phú cho thấy sự gia tăng số lượng người nhiễm HIV{17}}được điều trị ARV, bất kể các gen nhắm mục tiêu provirus có được báo cáo là có tương tác với HIV-1 hay không (Hình 4c). Hơn nữa, nhiều dấu hiệu tế bào miễn dịch chỉ được quan sát thấy khi sử dụng các gen tương tác với HIV{21}} ở những bệnh nhân được điều trị ARV trong thời gian ngắn (145 kỳ) và thời gian dài (59 kỳ) (Hình 4d), giống như các trường hợp tương tự khi sử dụng danh sách đầy đủ các gen đầu vào. Ngược lại, người ta đã tìm thấy sự kết hợp kém giữa các loại tế bào miễn dịch trong các dấu hiệu miễn dịch được làm phong phú bằng cách sử dụng các gen không tương tác với HIV-1 (Hình 4d). Một cách nhất quán, phần lớn các dấu hiệu của yếu tố hòa tan tiền viêm đều có trong các dấu hiệu miễn dịch được làm giàu bằng cách sử dụng danh sách đầy đủ các gen đầu vào và các gen tương tác với HIV{27}} ở những người nhiễm bệnh được điều trị ART (Hình 4e). Một tỷ lệ nhỏ dấu hiệu của yếu tố hòa tan tiền viêm hoặc không có dấu hiệu của yếu tố hòa tan tiền viêm đã được quan sát bằng cách sử dụng các gen không tương tác với HIV{29}} và sử dụng các gen lấy được từ những người nhiễm HIV{30}}trước điều trị (Hình 4e) . Nhìn chung, những phát hiện này chỉ ra rằng các dấu hiệu miễn dịch phong phú ở những người nhiễm HIV{32}}được điều trị ARV chủ yếu là do các bộ gen tương tác với HIV-1.

Hình 4. Các bộ gen nhắm mục tiêu HIV-1-tương tác với HIV-1 đã góp phần làm phong phú thêm các dấu hiệu miễn dịch cùng với các trường hợp nhiễm HIV-1 liên quan đến ART. (a) Sơ đồ nhiệt cụm biểu thị tần suất các gen nhắm mục tiêu provirus tương tác với HIV-1. Dấu ngoặc đơn đặt dưới cột cho biết tổng số gen nhắm mục tiêu provirus được báo cáo là có tương tác với HIV-1. (b) Sơ đồ nhiệt cụm thể hiện các dấu hiệu miễn dịch phong phú ở những người nhiễm HIV-1-và những người kiểm soát ưu tú. Bên trong dấu ngoặc đơn, +HIV và −HIV lần lượt biểu thị các gen nhắm mục tiêu provirus được báo cáo là có tương tác với HIV{11}} hay không. Con số cho biết số lượng dấu hiệu miễn dịch được làm giàu. Thang màu thể hiện cường độ làm giàu được thể hiện bằng các yếu tố phong phú. ( c ) Các sơ đồ hình hộp thể hiện sự phong phú của các dấu hiệu miễn dịch được thể hiện bằng các yếu tố phong phú. Các lệnh được thực hiện để tính toán hệ số phong phú được mô tả trong Tài liệu và Phương pháp. Ý nghĩa thống kê được tính toán bằng thử nghiệm Wilcoxon trong R với các tùy chọn mặc định. (d) Biểu đồ thanh xếp chồng thể hiện tỷ lệ các loại tế bào miễn dịch có trong các dấu hiệu miễn dịch được làm giàu ở những người nhiễm HIV-HIV. Ý nghĩa thống kê được tính toán bằng phép thử chi bình phương của Pearson trong R với các tùy chọn mặc định. Bên trong dấu ngoặc đơn, +HIV và −HIV lần lượt biểu thị các gen nhắm mục tiêu provirus được báo cáo là có tương tác với HIV{17}} hay không. Con số cho biết số lượng loại tế bào miễn dịch được đếm trong các dấu hiệu miễn dịch được làm giàu. (e) Sơ đồ nhiệt cụm thể hiện sự phong phú của các yếu tố hòa tan tiền viêm hiện diện trong các dấu hiệu miễn dịch phong phú ở những người nhiễm HIV. Bên trong dấu ngoặc đơn, +HIV và −HIV lần lượt biểu thị các gen nhắm mục tiêu provirus được báo cáo là có tương tác với HIV{21}} hay không. Con số biểu thị số lượng yếu tố hòa tan tiền viêm trong tổng số dấu hiệu miễn dịch được làm giàu. NS > 0.05, * p Nhỏ hơn hoặc bằng 0.05, ** p Nhỏ hơn hoặc bằng 0.01 , *** p Nhỏ hơn hoặc bằng 0,001, **** p Nhỏ hơn hoặc bằng 0,0001. "u"; tiền xử lý. "st"; thời gian điều trị ART ngắn. "nó"; thời gian dài điều trị ART. NGHỆ THUẬT; Điều trị kháng retrovirus. EC; những người kiểm soát ưu tú. HSC; Tế bào gốc tạo huyết. tế bào NK; là những tế bào tiêu diệt tự nhiên. PBMC; tế bào đơn nhân máu ngoại vi.
4. Thảo luận
Trong công việc này, tôi tập trung vào khả năng tương tác giữa các gen chủ được nhắm mục tiêu bởi provirus và đặc tính bộ gen chức năng của vật chủ. Dựa trên phân tích biểu hiện quá mức của các gen được nhắm mục tiêu bởi provirus, lần đầu tiên tôi quan sát thấy các dấu hiệu miễn dịch đặc biệt khác nhau đã được làm phong phú cùng với các trường hợp nhiễm HIV{1}} liên quan đến ART (Hình 1b). Hơn nữa, sự gia tăng biến đổi trong các loại tế bào miễn dịch đã xuất hiện ở những người nhiễm HIV-1-được điều trị ARV trong thời gian dài (Hình 1e,f), phản ánh một môi trường có các phản ứng miễn dịch phức tạp. Do các loại tế bào liên quan đến miễn dịch bẩm sinh khác nhau được tuyển dụng vào vị trí nhiễm HIV-1 theo thời gian, nên việc tiết lộ những thay đổi của tế bào miễn dịch cùng với nhiễm trùng HIV-1 có thể là điều cần thiết để hiểu được sự tiến hóa của HIV -1 hồ chứa. Như được trình bày trong nghiên cứu này, các thành phần khác nhau của các loại tế bào miễn dịch xuất hiện dưới dạng các dấu hiệu miễn dịch được làm giàu độc đáo ở những người nhiễm HIV-1-trước điều trị, những bệnh nhân nhiễm HIV{11}}được điều trị bằng ART và những người kiểm soát ưu tú (Hình 1e,f ). Quan sát này cũng có thể liên quan đến các thành phần khác nhau của các yếu tố hòa tan tiền viêm cùng với các trường hợp nhiễm HIV{13}} liên quan đến ART, như được quan sát trong nghiên cứu này (Hình 2a).
Nghiên cứu này chứng minh rằng sự kết hợp khác nhau của các dấu hiệu yếu tố hòa tan tiền viêm xuất hiện ở các giai đoạn điều trị ARV khác nhau. Tôi quan sát thấy CXCR5, IFNB, IFNG, IL10 và TGFB được tìm thấy trong các dấu hiệu miễn dịch phong phú ở những người nhiễm HIV -1-được điều trị ARV trong thời gian ngắn và dài (Hình 2a). CXCL4, IFNA, IL1, IL2, IL6, IL7, IL15, IL18 và TNF chỉ được quan sát thấy dưới dạng dấu hiệu miễn dịch phong phú ở những người nhiễm HIV{11}}được điều trị ARV trong thời gian dài (Hình 2a). Người ta đã quan sát thấy rất ít yếu tố hòa tan tiền viêm ở những người nhiễm HIV{13}}và những người kiểm soát ưu tú trước điều trị (Hình 2a). Thật vậy, từ lâu người ta đã biết rằng nhiễm HIV{15}} dẫn đến rối loạn điều hòa cấu trúc cytokine [22]. Sẽ cần phải nghiên cứu sâu hơn để hiểu chiến lược miễn dịch sử dụng các thành phần khác nhau của các yếu tố hòa tan tiền viêm để can thiệp vào sự phát triển của ổ chứa HIV tiềm ẩn{17}}. Con đường KEGG được làm giàu nhờ các bộ gen liên quan đến các yếu tố nhóm II và III chủ yếu rơi vào các phân loại KEGG BRITE "các loại ung thư đặc hiệu", "vi-rút bệnh truyền nhiễm", "hệ thống miễn dịch" và "truyền tín hiệu" (Hình 2). Điều quan trọng cần lưu ý là các bộ gen từ bốn phân loại KEGG BRITE này chỉ dành cho những người nhiễm HIV{20}}được điều trị ARV trong thời gian ngắn và dài, và phần lớn trong số đó đặc trưng cho các giai đoạn điều trị khác nhau, cho thấy rằng việc lựa chọn tích hợp vi rút có thể tùy theo tiến triển của bệnh (Hình 3). Theo quan sát trong nghiên cứu này, sự lựa chọn này không liên quan đến sự kiểm soát ưu tú (Hình 3b–e). Cuối cùng, tôi đã chỉ ra rằng các dấu hiệu miễn dịch phong phú chủ yếu được đóng góp bởi các gen tương tác với HIV-1 (Hình 4b), mặc dù các gen được báo cáo là tương tác với HIV-1 không đại diện cho phần lớn các gen trong danh sách đầu vào. Ở đây, thật thú vị khi chỉ ra rằng những gen khởi đầu được phân tích trong nghiên cứu này không chỉ cho thấy sự tương tác với HIV-1 mà còn bị bộ gen của vi rút xâm chiếm trong điều kiện nhiễm HIV{28}} sinh lý. Quan sát này có thể chỉ ra rằng ái lực của các gen nhắm mục tiêu provirus đối với các sản phẩm gen của HIV-1 có thể đóng vai trò là một chỉ số tiềm năng để dự đoán các dấu hiệu miễn dịch cần thiết trong quá trình nhiễm HIV-1 liên quan đến ART. Sau đây là những câu hỏi mở: Điều gì khiến các gen được báo cáo là có tương tác với HIV-1 khác với các gen khác? Vai trò của các gen nhắm mục tiêu provirus không tương tác với HIV là gì-1?
Mặc dù hiện tại có thể sắp xếp trình tự bộ gen HIV{1}} có chiều dài gần như đầy đủ nhưng hiệu quả của các trình tự truy xuất được giới hạn trong phạm vi từ 50 đến 100 trình tự trong các tế bào được tinh chế từ bệnh nhân [23,24], do đó đưa ra kết quả chính xác. và điều tra định lượng khó khăn. Một chiến lược tốt hơn để sắp xếp trình tự bộ gen HIV{7}} có chiều dài đầy đủ của các tiền virus và nâng cao hiệu suất của các chuỗi đầu ra từ các mẫu lâm sàng sẽ là một điều kiện tiên quyết vì các tiền virus còn nguyên vẹn là nguyên nhân khiến virus quay trở lại sau khi ngừng điều trị [24]. Tổng cộng, 26, 6, 14 và 22 gen đầu vào đã được các tiền virus nguyên vẹn nhắm tới ở những người nhiễm HIV{13}}trước điều trị, những bệnh nhân được điều trị ARV trong thời gian ngắn, những người được điều trị ARV trong thời gian dài và những người kiểm soát ưu tú , tương ứng (Bảng S26). Điều thú vị là khoảng một phần ba đến một nửa số gen nhắm mục tiêu provirus còn nguyên vẹn có liên quan đến dấu hiệu của các loại tế bào miễn dịch (10 gen ở những người nhiễm HIV{18}}trước điều trị, 3 gen ở những bệnh nhân được điều trị ARV trong thời gian ngắn, 7 gen ở những bệnh nhân điều trị ARV trong thời gian dài và 11 gen ở những người kiểm soát ưu tú) (Bảng S18–S21). Ngược lại, các gen nhắm mục tiêu provirus nguyên vẹn không thường xuyên liên quan đến dấu hiệu của các yếu tố hòa tan tiền viêm (2 gen ở những người nhiễm HIV{25}}trước điều trị, 1 gen ở những bệnh nhân được điều trị ARV trong thời gian ngắn, 4 gen ở những bệnh nhân được điều trị bằng ART thời gian điều trị ART kéo dài và 4 gen ở bộ điều khiển ưu tú) (Bảng S22–S25). Một nghiên cứu gần đây hơn được công bố bởi Sun et al. (2023) [25] tiếp tục củng cố “giả thuyết chọn lọc miễn dịch” này do Einkauf và đồng nghiệp đề xuất (thuật ngữ “giả thuyết chọn lọc miễn dịch” đã được đề cập trong Tệp Đánh giá ngang hàng có tại https://static-content.springer.com/esm/ art%3A1 0.1038%2Fs41586-022-05538-8/MediaObjects/41586_2022_5538_MOESM2_ESM.pdf (truy cập ngày 25 tháng 1 năm 2023)). Họ quan sát thấy rằng các tế bào ổ chứa HIV{43}} chứa các tiền virus nguyên vẹn thường biểu hiện các dấu hiệu kiểu hình đồng bộ của các dấu hiệu bề mặt (bao gồm cả dấu hiệu điểm kiểm tra PD-1) tạo ra khả năng chống lại sự tiêu diệt qua trung gian miễn dịch bởi CD8+ T tế bào và tế bào NK [25]. Trong nghiên cứu này, hai dấu hiệu miễn dịch duy nhất là GSE26495_NAIVE_VS_PD1LOW_CD8_TCELL_DN [26] và GSE24026_PD1_THÍCH_ VS_CTRL_IN_ACT_TCELL_LINE{ {64}}DN [27], được làm giàu ở những người nhiễm HIV{66}}được điều trị ARV trong thời gian dài được quan sát thấy có liên quan đến PD{67}} (Bảng S3).
Trong nghiên cứu này, tôi đã nghiên cứu xem liệu đặc tính bộ gen chức năng có góp phần vào sự lựa chọn miễn dịch này cùng với các trường hợp nhiễm HIV-1 liên quan đến ART hay không và đã kiểm tra xem các gen được nhắm mục tiêu bởi vi-rút có thể hình thành các cộng đồng khác nhau có lợi cho quá trình miễn dịch hay không bằng cách huy động các tế bào miễn dịch và kích hoạt các con đường truyền tín hiệu ở các giai đoạn lây nhiễm HIV-1 gây bệnh khác nhau liên quan đến ART. Điều quan trọng cần lưu ý là mặc dù các bộ gen chữ ký miễn dịch được làm giàu chiếm ít hơn 10% số gen đầu vào (Bảng S1, S4), các yếu tố phong phú cho thấy sự làm giàu đáng kể (Hình 1c và 4c), tạo ra kết quả từ sự đại diện quá mức phân tích mạnh mẽ. Một nghiên cứu trước đây cũng chứng minh rằng sự biểu hiện quá mức của các con đường không tương quan với số lượng gen trong các con đường [28]. Một số câu hỏi quan trọng vẫn cần được giải quyết liên quan đến (1) liệu các gen chủ có liên quan đến khả năng miễn dịch bẩm sinh có thường xuyên bị các provirus nhắm tới hay không và (2) liệu sự tích hợp HIV{12}} vào các gen liên quan đến khả năng miễn dịch bẩm sinh có phải là do trạng thái hoạt động phiên mã hay không , do đó thuận lợi cho việc tích hợp HIV{13}}. Trong số các gen đầu vào được phân tích trong nghiên cứu này, rất ít gen trùng lặp giữa bệnh nhân được điều trị ART và người kiểm soát ưu tú cũng như giữa những người nhiễm HIV{15}}trước điều trị và bệnh nhân được điều trị ART (Hình 1a và Bảng S27). Gen raptor là gen duy nhất có trong bốn danh sách gen đầu vào (Bảng S27). Sản phẩm gen của raptor tạo thành một phức hợp cân bằng hóa học với mục tiêu của động vật có vú là rapamycin (mTOR) kinase. Tín hiệu mTOR điều chỉnh phần lớn quá trình trao đổi chất của tế bào trong các tế bào T đã hoạt hóa và được biết là cần thiết cho sự nhân lên và độ trễ của HIV{19}} [29,30], nhấn mạnh tầm quan trọng của quá trình chuyển hóa hệ miễn dịch liên quan đến sinh bệnh học HIV{22}} [31] . Gen rapgef2 được tìm thấy trong suốt quá trình nhiễm HIV{25}} ở bệnh nhân (Hình 3e và Bảng S27). Sản phẩm gen của rapgef2 chịu trách nhiệm kích hoạt RAS [32]. Protein Ras đóng vai trò là chất trung gian trung tâm trong nhiều con đường truyền tín hiệu, bao gồm cả hoạt hóa NF-κB [33]. NF-κB là một trong những yếu tố phiên mã quan trọng cần thiết cho quá trình bắt đầu phiên mã HIV-1 [34,35] và là mục tiêu điều trị được kích hoạt bởi thuốc kháng vi-rút [36]. Năm gen phổ biến đã được tìm thấy ở những người nhiễm HIV-1-trước điều trị và những bệnh nhân được điều trị ARV trong thời gian ngắn; tuy nhiên, người ta biết rất ít về vai trò của chúng trong sinh bệnh học HIV{38}} (Bảng S27). Đáng chú ý, chức năng của sản phẩm gen ưa thích có liên quan đến việc sửa chữa DNA. Gần đây, Kabi và Filion đã đề xuất giả thuyết ban đầu của họ rằng việc sửa chữa DNA có thể giúp đánh dấu các virus tích hợp, bao gồm cả HIV{40}}, cho phép khả năng miễn dịch của vật chủ cảm nhận được DNA của virus [37]. Nếu giả thuyết này được kiểm chứng là đúng, nó sẽ mở ra một hướng nghiên cứu mới về cảm biến miễn dịch tích hợp của virus, trong đó chất nhiễm sắc sẽ đóng một vai trò. Bảy gen giống hệt nhau giữa những người nhiễm HIV{42}}trước điều trị và những bệnh nhân được điều trị ARV trong thời gian dài (Bảng S27). Gen malat1, tạo ra RNA không mã hóa dài, đã được chứng minh là thúc đẩy quá trình phiên mã và lây nhiễm HIV{46}} [38]. Sản phẩm gen của vav1 và con đường truyền tín hiệu qua trung gian của nó đã được chứng minh là có tương tác với HIV-1 Nef [39–41]. Tổng cộng có 11 gen được chia sẻ giữa các bệnh nhân được điều trị ARV trong thời gian ngắn và dài (Bảng S27). Trong số đó, gen brd4 đã được quan sát thấy. BRD4 là một trong những trình đọc biểu sinh thiết yếu điều chỉnh quá trình phiên mã HIV-1 [42–44] và đã trở thành mục tiêu phổ biến trong việc thiết kế thuốc kháng vi-rút [45]. Trong một bài báo nghiên cứu, người ta đã tìm thấy ảnh hưởng của biểu hiện gen ndufa6 đối với quá trình apoptosis của tế bào T do HIV{61}}gây ra [46]. Ở đây, tôi đã tóm tắt các gen đầu vào có liên quan đến dấu hiệu của các loại tế bào miễn dịch hoặc các yếu tố hòa tan tiền viêm trong Bảng 2.
Bảng 2. Số lượng gen nhắm mục tiêu provirus (từ Bảng 1) liên quan đến dấu hiệu của các loại tế bào miễn dịch và các yếu tố hòa tan tiền viêm.

Điều thú vị là hơn 90% gen đầu vào có liên quan đến dấu hiệu loại tế bào miễn dịch ở những người nhiễm HIV-1-được điều trị ARV trong thời gian dài, tiếp theo là những người nhiễm HIV-1-được điều trị trong một thời gian ngắn. ART (67,7%), những người kiểm soát ưu tú (46,1%) và những người nhiễm HIV-1-trước điều trị (28,9%) (Bảng 2). Một cách nhất quán, 61,9% gen đầu vào có liên quan đến dấu hiệu của các yếu tố hòa tan tiền viêm ở những người nhiễm HIV{13}}được điều trị ARV trong thời gian dài, tiếp theo là những người nhiễm HIV{14}}được điều trị trong thời gian ngắn ART (24,8%), những người kiểm soát ưu tú (24%) và những người nhiễm HIV trước điều trị (5,7%) (Bảng 2). Trong khi trùng lặp với các gen cytokine của con người (trong tổng số 1793 gen duy nhất) có sẵn tại ImmPort (https://www.immport.org (truy cập vào ngày 27 tháng 1 năm 2023)) [47–49], không có gen nhắm mục tiêu provirus nào liên quan đến tiền viêm các yếu tố hòa tan ở những người nhiễm HIV{28}}trước điều trị thuộc về gen cytokine. Năm (ctss, nr2c2, pik3r1, price, rac2), mười (bach2, eed, grap2, il27ra, il2rb, itga, jak1, mouse, ppp3cc, tap2) và một (grb2) gen nhắm mục tiêu provirus liên quan đến các yếu tố hòa tan tiền viêm thuộc về đến các gen cytokine trong bộ điều khiển st, lt và Elite tương ứng. Gen pik3r1 đã được đề xuất là một trong những yếu tố vật chủ thiết yếu được các protein virut HIV{45}} nhắm đến bằng cách sử dụng sàng lọc RNAi trên toàn bộ gen [50]. Một số nghiên cứu đã chỉ ra rằng protein kinase C theta, sản phẩm gen của giá, có liên quan đến việc kiểm soát sự sao chép của HIV{48}} [51,52] và có liên quan đến HIV-1 Nef dẫn đến kích hoạt ERK1 /2 [53,54]. Sản phẩm gen của rac2 (Rac) và đường truyền tín hiệu liên quan của nó đã được báo cáo là được kích hoạt bởi phức hợp protein liên quan đến HIV-1 Nef [55] và có liên quan đến sự phong tỏa giải phóng superoxide do HIV-1 Nef gây ra trong đại thực bào của con người [56]. Gen bach2 hiện là một trong những gen liên quan đến ung thư nổi tiếng có lợi cho sự tích hợp HIV{66}} được xác định ở những người nhiễm HIV{67}} [1]. Gen eed mã hóa một thành viên của phức hợp polycomb 2 tương tác với protein ma trận HIV{70}}. Việc ức chế EED cho phép đảo ngược độ trễ của HIV{71}} bằng cách giảm mức độ tri-methyl hóa H3K27 [57]. Gen il17ra mã hóa tiểu đơn vị thụ thể alpha interleukin 27. Gần đây, tín hiệu IL{78}} (IL-27 và thụ thể của nó) đã được đề xuất có liên quan đến cơ chế bệnh sinh của nhiễm HIV-1 và sự phục hồi miễn dịch ở những người nhiễm bệnh được điều trị ARV [58,59 ]. Gen il2rb mã hóa tiểu đơn vị thụ thể interleukin 2 beta. Biểu hiện IL2RB cần thiết để sản xuất hạt được tế bào lympho sử dụng để tiêu diệt khối u và tế bào vi khuẩn đã được chứng minh là bị rối loạn chức năng ở những người nhiễm HIV [60]. Gen jak1 là thành phần chính của phản ứng viêm và miễn dịch interleukin-6/JAK1/STAT3. Các chất ức chế JAK1/2, chẳng hạn như ruxolitinib và baricitinib, đã được Cơ quan Quản lý Thực phẩm và Dược phẩm Hoa Kỳ (FDA) phê duyệt như một chiến lược điều trị tiềm năng nhằm vào ổ chứa HIV tiềm ẩn-1 [61]. Chuột mang gen mã hóa một loại protein bị glycosyl hóa mạnh, là phối tử cho thụ thể loại II thuộc nhóm sát thủ tự nhiên; thụ thể này chịu trách nhiệm giám sát miễn dịch của vật chủ và gây độc tế bào qua trung gian tế bào NK trong quá trình nhiễm HIV-1 [62]. Gen tap2 là một trong những gen được mã hóa MHC-II cần thiết cho việc tạo ra phản ứng miễn dịch tế bào. Một nghiên cứu đã chỉ ra rằng đa hình A/G dị hợp tử và G/G đồng hợp tử trên TAP2, chứ không phải TAP1, có liên quan tích cực đến việc tăng nguy cơ nhiễm HIV{105}}/AIDS [63]. Rom và đồng nghiệp (2011) đã chỉ ra sự tương tác giữa yếu tố tế bào Grb2 (sản phẩm gen của grb2) và protein Tat của HIV{110}} sau đó làm suy yếu quá trình kích hoạt con đường Raf/MAPK [64]. Mặc dù cuộc thảo luận giữa những người nhiễm HIV được điều trị bằng ART và những người kiểm soát ưu tú còn khiêm tốn trong nghiên cứu hiện tại, nhưng một số phát hiện (Hình 1b, 2a và 3b–e) cho thấy xu hướng khác nhau về các dấu hiệu miễn dịch phong phú giữa hai nhóm này của những người sống chung với HIV{117}}. Cho rằng kiểu hình cụ thể của kiểm soát ưu tú rất có thể có lợi cho các yếu tố chủ [65], việc nghiên cứu sâu hơn về sự tương tác chức năng giữa các bộ kiểm soát ưu tú và đặc tính bộ gen có thể được kỳ vọng sẽ làm sáng tỏ cơ sở phân tử của kiểm soát ưu tú.

cistanche tubulosa-cải thiện hệ thống miễn dịch
Hiện tại, các bộ dữ liệu phiên mã tương ứng với danh sách gen đầu vào được sử dụng trong nghiên cứu này vẫn chưa có sẵn. Hiện tại vẫn chưa rõ liệu trạng thái phiên mã của một gen có thể liên quan đến sự tương tác giữa các vị trí tích hợp HIV{0}} và đặc tính bộ gen chức năng của vật chủ hay không. Các phương pháp trực giao tiếp theo và bộ dữ liệu phiên mã bổ sung trên các tế bào bệnh nhân tương ứng sẽ là điều cần thiết để làm rõ liệu tần số vị trí tích hợp có phụ thuộc vào mức độ biểu hiện gen hay không. Một vấn đề quan trọng khác là không rõ liệu các trang web tích hợp của provirus có được truy xuất bằng các phương pháp khác nhau hay không (FLIP-seq [66] và MIP-seq [67] được Jiang và cộng sự sử dụng (2020) [6]; PRIP-seq được sử dụng bởi Einkauf và cộng sự (2022) [5]) có thể gây ra bất kỳ sai lệch nào khi so sánh kết quả giữa những người nhiễm HIV{10}}và những người kiểm soát ưu tú. Trong tương lai, các thí nghiệm để truy xuất song song các vị trí tích hợp provirus (nguyên vẹn) từ cả hai loại bệnh nhân sẽ được yêu cầu để so sánh sự khác biệt của chúng một cách có hệ thống. Tuy nhiên, những quan sát trong nghiên cứu này cho phép đề xuất một hướng nghiên cứu mới về sự tích hợp HIV{11}} và đặc tính bộ gen chức năng của vật chủ cùng với các trường hợp nhiễm HIV{12}} liên quan đến ART.
5. Kết Luận
Những phát hiện thực nghiệm từ Einkauf et al. (2022) [5] và Jiang và cộng sự. (2020) [6] gợi ý rõ ràng rằng có sự hiện diện của áp lực chọn lọc miễn dịch trong quá trình điều trị ARV ở những người nhiễm HIV -1-và giai đoạn kiểm soát ưu tú trong thời gian dài. Trong nghiên cứu này, tôi đã thực hiện phân tích biểu hiện quá mức trên các gen nhắm mục tiêu provirus từ hai nghiên cứu này và chứng minh rằng các dấu hiệu miễn dịch đặc biệt đã được làm phong phú hơn ở những người nhiễm HIV-HIV-1-, những người nhiễm HIV-1- trước khi điều trị. điều trị ART trong thời gian ngắn, những người điều trị ART trong thời gian dài và những người kiểm soát ưu tú (Hình 1b). Hơn nữa, tôi quan sát thấy rằng cần phải có các dấu hiệu miễn dịch đặc biệt liên quan đến sự kết hợp khác nhau của các loại tế bào miễn dịch (Hình 1e, f) và các yếu tố hòa tan tiền viêm (Hình 2a) để đáp ứng đáp ứng miễn dịch của vật chủ cùng với việc nhiễm HIV{13}} liên quan đến ART và một thời kỳ liên tiếp dưới sự kiểm soát của giới tinh hoa. Con đường KEGG được làm giàu nhờ các gen nhắm mục tiêu provirus liên quan đến dấu hiệu của các yếu tố hòa tan tiền viêm thường liên quan đến "các loại ung thư đặc hiệu", "hệ thống miễn dịch", "vi rút bệnh truyền nhiễm" và "truyền tín hiệu" (Hình 3). Quan trọng nhất, nghiên cứu này đã chỉ ra rằng các dấu hiệu miễn dịch chủ yếu là do các gen nhắm mục tiêu provirus tương tác với HIV-1 (Hình 4). Tất cả những phát hiện này khiến chúng tôi đưa ra giả thuyết rằng các gen của vật chủ chứa đựng sự tích hợp HIV{20}} có thể hình thành các cộng đồng gen khác nhau, có thể xác định các loại tế bào miễn dịch cụ thể và các yếu tố hòa tan tiền viêm để hỗ trợ khả năng miễn dịch của vật chủ cùng với các trường hợp nhiễm HIV{21}} liên quan đến ART .
Người giới thiệu
1. Ikeda, T.; Shibata, J.; Yoshimura, K.; Koito, A.; Matsushita, S. Sự tích hợp HIV tái phát-1 tại BACH2Locus trong các quần thể tế bào T CD4 đang nghỉ ngơi trong quá trình điều trị bằng liệu pháp kháng vi-rút hoạt tính cao hiệu quả. J. Lây nhiễm. Dis. 2007, 195, 716–725. [Tham khảo chéo]
2. Maldarelli, F.; Ngô, X.; Sử, L.; Simonetti, Pháp; Thiệu, W.; Đồi, S.; Con quay, J.; Ferris, AL; Mellors, JW; Kearney, MF; et al. Độ trễ của HIV. Các vị trí tích hợp HIV cụ thể có liên quan đến sự mở rộng dòng vô tính và sự tồn tại của các tế bào bị nhiễm bệnh. Khoa học 2014, 345, 179–183. [Tham khảo chéo]
3. Wagner, TA; McLaughlin, S.; Garg, K.; Trương, CYK; Larsen, BB; Styrchak, S.; Hoàng, HC; Edlefsen, PT; Mullins, JI; Frenkel, LM HIV độ trễ. Sự tăng sinh của các tế bào nhiễm HIV tích hợp vào gen ung thư góp phần gây ra tình trạng nhiễm trùng dai dẳng. Khoa học 2014, 345, 570–573. [Tham khảo chéo]
4. Zhyvoloup, A.; Melamed, A.; Anderson, tôi.; Planas, D.; Lee, C.-H.; Kriston-Vizi, J.; Ketteler, R.; Merritt, A.; Routy, J.-P.; Ancuta, P.; et al. Digoxin tiết lộ mối liên hệ chức năng giữa ưu tiên tích hợp HIV-1 và hoạt hóa tế bào T. PLoS Pathog. 2017, 13, e1006460. [Tham khảo chéo]
5. Einkauf, KB; Osborn, MR; Gao, C.; Mặt trời, W.; Mặt trời, X.; Liên, X.; Parsons, EM; Gladkov, GT; Seiger, KW; Blackmer, JE; et al. Phân tích song song quá trình phiên mã, tích hợp và trình tự của các loại vi-rút HIV đơn lẻ-1. Ô 2022, 185, 266–282.e15. [Tham khảo chéo]
6. Giang, C.; Liên, X.; Gao, C.; Mặt trời, X.; Einkauf, KB; Hiệp sĩ, JM; Chen, SMY; Hứa, S.; Rhee, B.; Chang, K.; et al. Các ổ chứa virus riêng biệt ở những người có khả năng kiểm soát HIV một cách tự nhiên-1. Thiên nhiên 2020, 585, 261–267. [Tham khảo chéo]
7. Mục sư-Satorras, R.; Vázquez, A.; Vespignani, A. Thuộc tính động và tương quan của Internet. Vật lý. Linh mục Lett. 2001, 87, 258701. [Tham khảo chéo]
8. Girvan, M.; Newman, MEJ Cấu trúc cộng đồng trong mạng xã hội và sinh học. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 2002, 99, 7821–7826. [Tham khảo chéo]
9. Krause, J.; Croft, DP; James, R. Lý thuyết mạng xã hội trong khoa học hành vi: Các ứng dụng tiềm năng. Cư xử. Sinh thái. Xã hội học. 2007, 62, 15–27. [Tham khảo chéo]
10. Thẳng thắn, A.; Diekhans, M.; Ferreira, A.-M.; Johnson, R.; Jungreis, tôi.; Loveland, J.; Mudge, JM; Sisu, C.; Wright, J.; Armstrong, J.; et al. Chú thích tham chiếu GENCODE cho bộ gen của người và chuột. Axit nucleic Res. 2019, 47, D766–D773. [Tham khảo chéo]
11. Quinlan, AR; Hall, IM BEDTools: Một bộ tiện ích linh hoạt để so sánh các đặc điểm bộ gen. Tin sinh học 2010, 26, 841–842. [Tham khảo chéo] 12. Yu, G.; Vương, L.-G.; Hàn, Y.; Anh ấy, Q.-Y. clusterProfiler: Gói R để so sánh các chủ đề sinh học giữa các cụm gen. OMICS 2012, 16, 284–287. [Tham khảo chéo]
13. Ngô, T.; Hu, E.; Xu, S.; Chen, M.; Quách, P.; Đại, Z.; Phong, T.; Chu, L.; Tăng, W.; Zhan, L.; et al. clusterProfiler 4.0: Một công cụ nâng cao phổ quát để diễn giải dữ liệu omics. Đổi mới 2021, 2, 100141. [Tham khảo chéo]
14. Boyle, EI; Weng, S.; Gollub, J.; Jin, H.; Botstein, D.; Anh đào, JM; Sherlock, G. GO::TermFinder–phần mềm nguồn mở để truy cập thông tin Bản thể gen và tìm các thuật ngữ Bản thể gen được làm phong phú đáng kể liên quan đến danh sách các gen. Tin sinh học 2004, 20, 3710–3715. [Tham khảo chéo]
15. Subramanian, A.; Tamayo, P.; Mootha, VK; Mukherjee, S.; Ebert, BL; Gillette, MA; Paulovich, A.; Pomeroy, SL; Golub, TR; Lander, ES; et al. Phân tích làm giàu bộ gen: Một cách tiếp cận dựa trên kiến thức để giải thích các cấu hình biểu hiện trên toàn bộ bộ gen. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 2005, 102, 15545–15550. [Tham khảo chéo]
16. Liberzon, A.; Subramanian, A.; Pinchback, R.; Thorvaldsdottir, H.; Tamayo, P.; Mesirov, JP Cơ sở dữ liệu chữ ký phân tử (MSigDB) 3.0. Tin sinh học 2011, 27, 1739–1740. [Tham khảo chéo]
17. Liberzon, A.; Birger, C.; Thorvaldsdóttir, H.; Gandhi, M.; Mesirov, JP; Tamayo, P. Bộ sưu tập bộ gen đặc trưng của Cơ sở dữ liệu chữ ký phân tử (MSigDB). Hệ thống di động 2015, 1, 417–425. [Tham khảo chéo]
18. Gu, Z.; Eils, R.; Schlesner, M. Bản đồ nhiệt phức tạp tiết lộ các mô hình và mối tương quan trong dữ liệu gen đa chiều. Tin sinh học 2016, 32, 2847–2849. [Tham khảo chéo]
19. Ptak, RG; Fu, W.; Sanders-Bia, BE; Dickerson, JE; Pinney, JW; Robertson, DL; Rozanov, MN; Katz, KS; Maglott, DR; Pruitt, KD; et al. Thông tin ngắn: Lập danh mục Mạng lưới tương tác protein người loại 1 của HIV. AIDS Res. Ừm. Retrovir. 2008, 24, 1497–1502. [Tham khảo chéo]
20. Fu, W.; Sanders-Bia, BE; Katz, KS; Maglott, DR; Pruitt, KD; Ptak, RG Virus gây suy giảm miễn dịch ở người loại 1, cơ sở dữ liệu tương tác protein ở người tại NCBI. Axit nucleic Res. 2009, 37, D417–D422. [Tham khảo chéo]
21. Pinney, JW; Dickerson, JE; Fu, W.; Sanders-Bia, BE; Ptak, RG; Robertson, DL Tương tác với vật chủ HIV: Bản đồ về sự xáo trộn của virus đối với hệ thống vật chủ. AIDS 2009, 23, 549–554. [Tham khảo chéo]
22. Clerici, M.; Shearer, GM A Công tắc TH1→TH2 là một bước quan trọng trong nguyên nhân lây nhiễm HIV. Miễn dịch. Hôm nay 1993, 14, 107–111. [Tham khảo chéo]
23. Hiềner, B.; Horsburgh, BA; Eden, J.-S.; Barton, K.; Schlub, TE; Lee, E.; Stockenstrom, S.; Odevall, L.; Milush, JM; Liegler, T.; et al. Xác định các loại virus HIV-1 nguyên vẹn về mặt di truyền trong các tế bào T CD4 cụ thể từ những người tham gia được điều trị hiệu quả. Dân biểu Tế bào 2017, 21, 813–822. [Tham khảo chéo]
24. Hồ, Y.-C.; Shan, L.; Hosmane, NN; Vương, J.; Laskey, SB; Rosenbloom, DIS; Lai, J.; Blankson, JN; Siliciano, JD; Siliciano, các loại vi-rút không được tạo ra có khả năng sao chép RF trong ổ chứa tiềm ẩn làm tăng rào cản đối với việc chữa khỏi HIV-1. Ô 2013, 155, 540–551. [Tham khảo chéo]
25. Mặt trời, W.; Gao, C.; Hartana, CA; Osborn, MR; Einkauf, KB; Liên, X.; Xương, B.; Bonheur, N.; Chun, T.-W.; Rosenberg, ES; et al. Dấu hiệu kiểu hình của sự chọn lọc miễn dịch ở tế bào chứa HIV-1. Thiên nhiên 2023. trực tuyến trước khi in. [Tham khảo chéo]
26. Duraiswamy, J.; Ibegbu, CC; Masopust, D.; Miller, JD; Araki, K.; Doho, GH; Tata, P.; Gupta, S.; Zilliox, MJ; Nakaya, HI; et al. Cấu hình kiểu hình, chức năng và biểu hiện gen của tế bào T CD8 chết theo chương trình-1(hi) ở người trưởng thành khỏe mạnh. J. Miễn dịch. 2011, 186, 4200–4212. [Tham khảo chéo]
27. Quigley, M.; Pereyra, F.; Nilsson, B.; Porichis, F.; Fonseca, C.; Eichbaum, Q.; Julg, B.; Jesneck, JL; Brosnahan, K.; Imam, S.; et al. Phân tích phiên mã của tế bào T CD8+ đặc hiệu với HIV cho thấy PD-1 ức chế chức năng tế bào T bằng cách điều chỉnh tăng BATF. Nat. Med. 2010, 16, 1147–1151. [Tham khảo chéo]
28. Chen, K.-C.; Vương, T.-Y.; Chan, C.-H. Mối liên quan giữa HIV và các con đường ở người được tiết lộ bởi sự tương tác giữa protein-protein và hồ sơ biểu hiện gen tương quan. XIN MỘT 2012, 7, e34240. [Tham khảo chéo]
29. Besnard, E.; Hakre, S.; Kampmann, M.; Lim, HW; Hosmane, NN; Martin, A.; Bassik, MC; Verschueren, E.; Battivelli, E.; Chan, J.; et al. Phức hợp mTOR kiểm soát độ trễ của HIV. Vi khuẩn chủ tế bào 2016, 20, 785–797. [Tham khảo chéo]
30. Miệng núi lửa, JM; Nixon, DF; O'Brien, sự sao chép và độ trễ của RLF HIV{1}} được cân bằng nhờ quá trình chuyển hóa tế bào do mTOR điều khiển. Đằng trước. Nhiễm tế bào. Vi sinh vật. 2022, 12, 1068436. [Tham khảo chéo]
31. Valle-Casuso, JC; Angin, M.; Có thể bay hơi, S.; Passaes, C.; Monceaux, V.; Mikhailova, A.; Bourdic, K.; Avettand-Fenoel, V.; Boufassa, F.; Sitbon, M.; et al. Chuyển hóa tế bào là yếu tố quyết định chính cho việc gieo mầm HIV-1 trong tế bào T CD4 và mang lại cơ hội giải quyết tình trạng lây nhiễm. Tế bào Metab. 2019, 29, 611–626.e5. [Tham khảo chéo]
32. Rebhun, JF; Castro, AF; Quilliam, LA Xác định các yếu tố trao đổi nucleotide guanine (GEF) cho Rap1 GTPase. Điều chỉnh MR-GEF bằng tương tác M-Ras-GTP. J. Biol. Chem. 2000, 275, 34901–34908. [Tham khảo chéo]
33. Folgueira, L.; Algeciras, A.; MacMorran, WS; Bren, GD; Paya, CV Con đường Ras-Raf được kích hoạt trong các tế bào đơn nhân bị nhiễm virus gây suy giảm miễn dịch ở người và tham gia vào quá trình kích hoạt NF-kappa B. J. Virol. 1996, 70, 2332–2338. [Tham khảo chéo]
34. Gerritsen, ME; Williams, AJ; Neish, NHƯ; Moore, S.; Shi, Y.; Collins, protein liên kết với T. CREB/p300 là các chất đồng hoạt hóa phiên mã của p65. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 1997, 94, 2927–2932. [Tham khảo chéo]
35. Hoàng, B.; Yang, X.-D.; Chu, M.-M.; Ozato, K.; Chen, L.-F. Brd4 đồng kích hoạt quá trình kích hoạt phiên mã của NF-κB thông qua liên kết cụ thể với Acetyl hóa RelA. Mol. Tế bào. Biol. 2009, 29, 1375–1387. [Tham khảo chéo]
36. Brogdon, J.; Ziani, W.; Vương, X.; Veazey, RS; Xu, H. Tác dụng in vitro của chất chủ vận protein kinase C phân tử nhỏ đối với việc tái kích hoạt độ trễ của HIV. Khoa học. Dân biểu 2016, 6, 39032. [CrossRef]
37. Kabi, M.; Filion, GJ Chromatin và sự tích hợp virus trong khả năng miễn dịch: Thách thức trong việc làm im lặng các gen không phải của bản thân. Xu hướng miễn dịch. 2022, 43, 449–458. [Tham khảo chéo]
38. Qu, D.; Mặt trời, W.-W.; Lý, L.; Mẹ, L.; mặt trời, L.; Jin, X.; Lý, T.; Hầu, W.; Vương, J.-H. RNA không mã hóa dài MALAT1 giải phóng sự im lặng biểu sinh của quá trình sao chép HIV-1 bằng cách thay thế phức hợp ức chế polycomb 2 khỏi liên kết với chất kích thích LTR. Axit nucleic Res. 2019, 47, 3013–3027. [Tham khảo chéo]
39. Kiểm dịch, MG; Mattioli, B.; Spadaro, F.; Straface, E.; Giordani, L.; Ramoni, C.; Malorni, W.; Viora, M. HIV-1 Nef kích hoạt đường truyền tín hiệu qua trung gian Vav dẫn đến sự biệt hóa về chức năng và hình thái của các tế bào đuôi gai. FASEB J. 2003, 17, 2025–2036. [Tham khảo chéo]
40. Rauch, S.; Pulkkinen, K.; Saksela, K.; Fackler, OT Virus gây suy giảm miễn dịch ở người loại 1 Nef tuyển dụng yếu tố trao đổi guanine Vav1 thông qua một giao diện không mong muốn vào các vi miền màng huyết tương để liên kết với hoạt động p21-kinase 2 được kích hoạt. J. Virus. 2008, 82, 2918–2929. [Tham khảo chéo]
41. Sarmady, M.; Dampier, W.; Tozeren, A. Dự đoán dựa trên trình tự và tương tác về các điểm nóng protein virus nhắm vào protein chủ: Một nghiên cứu điển hình về HIV Nef. XIN MỘT 2011, 6, e20735. [Tham khảo chéo]
42. Jang, MK; Mochizuki, K.; Chu, M.; Jeong, H.-S.; Brady, JN; Ozato, K. Protein bromodomain Brd4 là thành phần điều hòa tích cực của P-TEFb và kích thích phiên mã phụ thuộc RNA polymerase II. Mol. Ô 2005, 19, 523–534. [Tham khảo chéo]
43. Dương, Z.; Yik, JHN; Chen, R.; Anh, N.; Jang, MK; Ozato, K.; Chu, Q. Tuyển dụng P-TEFb để kích thích kéo dài phiên mã bằng protein bromodomain Brd4. Mol. Ô 2005, 19, 535–545. [Tham khảo chéo]
44. Bisgrove, DA; Mahmoudi, T.; Henklein, P.; Verdin, E. Miền tương tác P-TEFb được bảo tồn của BRD4 ức chế quá trình sao chép HIV. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 2007, 104, 13690–13695. [Tham khảo chéo]
45. Lý, Z.; Quách, J.; Ngô, Y.; Chu, Q. Chất ức chế bromodomain BET JQ1 kích hoạt độ trễ của HIV thông qua việc ức chế giao dịch Tat đối kháng Brd4. Axit nucleic Res. 2013, 41, 277–287. [Tham khảo chéo]
46. Ladha, JS; Tripathy, MK; Mitra, D. Hoạt động của phức hợp ty thể I bị suy giảm trong quá trình apoptosis tế bào T do HIV-1- gây ra. Sự khác biệt về cái chết của tế bào. 2005, 12, 1417–1428. [Tham khảo chéo]
47. Chaussabel, D.; Baldwin, N. Dân chủ hóa hệ thống miễn dịch học với các phân tích tiết mục phiên mã mô-đun. Nat. Linh mục Miễn dịch. 2014, 14, 271–280. [Tham khảo chéo]
48. Lý, S.; Rouphael, N.; Duraiseham, S.; Romero-Steiner, S.; Presnell, S.; Davis, C.; Schmidt, DS; Johnson, SE; Milton, A.; Rajam, G.; et al. Dấu hiệu phân tử của phản ứng kháng thể bắt nguồn từ một nghiên cứu sinh học hệ thống về 5 loại vắc xin dành cho người. Nat. Miễn dịch. 2014, 15, 195–204. [Tham khảo chéo]
49. Bhattacharya, S.; Dunn, P.; Thomas, CG; Smith, B.; Schaefer, H.; Chen, J.; Hu, Z.; Zalocusky, KA; Shankar, RD; Shen-Orr, SS; et al. ImmPort, hướng tới việc tái sử dụng dữ liệu xét nghiệm miễn dịch truy cập mở cho nghiên cứu lâm sàng và lâm sàng. Khoa học. Dữ liệu 2018, 5, 180015. [CrossRef]
50. Xie, D.; Hàn, L.; Lạc, Y.; Lưu, Y.; Anh ấy là.; Bài, H.; Vương, S.; Bo, X. Khám phá mối liên hệ giữa các gen chủ đối với tình trạng nhiễm vi-rút được tiết lộ bởi các tương tác RNAi trên toàn bộ gen và protein-vật chủ của vi-rút. Mol. Hệ thống sinh học. 2015, 11, 2511–2519. [Tham khảo chéo]
51. Bermejo, M.; López-Huertas, MR; Hedgpeth, J.; Mateos, E.; Rodríguez-Mora, S.; Maleno, MJ; Plana, M.; Lừa đảo, J.; Alcamí, J.; Coiras, M. Phân tích các chất ức chế protein kinase C theta để kiểm soát sự sao chép của HIV-1 trong tế bào T CD4+ ở người cho thấy tác động lên quá trình phiên mã ngược bên cạnh quá trình phiên mã của virus. Hóa sinh. Dược phẩm. 2015, 94, 241–256. [Tham khảo chéo]
52. López-Huertas, MR; Lý, J.; Zafar, A.; Rodríguez-Mora, S.; García-Domínguez, C.; Mateos, E.; Alcamí, J.; Rao, S.; Coiras, M. PKCθ và bộ điều hòa phiên mã HIV-1 Tat cùng tồn tại ở yếu tố thúc đẩy LTR trong tế bào T CD4(+). Đằng trước. Miễn dịch. 2016, 7, 69. [Tham khảo chéo]
53. Smith, BL; Krushelnycky, BW; Mochly-Rosen, D.; Berg, P. Protein Nef của HIV liên kết với Protein Kinase C Theta. J. Biol. Chem. 1996, 271, 16753–16757. [Tham khảo chéo]
54. Witte, V.; Lafferty, B.; Gintschel, P.; Krautkrämer, E.; Blume, K.; Fackler, Cựu Ước; Baur, AS Việc tạo ra sự phiên mã HIV của Nef liên quan đến việc kích hoạt Lck và tuyển dụng bè protein kinase Cθ dẫn đến kích hoạt ERK1/2 chứ không phải NFκB. J. Miễn dịch. 2009, 181, 3327. [Tham khảo chéo]
55. Janardhan, A.; Swigut, T.; Đồi, B.; Myers, nghị sĩ; Skowronski, J. HIV-1 Nef liên kết phức hợp DOCK2-ELMO1 để kích hoạt chủng tộc và ức chế hóa ứng động tế bào lympho. PLoS Biol. 2004, 2, E6. [Tham khảo chéo]
56. Olivetta, E.; Pietraforte, D.; Schiavoni, tôi.; Minetti, M.; Federico, M.; Sanchez, M. HIV-1 Nef điều chỉnh việc giải phóng các anion superoxide từ đại thực bào ở người. Hóa sinh. J. 2005, 390, 591–602. [Tham khảo chéo]
57. Turner, A.-MW; Dronamraju, R.; Potjewyd, F.; James, KS; Winecoff, DK; Kirchherr, JL; Archin, NM; Browne, EP; Strahl, BD; Margolis, DM; et al. Đánh giá các chất ức chế EED như một loại phân tử nhỏ được nhắm mục tiêu2-của PRC để đảo ngược độ trễ của HIV. ACS Lây Nhiễm. Dis. 2020, 6, 1719–1733. [Tham khảo chéo]
58. Ruiz-Riol, M.; Berdnik, D.; Llano, A.; Mothe, B.; Gálvez, C.; Pérez-Álvarez, S.; Oriol-Tordera, B.; Olvera, A.; Silva-Arrieta, S.; Meulbroek, M.; et al. Xác định Tiểu đơn vị thụ thể Alpha Interleukin-27 (IL-27)/IL{7}} là Trục miễn dịch quan trọng để kiểm soát HIV. J. Virus. 2017, 91, đ{10}}. [Tham khảo chéo]
59. Zheng, Y.-H.; Xiao, S.-L.; Anh ấy, B.; Chào.; Chu, H.-Y.; Chen, Z.; Zheng, L.-W.; Anh ấy, M.; Wang, H.-Y.; Lin, Y.-H.; et al. Vai trò của IL{7}} và Cơ quan thụ cảm của nó trong cơ chế bệnh sinh của HIV/AIDS và Phản ứng miễn dịch chống vi-rút. Curr. HIV Res. 2017, 15, 279–284. [Tham khảo chéo]
60. Zheng, CF; Jones, GJ; Thạch, M.; Nhà thông thái, JCD; Marr, KJ; Berenger, BM; Huston, SM; John Gill, M.; Krensky, AM; Kubes, P.; et al. Sự biểu hiện muộn của hạt bởi các tế bào T CD{1}} diệt vi khuẩn cần có sự biểu hiện phụ thuộc PI3K- và STAT5-của IL-2Rbeta vốn bị khiếm khuyết ở bệnh nhân nhiễm HIV. J. Miễn dịch. 2008, 180, 7221–7229. [Tham khảo chéo]
61. De Armas, LR; Gavegnano, C.; Pallikkuth, S.; Rinaldi, S.; Pan, L.; Battivelli, E.; Verdin, E.; Younis, RT; Pahwa, R.; Williams, SL; et al. Tác dụng của thuốc ức chế JAK1/2 đối với ổ chứa HIV bằng mô hình tế bào bạch huyết nguyên phát về độ trễ của HIV. Đằng trước. Miễn dịch. 2021, 12, 720697. [Tham khảo chéo]
62. Matusali, G.; Tchidjou, HK; Pontrelli, G.; Bernardi, S.; D'Ettorre, G.; Vullo, V.; Buônomini, AR; Andreoni, M.; Santoni, A.; Cerboni, C.; et al. Các phối tử hòa tan cho thụ thể NKG2D được giải phóng trong quá trình nhiễm HIV-1 và làm suy giảm biểu hiện NKG2D cũng như độc tính tế bào của tế bào NK. FASEB J. 2013, 27, 2440–2450. [Tham khảo chéo]
63. Abitew, AM; Sobti, RC; Sharma, VL; Wanchu, A. Phân tích chất vận chuyển liên quan đến đa hình gen trình bày kháng nguyên (TAP) khi nhiễm HIV{1}}. Mol. Hóa sinh tế bào. 2020, 464, 65–71. [Tham khảo chéo]
64. Ròm, S.; Pacifici, M.; Passiatore, G.; Khu vực, S.; Waligorska, A.; Del Valle, L.; Peruzzi, F. HIV-1 Tat liên kết với các miền SH3: Kết quả tế bào và virus của tương tác Tat/Grb2. Biochim. Sinh lý. Acta. 2011, 1813, 1836–1844. [Tham khảo chéo]
65. Fellay, J.; Shianna, KV; Ge, D.; Colombo, S.; Ledergerber, B.; Weale, M.; Trương, K.; Nướu, C.; Castagna, A.; Cossarizza, A.; et al. Một nghiên cứu liên kết toàn bộ bộ gen về các yếu tố chính quyết định khả năng kiểm soát HIV của vật chủ-1. Khoa học 2007, 317, 944–947. [Tham khảo chéo]
66. Lee, GQ; Orlova-Fink, N.; Einkauf, K.; Chowdhury, FZ; Mặt trời, X.; Harrington, S.; Kuo, H.-H.; Hứa, S.; Chen, H.-R.; Âu Dương, Z.; et al. Sự mở rộng dòng vô tính của HIV-1 nguyên vẹn bộ gen trong các tế bào T Th1 CD4+ phân cực chức năng. J. Lâm sàng. Đầu tư. 2017, 127, 2689–2696. [Tham khảo chéo]
67. Einkauf, KB; Lee, GQ; Gao, C.; Sharaf, R.; Mặt trời, X.; Hứa, S.; Chen, SMY; Giang, C.; Liên, X.; Chowdhury, FZ; et al. Các tiền virus HIV{1}} nguyên vẹn tích lũy ở các vị trí nhiễm sắc thể riêng biệt trong quá trình điều trị bằng thuốc kháng vi-rút kéo dài. J. Lâm sàng. Đầu tư. 2019, 129, 988–998. [Tham khảo chéo]