Các chủng Probiotic hữu hiệu và bị tiêu diệt bằng nhiệt cải thiện khả năng miễn dịch đường miệng bằng cách nâng cao nồng độ IgA trong niêm mạc miệng
Sep 11, 2023
trừu tượng
Khả năng miễn dịch niêm mạc miệng-mũi đóng một vai trò quan trọng trong việc bảo vệ cơ thể chống lại sự xâm nhập của vi khuẩn và virus. Các sản phẩm probiotic an toàn đã được sử dụng để tăng cường khả năng miễn dịch và sức khỏe răng miệng của con người. Trong nghiên cứu này, chúng tôi đã xác minh tác dụng có lợi của các viên probiotic khả thi hỗn hợp, bao gồm Lactobacillussalrius subsp. salicinius AP-32, Bifdobacteria Animalis subsp. lactis CP-9, và Lactobacillus paracasei ET-66, và các viên men vi sinh diệt nhiệt, bao gồm L.salvaryus subsp. salicinius AP-32 và L. paracasei ET-66, về khả năng miễn dịch qua đường miệng của 45 người tham gia khỏe mạnh. Những người tham gia được chia ngẫu nhiên thành các nhóm men vi sinh khả thi, men vi sinh diệt nhiệt và nhóm giả dược. Việc điều trị kéo dài trong 4 tuần. Các mẫu nước bọt được thu thập ở các Tuần 0, 2, 4 và 6, đồng thời đo các quần thể Lactobacillus, Bifidobacteria và Streptococcus mutans cũng như nồng độ IgA. Nồng độ IgA và mức độ TGF-beta và IL{15}} trong tế bào PBMC được định lượng bằng phương pháp ELISA. Kết quả cho thấy nồng độ IgA trong nước bọt tăng đáng kể khi sử dụng cả hai loại vi khuẩn sống (119,30±12,63%, ***P<0.001) and heat-killed (116.78±12.28%, ***P<0.001) probiotics for 4 weeks. Among three probiotic strains, AP-32 would effectively increase the levels of TGF-beta and IL-10 in PBMCs. The oral pathogen Streptococcus mutans was significantly reduced on viable probiotic tablet administration (49.60±31.01%, ***P<0.001). The in vitro antibacterial test confirmed that viable probiotics effectively limited the survival rate of oral pathogens. Thus, this clinical pilot study demonstrated that oral probiotic tablets both in viable form or heat-killed form could exert beneficial effects on oral immunity via IL-10, TGB-beta mediated IgA secretion. The effective dosage of viable probiotic content in the oral tablet was 109 CFUs/g and the heat-killed oral tablet was 1× 10¹⁰ cells/g.
lợi ích bổ sung cistanche-tăng khả năng miễn dịch
Giới thiệu
Niêm mạc miệng-mũi, cửa ngõ tiếp xúc với các kháng nguyên qua đường hô hấp, là tuyến phòng thủ đầu tiên của hệ thống miễn dịch của con người [1, 2]. Thông thường, virus hoặc vi khuẩn gây bệnh xâm nhập bề mặt niêm mạc của khoang miệng-mũi bằng cách chống lại hệ thống miễn dịch tại chỗ và hệ vi sinh vật khỏe mạnh [3]. Viêm và các triệu chứng, bao gồm ho, đau họng, sổ mũi và sốt, phát triển do phản ứng miễn dịch chống lại vi rút và vi khuẩn gây bệnh xâm lấn [4]. Ngoài ra, immunoglobulin A (IgA) là yếu tố miễn dịch chính trong nước bọt và điều chỉnh cân bằng nội môi của hệ vi sinh vật đường miệng [5]. Một số nghiên cứu đã báo cáo khả năng bài tiết IgA để bảo vệ cơ thể khỏi bị nhiễm các mầm bệnh virus, bao gồm virus hợp bào hô hấp [6], rotavirus [7] và virus cúm [7]. IgA bài tiết có chức năng bảo vệ biểu mô niêm mạc. Nicolas Millet và cộng sự. phát hiện ra rằng IgA niêm mạc có thể ngăn ngừa chứng rối loạn sinh lý Candida albicans hội sinh trong khoang miệng [8]. Nó cũng ngăn ngừa sự tích tụ của mầm bệnh Streptococcus mutans gây ra mảng bám răng [9].
Ngoài ra, các nhà nghiên cứu phát hiện ra rằng hệ vi sinh vật đường uống và các chất chuyển hóa của nó có thể ảnh hưởng cục bộ đến khả năng miễn dịch ở hàng rào miệng [10]. Các nghiên cứu trước đây đã chứng minh tính hiệu quả của men vi sinh trong việc nâng cao nồng độ IgA ở niêm mạc miệng [11]. Ericson và cộng sự. đã chứng minh rằng nhai kẹo cao su có chứa Lactobacillus reuteri tham gia vào phản ứng miễn dịch thích ứng của các đối tượng khỏe mạnh bằng cách tăng nồng độ IgA trong nước bọt [12]. Ở người, các cytokine miễn dịch TGF-beta và IL-10 có liên quan đến việc sản xuất IgA [13].
Tuy nhiên, liệu hệ vi khuẩn đường uống có làm tăng nồng độ IgA bài tiết thông qua cytokine TGF-beta và IL{1}} hay không vẫn chưa rõ ràng. Hơn nữa, các mầm bệnh đường miệng bao gồm S. mutans, P. gingivalis và F. nucleatum subsp. đa hình và A. Actinomycetemcomitans cho thấy mối tương quan cao với bệnh nha chu và hôi miệng [14]. Các sản phẩm probiotic có thể là một liệu pháp thay thế tiềm năng cho bệnh viêm nha chu bằng cách ức chế mầm bệnh đường miệng Fusobacter nucleatum, nhưng Porphyromonas gingivalis và Aggregatibacter Actinomycetemcomitans cho thấy không giảm đáng kể [15]. Bổ sung men vi sinh cũng có thể ngăn ngừa nhiễm trùng gây bệnh [16]. Đã có báo cáo cho rằng các loài vi sinh vật chủ chốt đã hạn chế sự phát triển của vi khuẩn Streptococcus pneumonia gây bệnh [17]. Do đó, duy trì hệ sinh thái vi sinh vật cân bằng thông qua việc hấp thu các chủng vi khuẩn có lợi có thể là một cách thay thế để điều chỉnh khả năng miễn dịch răng miệng và tăng cường sức khỏe răng miệng. Những phát hiện trước đây về sự ức chế mầm bệnh đường miệng của các chủng probiotic đã tiết lộ rằng Lactobacillussalrius subsp. salicinius AP-32, Bifdobacteria Animalis subsp. lactis CP-9 và Lactobacillus paracasei ET-66 có tác dụng kháng khuẩn tuyệt vời trong ống nghiệm; tuy nhiên không phải do cơ chế tăng nồng độ H2O2 [18]. Các chiến lược chính để các chủng probiotic hạn chế sự phát triển của mầm bệnh qua đường miệng là tập hợp các mầm bệnh qua đường miệng, tạo ra chất hoạt động bề mặt sinh học, thay đổi môi trường miệng và tạo ra các chất kháng khuẩn [19]. Ngoài ra, một nghiên cứu in vitro cho thấy rằng L. salicinius AP-32 biểu hiện cytokine gây viêm qua trung gian [interleukin (IL)-8, IL-10] trong tế bào biểu mô của con người [20]. Do đó, trong nghiên cứu này, chúng tôi đã xác minh xem liệu hỗn hợp các viên probiotic có khả năng tồn tại hay không, bao gồm L. Salvirius subsp. salicinius AP-32, B. Animalis subsp. lactis CP-9, và L. paracasei ET-66, và các viên men vi sinh diệt nhiệt, bao gồm L.salvaryus subsp. Salicinius AP-32 và L. paracasei ET-66, cải thiện chức năng miễn dịch thông qua TGF-beta, IL-10 hoặc nâng cao nồng độ IgA trong nước bọt. Chức năng chống vi khuẩn của sự hấp thu sản phẩm probiotic trong khoang miệng đã được thử nghiệm.
lợi ích bổ sung cistanche-làm thế nào để tăng cường hệ thống miễn dịch
Nhấn vào đây để xem các sản phẩm Tăng cường miễn dịch Cistanche
【Hỏi thêm] Email:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Vật liệu và phương pháp
Những người tham gia
Tổng cộng, 45 người tham gia khỏe mạnh ở độ tuổi 2{7}}–40 đã được tuyển chọn và chia ngẫu nhiên thành ba nhóm nhỏ: viên uống lợi khuẩn có tác dụng, viên uống lợi khuẩn diệt nhiệt và nhóm giả dược. Mỗi nhóm bao gồm 15 người tham gia. Những người tham gia có thói quen hút thuốc và ăn trầu đã bị loại trừ. Viên uống được chỉ định một cách mù quáng cho những người tham gia. Tất cả những người tham gia đều uống thuốc ba lần một ngày (sáng, trưa và tối) trong 4 tuần. Các mẫu nước bọt (2 mL) được thu thập để đo nồng độ IgA và quần thể vi sinh vật ở Tuần 0, 2, 4 và 6. Đã có sự đồng ý từ tất cả những người tham gia trong nghiên cứu này. Giao thức đã được phê duyệt bởi Hội đồng Đánh giá Thể chế của Đại học Y Chung Shan, Đài Loan (CS19052).
Viên uống Probiotic khả thi
Viên uống lợi khuẩn hữu hiệu (1 g) chứa ba chủng lợi khuẩn hữu hiệu, L. Salvaryus subsp. salicinius AP-32, B. Animalis subsp. lactis CP-9 và L. paracasei ET-66. Chúng tôi đã trộn 0.01 g của 1011 đơn vị hình thành khuẩn lạc (CFU) trong viên uống. Mỗi chủng probiotic đơn lẻ được đo khoảng 0,33 * 109CFU/g. Tổng hàm lượng probiotic trong viên uống là 109 khuẩn lạc CFU/g. Liều lượng hoạt động của viên uống probiotic được thực hiện theo các công trình đã được công bố trước đó [18]. Tất cả các chủng probiotic được lấy từ phòng thí nghiệm của Biofag Biotech Co., Ltd. (Đài Nam, Đài Loan). L. Salivarius subsp. salicinius AP-32 được phân lập từ ruột người khỏe mạnh và gửi tại Viện Nghiên cứu và Phát triển Công nghiệp Thực phẩm, Đài Loan (ID: BCRC 910437) và tại Đại học Vũ Hán, Trung Quốc (ID: CTCCC-M2011127); B. Animalis subsp. lactic CP-9 được phân lập từ sữa mẹ khỏe mạnh và gửi tại Viện Nghiên cứu và Phát triển Công nghiệp Thực phẩm, Đài Loan (ID: BCRC 910645) và tại Đại học Vũ Hán (ID: CTCCC-M2014588); L. paracasei ET-66 được phân lập từ sữa mẹ khỏe mạnh và gửi tại Viện Nghiên cứu và Phát triển Công nghiệp Thực phẩm, Đài Loan (ID: BCRC 910753) và tại Trung tâm Thu thập Văn hóa Vi sinh Tổng hợp Trung Quốc, Bắc Kinh, Trung Quốc (ID: CGMCC{ {22}}). Lactobacillus. nước bọt subsp. salicinius AP-32 và L. paracasei ET-66 được nuôi cấy trên đĩa thạch de Man, Rogosa và Sharpe (MRS) (110.660, Merck, Darmstadt, Đức) và được ủ trong điều kiện kỵ khí tùy ý ở 37 độ trong 48 giờ. B. Animalis subsp. Lactis CP{29}} được nuôi cấy trên môi trường thạch MRS có bổ sung 0,05% cysteine và ủ kỵ khí ở 37 độ trong 48 giờ. Việc đếm khuẩn lạc được thực hiện để định lượng CFU vi khuẩn sau khi nuôi cấy các chủng probiotic [18].

cistanche thực vật tăng cường hệ thống miễn dịch
Viên nén uống Probiotic diệt nhiệt
Viên uống probiotic diệt khuẩn bằng nhiệt (1 g) bao gồm L. Salvaryus subsp. salicinius AP-32 và L. paracasei ET-66. Các chủng khả thi được nuôi cấy và ủ, như mô tả trước đây. Sau đó, AP-32 và ET-66 bị bất hoạt bằng cách ủ các chủng sống sót trong môi trường MRS ở 100 độ trong 1 giờ. Hàm lượng probiotic trong viên uống là 1×10¹⁰ tế bào/g. Liều lượng hoạt động của viên uống probiotic diệt nhiệt tuân theo thử nghiệm in vitro đã được công bố trước đó [11]. Tất cả các quy trình thí nghiệm được thực hiện trong phòng thí nghiệm của Biofag Biotech Co., Ltd. (Đài Nam, Đài Loan).
Đo quần thể Lactobacillus và Bifidobacteria trong mẫu nước bọt
Các mẫu nước bọt (2 mL) được thu thập từ mỗi người tham gia vào Tuần 0, 2, 4 và 6. Các mẫu nước bọt (100 µL) đã được pha loãng liên tục và thêm vào MRS tấm. Để đo quần thể Lactobacillus, Lactobacillus được nuôi cấy và ủ trên đĩa thạch MRS trong điều kiện kỵ khí tùy ý ở 37 độ trong 48 giờ. Để đo quần thể Bifdobacteria, Bifdobacteria được nuôi cấy và ủ kỵ khí trên môi trường thạch MRS có bổ sung 0,05% cysteine ở 37 độ trong 48 giờ. Việc đếm khuẩn lạc được thực hiện để định lượng CFU vi khuẩn sau khi nuôi cấy các chủng vi khuẩn có lợi. Tỷ lệ quần thể Lactobacillus và Bifidobacteria đã được chuẩn hóa thành số lượng quần thể men vi sinh ở Tuần 0. Tỷ lệ quần thể Lactobacillus và Bifidobacteria được thu thập ở Tuần 0 được coi là 100%. Phương pháp thử nghiệm theo sau các công trình đã được công bố trước đó [18].
Đo nồng độ IgA ở niêm mạc miệng
Các mẫu nước bọt (2 mL) được thu thập từ mỗi người tham gia ở Tuần 0, 2, 4 và 6 và duy trì ở mức 20 độ. Bộ ELISA không tráng phủ IgA ở người (Danh mục # 88-50600-88; Invitrogen, Thermo Fisher Scientific, San Jose, CA, USA) đã được sử dụng để phân tích nồng độ IgA. Đầu tiên, chúng tôi phủ kháng thể IgA kháng người lên đĩa giếng 96-. IgA nước bọt có trong mẫu hoặc chất chuẩn được thêm vào microwell, sau đó kháng thể IgA kháng người liên hợp HRP được thêm vào ở nhiệt độ phòng trong 1 giờ. Hút cơ chất TMB vào từng giếng trong 30 phút. Cuối cùng, sự phối hợp IgA được đo trên máy đo quang phổ ở bước sóng 450 nm. Tất cả các quy trình thí nghiệm được thực hiện ba lần, theo hướng dẫn của nhà sản xuất. Tỷ lệ nồng độ IgA thu được ở Tuần 0 được coi là 100%. Phương pháp thử nghiệm theo sau các công trình đã được công bố trước đó [18].

cistanche tubulosa-cải thiện hệ thống miễn dịch
Đo nồng độ TGF-Beta và IL-10 trong PBMC
Việc kiểm tra mức độ tăng TGF-beta và IL{2}} do men vi sinh gây ra sau nghiên cứu trước đó [20]. Các tế bào đơn nhân máu ngoại vi (PBMC) được lấy từ mẫu máu của những người hiến tặng khỏe mạnh (Trung tâm Máu Đài Nam, Tổ chức Dịch vụ Máu Đài Loan). Ly tâm máu toàn phần thông qua gradient Ficoll-Hypaque (Pharmacia, Thụy Điển) và phần mật độ ánh sáng từ bề mặt phân cách 42,5%-50% đã được rửa giải. Gieo tế bào PBMC 4 * 105 tế bào được chiết xuất trong 100 µl RPMI{12}} với 1% FBS (Sigma Chemical Co., St. Louis, MO, USA) vào mỗi giếng của đĩa 96 giếng. Sau đó thêm 5 * 105 cfu/20 µl xử lý probiotic vào mỗi PBMC được gieo hạt tốt (tế bào: chủng probiotic=1:10). Các biện pháp kiểm soát tích cực đã thêm 10 µg/ml Phytohaemagglutinin (PHA) (Sigma-Aldrich, Munich, Đức) vào các giếng gieo hạt của PBMC để sản xuất TGF-, IL-10 tương ứng [21]. Nuôi cấy men vi sinh với PBMC trong 48 giờ. Đo chất nổi phía trên có chứa cytokine IL-10 và TGF- bằng phân tích xét nghiệm hấp thụ miễn dịch liên kết enzyme (ELISA) (Thermo Scientific, Carlsbad, CA, USA). Tất cả các thí nghiệm đã được đo lường và tuân theo giao thức thương mại ít nhất ba lần.
Đánh giá chức năng kháng khuẩn trong khoang miệng
Streptococcus mutans là một mối đe dọa sức khỏe răng miệng phổ biến, gây sâu răng bằng cách hình thành bệnh dịch hạch hoặc màng sinh học [22]. Các mẫu Streptococcus mutans được thu thập từ các miếng gạc, qua đó chúng tôi thu thập S. mutans trên phần trên nướu, nướu và niêm mạc miệng vào các Tuần 0, 2, 4 và 6. S. mutans được duy trì trong tryptic nước luộc đậu nành (TSB, 5 mL) được bổ sung 50% glycerol. Môi trường S. mutans được pha loãng theo thứ tự và thêm vào đĩa Mitis Salivarius-Bacitracin Agar (MSBA, 0.2 U/mL), được ủ ở 37 độ trong 2 ngày. Cuối cùng, số lượng khuẩn lạc S. mutans trong mỗi mẫu người tham gia được tính để tính tỷ lệ sống sót gây bệnh; tỷ lệ sống sót của S. mutans thu được ở Tuần 0 được coi là 100%. Phương pháp thử nghiệm theo sau các công trình đã được công bố trước đó [18].
Hoạt tính kháng khuẩn trong ống nghiệm của viên uống
Oral tablets (1 g) that contained viable (AP-32, CP-9, and ET-66; > 109 CFUs) and heat-killed (AP-32 and ET-66,>1010 CFU) chủng vi khuẩn có lợi được hòa tan trong môi trường TSB và môi trường truyền tim não tương ứng để thu được nồng độ cuối cùng là 0,1 g/mL. Chỉ có môi trường được sử dụng cho nhóm trống, trong khi viên nén (1 g) không có bất kỳ thành phần lợi khuẩn nào được hòa tan trong môi trường tương ứng cho nhóm giả dược. Sau đó, các mầm bệnh đường miệng (106 CFU) được đưa vào dung dịch viên nén và được ủ đồng thời ở 37 độ đối với 2 (S. mutans) hoặc 3 (Porphyromonas gingivalis, Fusobacter nucleatum subsp. polymorphum và Aggregatibacter Actinomy cetemcomitans) d. Các mầm bệnh được lấy từ BCRC. Tỷ lệ ức chế mầm bệnh qua đường miệng (%) được tính như sau: (nhóm thử nghiệm CFUblank đối chứng)/CFUblank kiểm soát. Phương pháp thử nghiệm tuân theo thử nghiệm đã được công bố trước đó [11].
Phân tích thống kê
Phần mềm GraphPad Prism được sử dụng để phân tích thống kê kết quả kiểm tra t hai phía. Dữ liệu được trình bày dưới dạng độ lệch chuẩn trung bình (SD) hoặc giá trị trung bình của kết quả của hai hoặc ba thí nghiệm độc lập. Sự khác biệt thống kê được coi là có ý nghĩa ở giá trị P<0.05.
Kết quả
Viên nén Probiotic làm tăng quần thể Bifidobacteria trong khoang miệng
Quần thể Bifidobacteria tăng lên ổn định trong khoang miệng sau khi dùng viên nén probiotic. Quần thể vi khuẩn sau khi điều trị đã được chuẩn hóa bởi quần thể vi khuẩn trước khi điều trị (Tỷ lệ quần thể%=CFU sau điều trị/CFU trước điều trị). Ở nhóm lợi khuẩn khả thi, tỷ lệ quần thể tăng đáng kể lên 244,14±164,96% ở Tuần 2 (**P<0.01, Fig. 1a) and 438.41±308.58 at Week 4 (***P<0.001), compared to Week 0. The Bifidobacterium population rate remained high at Week 6 (no administration of viable probiotic tablets for 2 weeks after Week 4, 550.16±448.19%, ***P<0.001), compared to Week 0. The Bifidobacterium population number was significantly different between the viable probiotic and placebo groups at Week 6 (**P<0.01). In the heat-killed probiotic group, the Bifidobacterium population was increased at Weeks 2 (149.92±60.47%, **P<0.01) and 4 (199.87±148.64%, *P<0.05), but was decreased at Week 6 after administration of the heat-killed probiotic tablets was stopped for 2 weeks (182.98±163.73%, Fig. 1a).
Viên nén Probiotic làm tăng quần thể Lactobacillus trong khoang miệng
Sự thay đổi về quần thể Lactobacillus đường uống do sử dụng viên probiotic cho thấy một mô hình tương tự như sự thay đổi về quần thể Bifidobacteria đường uống. Quần thể vi khuẩn sau khi điều trị đã được bình thường hóa bởi quần thể vi khuẩn trước khi điều trị. Trong nhóm probiotic khả thi, tỷ lệ quần thể Lactobacillus tăng đáng kể lên 447,74±337,89% ở Tuần 2 (**P<0.01, Fig. 1b) and 982.27±726.66% at Week 4 (***P<0.001), compared to Week 0. The Lactobacillus population rate was higher at Week 6 (no administration of viable probiotic tablets for 2 weeks after Week 4, 727.57±539.76%, ***P<0.001) than at Week 0. The Lactobacillus population number was significantly different between the viable probiotic and placebo groups at Week 6 (***P<0.001). In the heat-killed probiotic group, the Lactobacillus population was increased at Weeks 2 (256.66±183.78%, **P<0.01) and 4 (312.85 ± 279.71%, *P < 0.05). Additionally, the Lactobacillus number remained but showed no significant difference at Week 6 after the administration of heat-killed probiotics was stopped for 2 weeks (208.00±199.50%, Fig. 1b).

Hình 1. Phép đo quần thể Bifidobacteria trên bề mặt niêm mạc miệng. Viên nén probiotic hữu hiệu V; Viên probiotic bất hoạt diệt nhiệt H; Viên giả dược C (đối chứng); và vi khuẩn axit lactic LAB. Việc thu thập và phân tích các mẫu nước bọt ở Tuần 0, 2, 4 và 6 đã được thực hiện. Dữ liệu được trình bày dưới dạng độ lệch chuẩn trung bình (SD). T- test hai đuôi được sử dụng để phân tích sự khác biệt thống kê. Ý nghĩa thống kê được đánh dấu *P<0.05, **P<0.01, ***P<0.001. b Measurement of Lactobacillus populations on the oral mucosal surfaces. V viable probiotic tablets; H heat-killed inactivated probiotic tablets; C placebo tablets (control); and LAB lactic acid bacteria. Collection and analysis of salivary samples at Weeks 0, 2, 4, and 6 were performed. Data were presented as the mean standard deviation (SD). A two-tailed t-test was used to analyze statistical differences. Statistical significances were marked with *P<0.05, **P<0.01, ***P<0.001
Viên nén Probiotic chứa AP-32, ET-66 và CP-9 làm tăng đáng kể nồng độ IgA trong niêm mạc miệng
Vì việc tiêu thụ viên probiotic (còn sống hoặc diệt nhiệt) đã được chứng minh là làm tăng nồng độ Bifidobacteria và Lactobacillus trong khoang miệng, chúng tôi đã phân tích thêm sự thay đổi nồng độ IgA trong nước bọt, xảy ra do sự hấp thu của các sản phẩm probiotic. Nồng độ IgA sau khi điều trị đã được bình thường hóa bằng nồng độ IgA trước khi điều trị. Trong nhóm sử dụng men vi sinh khả thi, nồng độ IgA trong nước bọt tăng nhẹ lên 1{19}}3,24 ± 8,10% ở Tuần 2 (Hình 2) và 104,81 ± 13,26 ở Tuần 4, nhưng không có sự khác biệt có ý nghĩa thống kê. Tuy nhiên, nồng độ IgA trong nước bọt ở nhóm sử dụng men vi sinh khả thi, so với nhóm dùng giả dược, đã tăng đáng kể lên 119,30 ± 12,63% ở Tuần 6 (không dùng viên chứa men vi sinh khả thi trong 2 tuần sau Tuần 4), so với Tuần 0 ( ***P<0.001). Furthermore, in the heat-killed probiotic group, the salivary IgA concentration was slightly increased at Weeks 2 (102.51± 7.20%) and 4 (104.35 ± 10.27%). The saliva IgA concentration was increased at Week 6 (116.78 ± 12.28%, ***P < 0.001, Fig. 2), compared to Week 0.
Các chủng khả thi đã tăng mức IL-10 và TGF-Beta trong PBMC
Việc kiểm soát dương tính với 10 µg/ml Phytohaemagglutinin (PHA) đã nâng cao thành công nồng độ IL-10 (58,2 ± 7,9 pg/ml, ***P < 0,001, Hình 3a) và TGF- (53,4±8 pg/ml, ***P<0.001, Fig. 3b) in PBMCs by comparing to the negative control (PBMCs treated with medium only). Viable strains of CP-9, AP-32 and ET-66 signifcantly increased the levels of IL-10 in PBMCs to 84.2±9 pg/ml (***P<0.001, ##P<0.01), 303.1±170.9 pg/ml (*P<0.05, ##P<0.01) and 98.2±17.5 pg/ml (***P<0.01, ##P<0.01), respectively. Symbol *indicated a significant difference by comparing to the medium-treated control; symbol #indicated a significant difference by comparing to the PHA control (Fig. 3a). Besides, viable strains of CP-9, AP-32, and ET-66 significantly increased the levels of TGF-beta in PBMCs to 23.2 ± 4.7 pg/ml (***P < 0.001), 130.9 ± 16 pg/ ml (***P < 0.001, ###P < 0.001) and 31.4 ± 5.5 pg/ml (***P<0.01), respectively (Fig. 3b).

Hình 2 Nồng độ globulin miễn dịch A (IgA) trong mẫu nước bọt. Viên nén probiotic hữu hiệu V; Viên probiotic bất hoạt diệt nhiệt H; Viên giả dược C (đối chứng); và vi khuẩn axit lactic LAB. Việc thu thập và phân tích các mẫu nước bọt ở Tuần 0, 2, 4 và 6 đã được thực hiện. Dữ liệu được trình bày dưới dạng độ lệch chuẩn trung bình (SD). T- test hai đuôi được sử dụng để phân tích sự khác biệt thống kê. Thống kê
Viên nén Probiotic chứa AP-32, ET-66 và CP-9 đã cấm quần thể S. mutans trong nước bọt
Quần thể Bifidobacteria và Lactobacillus tăng cao và nồng độ IgA trong nước bọt tăng lên có thể góp phần vào cuộc chiến chống lại các vi sinh vật gây bệnh đường miệng. Trong thí nghiệm tiếp theo, chúng tôi đã thử nghiệm sự thay đổi trong quần thể mầm bệnh S. mutans qua đường miệng do sự can thiệp của men vi sinh. Quần thể vi khuẩn sau khi điều trị đã được bình thường hóa bởi quần thể vi khuẩn trước khi điều trị. Trong nhóm chế phẩm sinh học khả thi, quần thể S. mutans giảm đáng kể ở Tuần 2 (53,55±31,60%, ***P<0.001), 4 (49.60±31.01%, ***P<0.001), and 6 (55.19±42.72%, **P<0.01, Fig. 4). At week 6, S. mutans was significantly inhibited in the viable probiotic group (55.19±42.72%, ***P<0.001), compared to in the placebo group. Furthermore, in the heat-killed probiotic group, the S. mutans population was slightly decreased at Week 2 (85.81±49.87%) and significantly reduced at Week 4 (58.35 ± 33.17%, ***P<0.001). The S. mutans population level in the heat-killed probiotic group (202.81±167.99%) reverted to that in the placebo group (225.05±127.01%) at Week 6 (no administration of heat-killed probiotic tablets for 2 weeks from Week 4) (Fig. 4).

Hình 3. Các chủng khả thi đã làm tăng nồng độ IL-10 và TGF-beta trong PBMC. Mức IL-10 và b TGF-beta trong PBMC đã được kiểm tra bằng cách xử lý các chủng vi khuẩn có lợi. Thêm 5 * 105 cfu/20 µl các chủng CP-9, AP-32 và ET-66 khả thi vào PMBC 10 µg/ml. Phytohaemagglutinin (PHA) được sử dụng làm đối chứng dương tính. Đối chứng âm là PBMC chỉ được xử lý bằng môi trường RMPI{12}}. Các thử nghiệm ba lần đã được thực hiện. Dữ liệu được trình bày dưới dạng độ lệch chuẩn trung bình (SD). T- test hai đuôi được sử dụng để phân tích sự khác biệt thống kê. Ý nghĩa thống kê được đánh dấu bằng P<0.05, P<0.01, P<0.001. The symbol *indicated a significant difference by comparing to the medium-treated control; symbol #indicated significant difference by comparing to the PHA control

Hình 4 Đo lường quần thể Streptococcus mutans gây bệnh trên bề mặt niêm mạc miệng. Viên nén probiotic hữu hiệu V; Viên probiotic bất hoạt diệt nhiệt H; Viên giả dược C (đối chứng); và vi khuẩn axit lactic LAB. Việc thu thập và phân tích các mẫu nước bọt ở Tuần 0, 2, 4 và 6 đã được thực hiện. Dữ liệu được trình bày dưới dạng độ lệch chuẩn trung bình (SD). T- test hai đuôi được sử dụng để phân tích sự khác biệt thống kê. Ý nghĩa thống kê được đánh dấu * P<0.05, **P<0.01, ***P<0.001
Khẳng định khả năng ức chế sự phát triển của mầm bệnh đường miệng của viên Probiotic bằng thử nghiệm in vitro
Nghiên cứu in vitro cho thấy viên nén probiotic hữu hiệu đã ức chế đáng kể tỷ lệ sống sót của mầm bệnh đường miệng (Hình 5a). Quần thể vi khuẩn sau khi điều trị đã được bình thường hóa bởi quần thể vi khuẩn trước khi điều trị. Tỷ lệ sống sót của S. mutans, P. gingivalis, F. nucleatum và A. Actinomy cetemcomitans trong nhóm probiotic khả thi, so với nhóm dùng giả dược, đã giảm xuống 4,23% (***P < 0 .001, giả dược=91%), 8,64% (***P < 0,001, giả dược=89%), 5,77% (**P<0.01, placebo=98%), and 6.23% (**P<0.01, placebo=87%), respectively. However, the heat-killed probiotic tablet exerted weaker antibacterial effects than the viable probiotic tablet (Fig. 5b). The survival rate of S. mutans, P. gingivalis, F. nucleatum, and A. antinomy cetemcomitans in the heat-killed probiotic group, compared to in the placebo group, was slightly decreased without statistical significance (82%, placebo=91%), significantly reduced to 53% (*P<0.05, placebo=89%), not inhibited (96.88%, placebo=98%), and significantly reduced to 80% (**P<0.01, placebo=87%), respectively.
Cuộc thảo luận
So với nhóm dùng giả dược, quần thể Lactobacillus và Bifidobacteria qua đường uống sẽ tăng đáng kể bằng cách cho ăn những viên probiotic hữu hiệu hoặc những viên probiotic diệt nhiệt trong 4 tuần. Ngoài ra, số lượng Lactobacillus và Bifidobacteria vẫn ở mức cao đáng kể trong 2 tuần sau khi ngừng tiêu thụ men vi sinh khả thi (Hình 1a và b). Tương tự, Camila Casuccio Almeida et al. đã chứng minh rằng việc điều trị bằng men vi sinh trong bốn tuần có thể duy trì các triệu chứng cải thiện ở những bệnh nhân không dung nạp lactose trong ít nhất 3 tháng sau khi ngừng tiêu thụ men vi sinh [23]. Tuy nhiên, tác dụng lâu dài của men vi sinh trong điều trị lâu dài cần được đánh giá trong tương lai. Ngoài ra, nồng độ IgA trong nước bọt tăng lên đáng kể khi sử dụng viên probiotic diệt khuẩn và hữu hiệu. Cả hai nhóm probiotic diệt nhiệt và probiotic sống đều làm tăng IgA trong nước bọt bằng cách cho dùng viên uống trong 4 tuần, nhưng không cho thấy sự khác biệt về mặt thống kê so với giả dược. Nồng độ IgA trong các nhóm men vi sinh sống và bị tiêu diệt nhiệt cho thấy sự gia tăng đáng kể ở Tuần 6. Tuy nhiên, cơ chế tăng IgA sau khi ngừng sử dụng men vi sinh trong 2 tuần cần được nghiên cứu thêm (Hình 2) Braathen et al. báo cáo kết quả tương tự về vai trò điều chỉnh miễn dịch của các chủng probiotic trong khoang miệng [24]. Ngoài ra, các chủng probiotic đã được báo cáo là làm tăng đáng kể nồng độ IgA trong phân ở heo nái và heo con [25]. Tuy nhiên, các nghiên cứu về triệu chứng làm giảm IgA trong nhiễm trùng đường hô hấp trên vẫn chưa đầy đủ. Cơ chế phân tử chi tiết về ức chế và ngăn ngừa nhiễm trùng đường hô hấp trên của các chủng vi khuẩn CP-9, AP-32 và ET-66 có thể được nghiên cứu trong các nghiên cứu trong tương lai. Trong nghiên cứu hiện tại, các chủng CP-9, AP-32 và ET-66 khả thi sẽ nâng cao mức IL-10 và TFG-beta trong các tế bào PBMC. AP-32 cho thấy khả năng hiệu quả trong việc tăng IL-10 và TFG-beta trong PBMC bằng cách so sánh chúng với biện pháp kiểm soát dương tính PHA (Hình 3a và b). Người ta cho rằng các chủng CP-9, AP-32 và ET-66 khả thi có thể khiến tế bào B tiết IL-10 và TFG-beta để tăng nồng độ IgA trong nước bọt. Tuy nhiên, mối tương quan giữa IL-10 nước bọt, TFG-beta và IgA nước bọt cần được kiểm tra thêm [26]. Ngoài ra, liệu men vi sinh diệt khuẩn có làm tăng IgA thông qua việc tạo ra IL{40}} và TFG-beta hay không vẫn chưa rõ ràng. Một thử nghiệm trong ống nghiệm chỉ ra rằng AP-32 bị tiêu diệt nhiệt đã thúc đẩy sự bài tiết interferon- và IL{45}}p70 và làm giảm mức IL-13 [27]. Do đó, trong nghiên cứu lâm sàng này, khả năng của các chủng vi khuẩn CP-9, AP-32 và ET-66 cũng như các chủng AP-32 và ET-66 bị diệt nhiệt các chủng ức chế vi khuẩn gây bệnh trong khoang miệng đã được xác nhận thêm (Hình 4). Viên ngậm probiotic hữu hiệu có khả năng chống mầm bệnh tốt hơn so với viên ngậm diệt nhiệt thông qua việc tiết ra axit hữu cơ, peptide kháng khuẩn [28], exopolysaccharides (EPS) [29] bacteriocin [30] (Hình 5a và b). Các thành phần kháng khuẩn chức năng được tạo ra bởi các chủng vi khuẩn có lợi nên được phát hiện bằng sắc ký lỏng hiệu năng cao (HPLC) và sắc ký lỏng (LC) –khối phổ trong tương lai [31]. Có báo cáo cho rằng chế phẩm sinh học diệt khuẩn bằng nhiệt sở hữu những ưu điểm chính của chế phẩm sinh học hữu hiệu nhưng không có những lo ngại nhất định về an toàn đối với các chủng vi sinh vật hữu hiệu [32]. Tuy nhiên, thành phần kháng khuẩn của men vi sinh diệt nhiệt cần được xác minh thêm.
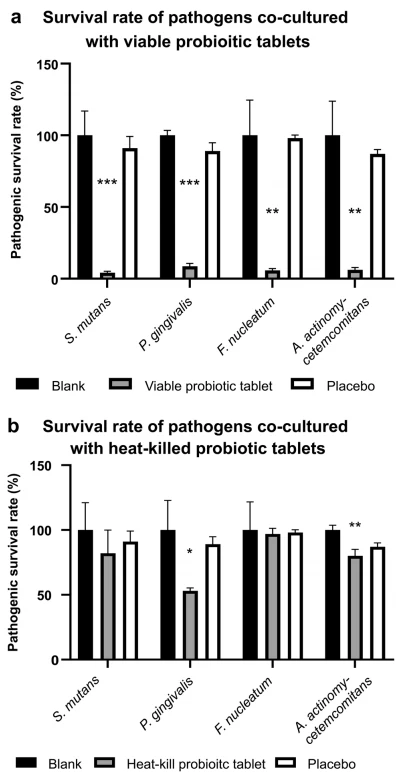
Hình 5 Xác nhận khả năng ức chế sự phát triển của mầm bệnh đường miệng của viên probiotic bằng thử nghiệm in vitro. Khả năng của các viên men vi sinh hữu hiệu và diệt nhiệt để ức chế tỷ lệ sống sót của mầm bệnh đường miệng, bao gồm Streptococcus mutans, Porphyromonas gingivalis, Fusobacteria nucleatum và Aggregatibacter Actinomycetemcomitans, đã được xác nhận. Nhóm trống, chỉ ở mức trung bình; nhóm giả dược, viên nén (1 g) không có thành phần probiotic. Các thử nghiệm ba lần đã được thực hiện. Dữ liệu được trình bày dưới dạng độ lệch chuẩn trung bình (SD). T- test hai đuôi được sử dụng để phân tích sự khác biệt thống kê. Ý nghĩa thống kê được đánh dấu * P<0.05, **P<0.01, ***P<0.001
Phần kết luận
Viên nén probiotic hữu hiệu hỗn hợp, bao gồm L. Salvary subsp. salicinius AP-32, B. Animalis subsp. lactic CP-9 và L. paracasei ET-66, cũng như các chế phẩm sinh học diệt khuẩn do nhiệt, bao gồm cả L.salvaryus subsp. salicinius AP-32 và L. paracasei ET-66, đã phát huy các chức năng có lợi của chúng bằng cách nâng cao quần thể Lactobacillus và Bifdobacteria trong miệng, giảm S. mutans trong khoang miệng và tăng nồng độ IgA trong nước bọt ở những người tham gia khỏe mạnh. Kết quả thử nghiệm in vitro đã xác nhận rằng chế phẩm sinh học hữu hiệu ức chế hiệu quả mầm bệnh đường miệng, bao gồm S. mutans, P. gingivalis và F. nucleatum subsp. tính đa hình và A. Actinomycetemcomitans. Miễn dịch niêm mạc miệng-mũi là tuyến phòng thủ chống lại các vi sinh vật xâm nhập và điều này đã trở thành một vấn đề quan trọng. Vì vậy, nghiên cứu này sẽ đưa ra một chiến lược thay thế (bổ sung men vi sinh) để duy trì khả năng miễn dịch răng miệng và sức khỏe răng miệng.

lợi ích bổ sung cistanche-làm thế nào để tăng cường hệ thống miễn dịch
Người giới thiệu
1. Takaki H, Ichimiya S, Matsumoto M, Seya T (2018) Phản ứng miễn dịch niêm mạc ở mô bạch huyết liên quan đến mũi khi dùng tá chất qua đường mũi. J Miễn dịch bẩm sinh 10(5–6):515–521
2. Wu RQ, Zhang DF, Tu E, Chen QM, Chen WJ (2014) Hệ thống miễn dịch niêm mạc trong khoang miệng—một dàn nhạc đa dạng của tế bào T. Int J Khoa học miệng 6(3):125–132
3. Man WH, de Steenhuijsen Piters WAA, Bogaert D (2017) Hệ vi sinh vật của đường hô hấp: người gác cổng cho sức khỏe hô hấp. Nat Rev Microbiol 15(5):259–270
4. Wald ER, Guerra N, Byers C (1991) Nhiễm trùng đường hô hấp trên ở trẻ nhỏ: thời gian và tần suất biến chứng. Nhi khoa 87(2):129–133
5. Marcotte H, Lavoie MC (1998) Sinh thái vi khuẩn đường miệng và vai trò của globulin miễn dịch nước bọt A. Microbiol Mol Biol Rev 62(1):71–109
6. Weltzin R, Traina-Dorge V, Soike K, Zhang JY, Mack P, Soman G và cộng sự (1996) Kháng thể IgA đơn dòng nội sọ chống lại virus hợp bào hô hấp bảo vệ khỉ rhesus chống lại nhiễm trùng đường hô hấp trên và dưới. J Lây nhiễm Dis 174(2):256–261
7. Ruggeri FM, Johansen K, Basile G, Kraehenbuhl JP, Svensson L (1998) Antirotavirus immunoglobulin A vô hiệu hóa virus trong ống nghiệm sau quá trình chuyển bào qua tế bào biểu mô và bảo vệ chuột sơ sinh khỏi bệnh tiêu chảy. J vi rút 72(4):2708–2714
8. Millet N, Solis NV, Swidergall M (2020) IgA niêm mạc ngăn ngừa chứng rối loạn sinh lý hội sinh Candida albicans trong khoang miệng. Mặt trận miễn dịch 11:2448
9. Katz J, Harmon CC, Buckner GP, Richardson GJ, Russell MW, Michalek SM (1993) Globulin miễn dịch nước bọt bảo vệ A phản ứng chống lại nhiễm trùng Streptococcus mutans sau khi tiêm chủng nội sọ bằng kháng nguyên S. mutans I/II kết hợp với tiểu đơn vị B của độc tố dịch tả . Lây nhiễm miễn dịch 61(5):1964–1971
10. Moutsopoulos NM, Konkel JE (2018) Miễn dịch đặc hiệu mô ở hàng rào niêm mạc miệng. Xu hướng Miễn dịch 39(4):276–287
11. Lin CW, Chen YT, Ho HH, Hsieh PS, Kuo YW, Lin JH, Liu CR, Huang YF, Chen CW, Hsu CH, Lin WY, Yang SF (2021) Lozengines với các chủng probiotic tăng cường sức khỏe và phản ứng miễn dịch răng miệng . Truyền miệng Dis. https://doi.org/10.1111/odi.13854
12. Ericson D, Hamberg K, Bratthall G, Sinkiewicz-Enggren G, Ljunggren L (2013) Phản ứng của IgA nước bọt đối với vi khuẩn probiotic và streptococci đột biến sau khi sử dụng kẹo cao su có chứa Lactobacillus reuteri. Bệnh dịch Dis 68(3):82–87
13. Defrance T, Vanbervliet B, Briere F, Durand I, Rousset F, Banchereau J (1992) Interleukin 10 và yếu tố tăng trưởng biến đổi beta hợp tác để tạo ra các tế bào B ngây thơ được kích hoạt chống CD{4}}để tiết ra globulin miễn dịch A. J Exp Med 175(3):671–682
14. Papone V, Verolo C, Zafaroni L, Batlle A, Capo C, Bueno L và cộng sự (2015) Phát hiện và phổ biến mầm bệnh nha chu ở cộng đồng người Uruguay mắc bệnh viêm nha chu mãn tính bằng phương pháp thông thường và metagenomics. Nha khoa răng miệng 17(25):23–32
15. Butera A, Gallo S, Maiorani C, Molino D, Chiesa A, Preda C, Scribante A (2021) Probiotic thay thế chlorhexidine trong liệu pháp nha chu: đánh giá các thông số lâm sàng và vi sinh. Vi sinh vật 9(1):69
16. Wang Y, Li X, Ge T, Xiao Y, Liao Y, Cui Y và cộng sự (2016) Probiotic trong phòng ngừa và điều trị nhiễm trùng đường hô hấp ở trẻ em: tổng quan hệ thống và phân tích tổng hợp các thử nghiệm ngẫu nhiên có đối chứng. Thuốc 95(31):e4509. https://doi.org/10.1097/ MD.0000000000004509
17. Laufer AS, Metlay JP, Gent JF, Fennie KP, Kong Y, Pettigrew MM (2011) Cộng đồng vi khuẩn đường hô hấp trên và viêm tai giữa ở trẻ em. mBio 2(1):e00245-10. https://doi.org/10. 1128/mBio.00245-10
18. Chen YT, Hsieh PS, Ho HH, Hsieh SH, Kuo YW, Yang SF, Lin CW (2020) Hoạt tính kháng khuẩn của các chủng vi khuẩn có lợi và diệt nhiệt chống lại mầm bệnh đường miệng. Lett Appl Microbiol 70(4):310–317
19. Bonifait L, Chandad F, Grenier D (2009) Probiotic cho sức khỏe răng miệng: huyền thoại hay thực tế? J Can Dent PGS 75(8):585–90
20. Hsieh PS, An Y, Tsai YC, Chen YC, Chuang CJ, Zeng CT, King AE (2013) Tiềm năng của các chủng probiotic trong việc điều chỉnh phản ứng viêm của tế bào biểu mô và miễn dịch trong ống nghiệm. Vi sinh vật mới 36(2):167–179
21. Elrefaei M, Burke CM, Baker CA, Jones NG, Bousheri S, Bangsberg DR, Cao H (2009) TGF- và IL-10 được sản xuất bởi HIVspecifc CD8+ tế bào T được điều hòa bởi CTLA{ Tín hiệu {5}} trên CD4+ tế bào T. PLOS MỘT 4(12):e8194
22. Ranganathan V, Akhila CH (2019) Streptococcus mutans: Nó đã trở thành thủ phạm chính gây ra các biểu hiện ở miệng chưa? J Microbiol Exp 7(4):207–213
23. Almeida CC, Lorena SLS, Pavan CR, Akasaka HMI, Mesquita MA (2012) Tác dụng có lợi của việc tiêu thụ lâu dài sự kết hợp men vi sinh của Lactobacillus casei Hirota và Bifidobacteria breve Yakult có thể tồn tại sau khi ngừng điều trị ở những bệnh nhân không dung nạp lactose. Phòng khám Nutr 27(2):247–251
24. Braathen G, Ingildsen V, Twetman S, Ericson D, Jørgensen MR (2017) Sự hiện diện của Lactobacillus reuteri trong nước bọt trùng hợp với lượng IgA trong nước bọt cao hơn ở người trẻ tuổi sau khi uống viên ngậm probiotic. Vi khuẩn có lợi 8(1):17–22
25. Scharek L, Guth J, Filter M, Schmidt MFG (2007) Tác động của vi khuẩn sinh học Enterococcus faecium NCIMB 10415 (SF68) và Bacillus cereus var. gửi bạn NCIMB 40112 về sự phát triển của IgG huyết thanh và IgA trong phân của lợn nái và heo con. Arch Anim Nutr 61(4):223–234
26. Ebrahimpour-Koujan S, Milajerdi A, Larijani B, Esmaillzadeh A (2020) Tác dụng của men vi sinh đối với các cytokine và globulin miễn dịch trong nước bọt: đánh giá hệ thống và phân tích tổng hợp về các thử nghiệm lâm sàng. Đại diện khoa học 10(1):1–11
27. Ou CC, Lin SL, Tsai JJ, Lin MY (2011) Vi khuẩn axit lactic diệt nhiệt tăng cường khả năng điều hòa miễn dịch bằng cách làm lệch phản ứng miễn dịch theo hướng phân cực Th1. J Thực phẩm Khoa học 76(5):M260–M267. https://doi.org/10.1111/j.1750-3841.2011. 02161.x
28. Nair MS, Amalaradjou MA, Venkitanarayanan K (2017) Đặc tính kháng độc tố của men vi sinh trong việc chống lại mầm bệnh của vi khuẩn. Adv Appl Microbiol 98:1–29
29. Wu MH, Pan TM, Wu YJ, Chang SJ, Chang MS, Hu CY (2010) Hoạt động của exopolysaccharide từ probiotic bifidobacteria: Tác dụng điều hòa miễn dịch (trên đại thực bào J774A. 1) và đặc tính kháng khuẩn. Vi sinh thực phẩm Int J 144(1):104–110
30. Barefoot SF, Klaenhammer TR (1983) Phát hiện và hoạt động của lactacin B, một loại bacteriocin được sản xuất bởi Lactobacillus acidophilus. Appl Environ Microbiol 45(6):1808–1815
31. Kim PI, Sohng JK, Sung C, Joo HS, Kim EM, Yamaguchi T, Kim BG (2010) Đặc tính và xác định cấu trúc của một peptide kháng khuẩn, hominin, được sản xuất bởi Staphylococcus hominis MBBL 2–9. Biochem Biophys Res Commun 399(2):133–138
32. Piqué N, Berlanga M, Miñana-Galbis D (2019) Lợi ích sức khỏe của men vi sinh diệt nhiệt (Tyndallized): tổng quan. Int J Mol Khoa học 20(10):2534