

Trà xanh Epigallocatechin-3-gallate (EGCG) nhắm mục tiêu vào việc gấp sai protein trong khám phá thuốc điều trị các bệnh thoái hóa thần kinh Phần 2
Jun 25, 2024
3. Protein sai lệch trong các bệnh thoái hóa thần kinh
Việc chuyển đổi protein từ trạng thái tự nhiên sang các tập hợp không được gấp nếp có liên quan và được cho là nguyên nhân của một số ND, bao gồm AD và PD [133]. Việc gấp sai, tập hợp và lắng đọng các protein cụ thể là những đặc điểm chính của hầu hết các ND tiến bộ [21,134].
Protein là một trong những chất dinh dưỡng cần thiết cho cơ thể con người. Nó là yếu tố cơ bản cấu thành nên tế bào của cơ thể và cũng là một trong những cơ sở vật chất quan trọng cho các chức năng sinh lý khác nhau của cơ thể con người. Protein cũng đóng vai trò quan trọng trong việc cải thiện trí nhớ.
Trước hết, protein có thể giúp chúng ta nâng cao khả năng tư duy và từ đó cải thiện trí nhớ vì protein là thành phần cơ bản của tế bào thần kinh. Tế bào thần kinh là đơn vị cơ bản cấu thành nên não và hệ thần kinh. Việc xử lý trí nhớ và truyền thông tin trong não đòi hỏi sự giao tiếp và phối hợp giữa các tế bào thần kinh. Do đó, việc bổ sung đầy đủ protein có thể giúp chúng ta bảo vệ hệ thần kinh và tăng cường sự tương tác giữa tế bào thần kinh và tế bào thần kinh trong não, từ đó cải thiện khả năng học hỏi, ghi nhớ và suy nghĩ.
Thứ hai, protein có thể giúp chúng ta ổn định cảm xúc, giảm bớt lo lắng và căng thẳng, từ đó thúc đẩy cải thiện trí nhớ. Các nghiên cứu đã chỉ ra rằng những người thiếu protein thường có biểu hiện bất ổn về cảm xúc như cáu kỉnh, căng thẳng, cáu kỉnh vì protein là cơ sở tổng hợp các chất điều hòa cảm xúc. Nó có thể giúp cơ thể con người tổng hợp các chất dẫn truyền thần kinh như dopamine, từ đó điều chỉnh cảm xúc. Khi cảm xúc của chúng ta ổn định và thoải mái nhất có thể thì khả năng xử lý thông tin của não bộ sẽ được phát huy tối đa và trí nhớ của chúng ta cũng sẽ được cải thiện theo đó.
Tóm lại, protein là dưỡng chất quan trọng cần thiết cho cơ thể con người và nó cũng đóng vai trò không thể thay thế trong việc cải thiện trí nhớ. Vì vậy, chúng ta phải tập trung vào lượng protein trong chế độ ăn uống hàng ngày, tăng cường chức năng của các cơ quan quan trọng khác nhau trong cơ thể, cải thiện khả năng tư duy và ổn định cảm xúc, đồng thời giúp chúng ta hoạt động ngày càng tốt hơn trong học tập và làm việc. Có thể thấy rằng chúng ta cần cải thiện trí nhớ, và Cistanche có thể cải thiện trí nhớ một cách đáng kể vì Cistanche có tác dụng chống oxy hóa, chống viêm, chống lão hóa, có thể giúp làm giảm quá trình oxy hóa và các phản ứng viêm trong não, từ đó bảo vệ sức khỏe của con người. hệ thần kinh. Ngoài ra, Cistanche còn có thể thúc đẩy sự phát triển và sửa chữa các tế bào thần kinh, từ đó tăng cường khả năng kết nối và chức năng của mạng lưới thần kinh. Những tác động này có thể giúp cải thiện trí nhớ, khả năng học tập và tốc độ tư duy, đồng thời có thể ngăn ngừa sự xuất hiện của rối loạn chức năng nhận thức và các bệnh thoái hóa thần kinh.
Click ngay để cải thiện chức năng não
A , tau, -syn, TDP-43, Huntingtin hoặc protein prion (PrP) chỉ là một vài ví dụ về các protein đặc hiệu của bệnh có thể tổng hợp và góp phần vào cơ chế bệnh sinh của ND (Hình 2).
Các tập hợp protein không được gấp nếp gây độc cho tế bào và cuối cùng dẫn đến chết tế bào trong các bệnh lý thoái hóa thần kinh. Trong mọi trường hợp, quá trình tổng hợp đóng một vai trò quan trọng trong sự tiến triển của bệnh do mất chức năng protein (do chính quá trình tổng hợp) hoặc do độc tính của các tập hợp hòa tan [17,22].

Cho rằng ND bắt nguồn từ một con đường tổng hợp chung, với các tập hợp có chung cấu trúc, không có gì đáng ngạc nhiên khi các tập hợp này gây ra tổn thương tế bào thông qua các cơ chế tương tự.
Tuy nhiên, sự khác biệt chính giữa các protein bị gấp sai xảy ra do vị trí của các tập hợp, dù là trong hay ngoài tế bào, và nồng độ của chúng, phụ thuộc vào một số yếu tố, bao gồm cả tính ổn định của các sợi nhỏ [93].
Người ta biết rõ rằng việc gấp sai, tập hợp và tích lũy protein sẽ dẫn đến tổn thương các tế bào thần kinh nơi protein tích tụ, gây ra quá trình thoái hóa thần kinh [135].
Một loại protein cụ thể có thể gấp lại thành một cấu hình thay thế ổn định, trong hầu hết các trường hợp dẫn đến sự tập hợp và tích lũy của nó trong các mô dưới dạng lắng đọng dạng sợi [136].
Bằng chứng ngày càng tăng cho thấy rằng sự tập hợp các sợi amyloid đi kèm với những thay đổi về hình dạng trong các protein tổng hợp. Ví dụ, các polypeptideA và -syn 'được mở ra tự nhiên' có cấu trúc cuộn ngẫu nhiên chủ yếu ở trạng thái tự nhiên, hòa tan của chúng [24].
Tuy nhiên, trong quá trình hình thành sợi cơ (Hình 3), cấu trúc của chúng chuyển đổi thành cấu trúc tấm, cho thấy rằng sự hình thành tấm - thúc đẩy quá trình lắp ráp amyloid.
Ngoài ra, các thí nghiệm in vitro cho thấy rằng các protein gấp nếp sai này dễ dàng hình thành các cấu trúc chéo với đặc điểm động học tập hợp thường biểu hiện đường cong sigmoidal trong đó các protein tập hợp thành oligome (pha trễ) trước khi kéo dài sợi fibril (giai đoạn tăng trưởng) và một trạng thái ổn định nơi các sợi nhỏ và các sợi tự do các monome ở trạng thái cân bằng (pha bão hòa) [137,138].
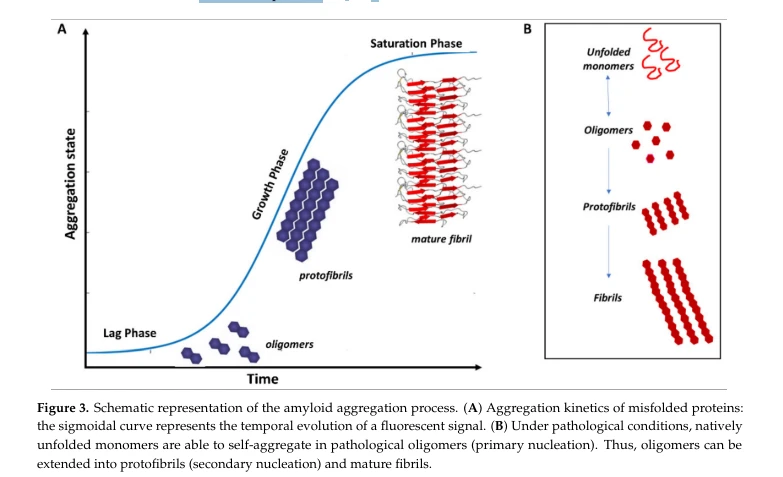
Thật vậy, sự hình thành sợi amyloid là một quá trình phức tạp, nhiều pha bao gồm ba giai đoạn: tạo mầm hoặc pha trễ, kéo dài hoặc pha tăng trưởng và pha bão hòa.
Giai đoạn trễ bắt đầu với việc các monome trải qua quá trình sắp xếp lại cấu trúc và tự lắp ráp thành các dime, trimer và/hoặc oligome. Trong giai đoạn tăng trưởng, hạt nhân oligomeric hoạt động như một khuôn mẫu cho các monome trong dung dịch và tiến hành bằng cách kéo dài sợi cơ, được hỗ trợ bởi sự phân mảnh, tạo mầm thứ cấp và liên kết sợi nhỏ.
Cuối cùng, quá trình tạo sợi đạt đến trạng thái cân bằng trong pha bão hòa với các sợi cơ trưởng thành và nồng độ của các dạng đơn phân giảm đi [138].
Đáng chú ý, phát hiện của Stanley Prusiner rằng PrP có thể kết hợp sai thành một cấu trúc bệnh lý mã hóa thông tin cấu trúc có khả năng vừa truyền bá vừa gây ra bệnh lý thần kinh nghiêm trọng đã góp phần đáng kể vào việc hiểu các ND khác [139,140].
Mặc dù ngày càng có nhiều bằng chứng cho thấy các ND khác, đặc biệt là AD (A andtau) và PD ( -syn), thể hiện ít nhất một số đặc tính tương tự như PrP bị gấp sai, nhiềuND có thành phần gấp sai protein hiện được gọi là 'giống prion' [141,142].
Mặc dù các protein khác nhau có liên quan đến mỗi ND, quá trình tổng hợp và gấp sai protein rất giống nhau. Các protein không gấp cuộn được chuyển giao giữa các tế bào, trở thành thứ được gọi là 'hạt giống bệnh lý' [136].

Các nghiên cứu thực nghiệm cho thấy rằng các tổ hợp này đến từ sự tập hợp hạt giống giống như prion của các protein gấp sai cụ thể hình thành và tích lũy để hình thành các tổn thương nội bào và/hoặc ngoại bào điển hình của từng rối loạn [135,143,144]. Do đó, mô hình prion đã nổi lên như một cơ sở phân tử thống nhất cho cơ chế bệnh sinh của nhiều ND [145].
Mô hình prion cho rằng sự kết tụ không đúng và có mầm của một số protein nhất định là nguyên nhân cơ bản của các rối loạn cụ thể. Khám phá này có ý nghĩa to lớn trong việc tìm hiểu các cơ chế liên quan đến sự khởi đầu và tiến triển của ND, cũng như cho việc thiết kế các chiến lược chẩn đoán và điều trị mới.
Các nhà nghiên cứu hiện đang tập trung vào việc phát triển các liệu pháp điều trị rối loạn cuộn sai protein sử dụng các chiến lược đa dạng. Chúng bao gồm việc ức chế sản xuất các protein liên quan đến bệnh tật có xu hướng bị gấp sai, ức chế sự tổng hợp của các protein bị sai lệch, loại bỏ và ngăn chặn sự lây lan của các protein bị sai lệch tổng hợp và điều khiển hệ thống tế bào để giảm thiểu tác động độc hại của các protein bị sai lệch [19].
Vì sự gấp cuộn và tập hợp protein không đúng là nguyên nhân hàng đầu của nhiều ND, nên một số nghiên cứu đã xem xét tiềm năng của việc nhắm mục tiêu quá trình tạo sợi của protein amyloid để chống lại sự thoái hóa thần kinh.
Một loạt các hợp chất đã được xác định là chất ức chế hoặc điều biến tiềm năng của quá trình gấp cuộn và tập hợp protein không đúng. Đáng chú ý, hầu hết các phân tử có triển vọng đã được xác định là nhắm mục tiêu A và -syn gấp sai; những phân tử này dường như liên kết với các oligome và các tập hợp lớn hơn như mảng amyloid [146,147].
Các hợp chất như vậy có thể được phân loại thành ba loại chính: kháng thể, chất ức chế peptide và chất ức chế phân tử nhỏ như NP [132]. Cuối cùng, đưa ra nhiều dòng bằng chứng hỗ trợ việc gấp sai protein là nguyên nhân phổ biến và cơ chế bệnh lý ở ND, người ta đã đề xuất rằng một liệu pháp chung cho những rối loạn không thể chữa khỏi này có thể thực hiện được [24].
Điều quan trọng cần lưu ý là tiềm năng của EGCG đối với nhiều ND sẽ củng cố khả năng phát triển một liệu pháp dùng thuốc thông thường cho các ND khác nhau. Trong những thập kỷ gần đây, vai trò của EGCG đối với sự kết hợp và gấp sai protein tự nhiên đã được nghiên cứu rộng rãi.
Hiện nay có nhiều bằng chứng chứng minh tiềm năng của EGCG trong việc ức chế quá trình tạo sợi và có khả năng gây ra sự phân tách các protein tổng hợp không được gấp nếp (A, tau và -syn) [148–151].
3.1. A bị gấp sai trong AD
A là một peptit được cuộn sai có liên quan đến sinh bệnh học AD, và mảng bám bao gồm các peptit A tổng hợp có đặc điểm nổi bật trong bệnh lý AD; do đó, hầu hết các loại thuốc được thử nghiệm về AD trong hai thập kỷ qua đều nhắm vào peptide A [50,66].
Các peptide A là39–42-các peptide tồn tại lâu dài được tìm thấy trong các mảng lão hóa trong não của bệnh nhân AD [61]. Những peptide này là các mảnh phân giải protein được tạo ra bởi quá trình chuyển hóa protein tiền chất xuyên màng (APP), sau đó tự tổng hợp trong dung dịch nước, chuyển từ các monome hòa tan và chủ yếu không có cấu trúc thành các sợi nhỏ có trật tự không hòa tan.
Ngay khi A tập hợp thành các sợi nhỏ bên ngoài tế bào, nó sẽ có khả năng chống lại sự phân cắt phân giải protein [61,152]. Sự phân cắt APP bởi một họ enzyme phức tạp (-secretase và -secretase) giải phóng các peptide A chủ yếu là các monome không có cấu trúc [152]. Với tính kỵ nước của cấu trúc bậc một, A có thể được chia thành bốn vùng: hai vùng kỵ nước và hai vùng ưa nước.
16 gốc N đầu tiên tạo thành đuôi ưa nước, trong khi hai vùng kỵ nước bao gồm phần L17–A21 ở giữa và đầu C A30–V40/A42, được phân tách bằng vùng ưa nước ở giữa E22–G29.
Hai vùng kỵ nước A thể hiện xu hướng cấu trúc bậc hai đối với các cấu trúc -. Các vùng này tạm thời chấp nhận sự phù hợp và sau đó có thể tạm thời gấp lại thành một chiếc kẹp tóc.
Có ý kiến cho rằng các monome A trong dung dịch có cấu trúc giống như kẹp tóc thoáng qua, trong khi dư lượng từ D23 đến K30 có liên quan trực tiếp đến sự hình thành kẹp tóc [152]. Như đã đề cập trước đây, mặc dù có đặc tính có hại của các mảng lão hóa, nhưng có rất nhiều bằng chứng cho thấy oligomeric hòa tan A là loài phân tử gây độc thần kinh nhất [70,153,154].
Sự kết tụ sai lệch và ngoại bào của các peptide A đã được công nhận là nguyên nhân chính của sự tiến triển của AD, dẫn đến sự hình thành các oligome A độc hại và lắng đọng các mảng amyloid trong não [61]. Có ý kiến cho rằng loài oligomeric A có thể đại diện cho mục tiêu sinh học hợp lệ [66,155,156].
3.2. Misfolded -Syn trong PD
Protein -syn chủ yếu được định vị tại các vị trí khớp thần kinh, nơi nó tương tác với nhiều đối tác như chất vận chuyển monoamine, các thành phần khung tế bào, màng lipid, tế bào đi kèm và các protein liên kết với túi synap (SV) [157].

-syn là dạng đơn phân và bị rối loạn ở dạng sinh lý của nó, mặc dù một số nghiên cứu tranh luận liệu nó có sử dụng một tetramer xoắn ốc in vivo hay không [158–160]. Ngoài sự tập hợp nội bào của -syn gấp sai được liên kết với PD, nó còn có liên quan đến các ND khác như AD, teo đa hệ thống (MSA) và chứng sa sút trí tuệ thể Lewy.
Hơn nữa, một nhóm rối loạn được gọi là bệnh synucleinopathies được đặc trưng bởi sự tích tụ các thể vùi giàu protein -syn có thể xuất hiện sau này trong cuộc sống [161,162]. Người ta cho rằng các loại tổng hợp khác nhau (oligomer, protofibrils, fibrils và các loại khác) được hình thành trong quá trình tổng hợp -syn trong các bệnh lý synucleinopathies này và ít nhất một số có thể gây độc thần kinh và dẫn đến thoái hóa thần kinh [163].
Do đó, việc nhắm mục tiêu tích lũy tế bào thần kinh của -syn đang hấp dẫn như một phương pháp tiềm năng để ngăn chặn sự tiến triển của PD và các bệnh lý synucleinopathies khác [164].
140-axit amin -syn là protein tế bào thần kinh 14 kDa được mã hóa bởi gen SNCA trên nhiễm sắc thể số 4 của con người [165]. Trình tự axit amin chính của nó có thể được chia thành ba miền chính: miền đầu N (1–60), miền trung tâm (61–95) và miền đầu C (96–140).
Miền đầu N, chứa trình tự đồng thuận nhiều lần lặp lại (KTKEGV) và có xu hướng xoắn ốc, được đặc trưng bởi đầu cuối amino giàu lysine dị tính, đóng vai trò quan trọng trong việc điều chỉnh các tương tác của nó với màng và carboxy-- có tính axit bị rối loạn. đuôi cuối. Đuôi có liên quan đến việc điều chỉnh vị trí hạt nhân và tương tác với kim loại, phân tử nhỏ và protein.
Vùng trung tâm của -syn chứa mô típ kỵ nước cao được gọi là thành phần không amyloid của các mảng amyloid AD (NAC), có liên quan đến sự kết tụ -syn khi thu được cấu trúc -sheet. Vùng NAC không thể thiếu cho việc tổng hợp -syn.
Miền đầu C được làm giàu với các gốc proline và điện tích âm, mang lại tính linh hoạt cho polypeptide [166,167]. Vì vùng NAC của -syn tạo ra xu hướng cao cho protein bị xoắn sai, nên nó tạo thành các tập hợp amyloid dạng tấm, còn được gọi là các sợi nhỏ, dưới điều kiện bệnh lý. Tuy nhiên, sự lắp ráp -syn thành các sợi amyloid rất năng động và sự tồn tại của các loại oligomeric trung gian đã được nghiên cứu rộng rãi [164].
Tương tự như oligomeric A, -syn oligome gây ra nhiều tác động gây độc thần kinh hơn so với các tập hợp sợi lớn hơn, suy ra rằng chúng có thể là loài gây bệnh chính [168].
Giả thuyết trung gian độc hại được xây dựng dựa trên quan điểm này, cho thấy rằng các oligome độc hại phá vỡ tính toàn vẹn của màng thông qua sự hình thành lỗ chân lông amyloid, trong khi các sản phẩm cuối cùng dạng sợi chỉ đơn giản là sản phẩm phụ của quá trình giải độc.
Quan điểm này được ủng hộ bởi thực tế là thể Lewy chứa fibril thường được tìm thấy trong các tế bào thần kinh dopaminergic khỏe mạnh [169–171].
4. EGCG để điều trị các bệnh thoái hóa thần kinh
Do tiềm năng chính của việc sử dụng trà xanh trong điều trị ND, catechin trà xanh đã được nghiên cứu rộng rãi, bao gồm các nghiên cứu in vitro và in vivo cũng như thử nghiệm lâm sàng [16,117]. Tiềm năng điều trị của EGCG, hợp chất hoạt tính sinh học chính của trà xanh, là hiện nay đã được biết đến rộng rãi trong nghiên cứu ND [10]. Trong 20 năm qua, EGCG đã được chứng minh là có tác dụng chống lại stress oxy hóa và cải thiện các kiểu hình giống AD và PD trong các mô hình in vitro và in vivo khác nhau (Bảng 2 và 3).


4.1. Bằng chứng từ các mô hình gây độc thần kinh trong ống nghiệm
Vào những năm 1990, các nghiên cứu với mô hình nhiễm độc thần kinh do A gây ra cho thấy rằng sự hiện diện của A 1-42 dẫn đến nhiễm độc thần kinh và làm tăng quá trình oxy hóa protein, và kết quả là gây ra stress oxy hóa [220–222].
Độc tính thần kinh của protein A được trung gian thông qua các gốc tự do oxy và có thể bị suy giảm bởi các chất chống oxy hóa và chất tẩy gốc tự do. Do đó, việc giảm bớt căng thẳng oxy hóa bằng các hợp chất chống oxy hóa có thể là một chiến lược trị liệu tiềm năng để điều trị AD.
Vào đầu những năm 2000, đặc tính chống oxy hóa mạnh của polyphenol EGCG trong trà xanh đã được nghiên cứu trong mô hình gây độc thần kinh do A gây ra bằng cách sử dụng các tế bào thần kinh vùng đồi thị được nuôi cấy, với kết quả cho thấy rằng EGCG có tác dụng bảo vệ chống lại quá trình chết tế bào thần kinh do A gây ra từ việc nhặt các loại oxy phản ứng. Đây là một trong những trong những báo cáo đầu tiên về lợi ích của EGCG trong việc ngăn ngừa AD [172].
Sau đó, cơ chế phân tử tạo nên tác dụng bảo vệ thần kinh của EGCG trong mô hình nhiễm độc thần kinh do A gây ra đã được nghiên cứu tập trung vào quá trình chuyển hóa tế bào của glutathione bị khử có đặc tính chống oxy hóa. Kết quả chỉ ra rằng phương pháp điều trị bằng EGCG đã củng cố nguồn glutathione của tế bào thông qua biểu hiện tăng cao của -glutamylcysteine ligase [176].
Căng thẳng oxy hóa cũng đã được chứng minh là có tác dụng tạo ra các tế bào thần kinh điều hòa tăng cường protein BACE-1, đây là enzyme giới hạn tốc độ trong quá trình xử lý APP và thế hệ A, cũng như là mục tiêu điều trị cho AD [223,224]. Mặc dù việc tiếp xúc với môi trường nuôi cấy tế bào thần kinh A 1-42 làm tăng mức protein BACE-1, việc xử lý EGCG làm suy giảm đáng kể quá trình sản xuất oxy gốc tự do và hình thành cấu trúc tấm [174].
Vào đầu những năm 2010, người ta đã biết rằng EGCG ức chế các xét nghiệm không có tế bào tạo sợi A và -syn; sau đó các nhà nghiên cứu đã điều tra xem liệu EGCG có thể tái cấu trúc các tập hợp A và -syn không hòa tan trong hệ thống mô hình tế bào hay không [148].
Nghiên cứu này cho thấy EGCG có thể làm giảm độc tính tế bào của các sợi A và -syn trưởng thành bằng cách tái cấu trúc cấu trúc của chúng. Sự tái cấu trúc qua trung gian EGCG của các cấu trúc amyloid giàu tấm dẫn đến sự xuất hiện của các tập hợp protein vô định hình nhỏ hơn không gây độc cho tế bào động vật có vú [148]. Năm 2017, việc sử dụng các tế bào PC12 được chuyển nạp đồng bộ đã được thực hiện để nghiên cứu tác dụng bảo vệ của EGCG, cung cấp bằng chứng cho thấy EGCG có thể bảo vệ các tế bào này chống lại tổn thương do -syn gây ra bằng cách ức chế sự biểu hiện quá mức và sự rung của -syn trong tế bào [151].
Một nghiên cứu gần đây hơn đã báo cáo rằng EGCG có thể can thiệp vào quá trình rung đồng bộ do Cu(II) gây ra và bảo vệ khả năng sống của tế bào. Các nhà nghiên cứu đã chứng minh rằng EGCG ức chế sự tạo ra các loại oxy phản ứng (ROS) do Cu(II) gây ra, dẫn đến giảm sự biểu hiện quá mức và sự rung chuyển của -syn trong tế bào. Hơn nữa, sự kết hợp giữa Cu và EGCG thể hiện khả năng bảo vệ lạnh tốt hơn so với chỉ sử dụng EGCG. Ở đây, điều đáng chú ý là Cu(II) là chất chống oxy hóa cũng làm tăng tốc quá trình tạo sợi và tổng hợp protein [183].
Ngoài ra còn có nhiều bằng chứng về tác dụng bảo vệ thần kinh của EGCG trong các mô hình gây độc thần kinh của chất độc thần kinh PD Parkinsonia bao gồm các hợp chất như 6-hydroxydopamine(6-OHDA), 1-methyl-4-phenyl{{4 }},2,3,6-tetrahydropyridine (MPTP), rotenone (ROT) vàparaquat. EGCG đã chứng minh khả năng bảo vệ tế bào thần kinh đáng chú ý chống lại paraquat,6-OHDA và nhiễm độc thần kinh MPP+, mặc dù không chống lại ROT [173,175,178,180,181].
Trong một đánh giá về tác dụng bảo vệ thần kinh của EGCG đối với nuôi cấy trung mô phân ly được điều trị bằng ROT và nuôi cấy thể vân theo kiểu tổ chức, EGCG đã chống lại một phần tác dụng của ROT trong nuôi cấy lát cắt giai đoạn đầu thông qua việc giảm oxit nitric (NO) nhưng không phân tách tế bào chống lại độc tính ROT [178] .

Mặc dù nghiên cứu thứ hai không chứng minh rằng EGCG bảo vệ chống lại nhiễm độc thần kinh do ROT gây ra trong các mô hình tế bào, nhưng gần đây đã có báo cáo rằng EGCG có tác dụng bảo vệ thần kinh in vivo trên các mô hình PD do ROT gây ra [206,207]. Cùng với nhau, những kết quả này từ các mô hình gây độc thần kinh trong ống nghiệm ủng hộ quan điểm rằng EGCG có thể được sử dụng như một tác nhân bảo vệ thần kinh để điều trị ND.
For more information:1950477648nn@gmail.com


