

Hoạt động bảo vệ thần kinh và điều hòa miễn dịch của hệ thống endocannabinoid trong tình trạng viêm thần kinh Phần 3
Jul 11, 2024
Sự phát triển của LTP hay LTD phụ thuộc vào việc tần số kích thích có cao hơn tần số ngưỡng [99] hay không, với sự gia tăng sau khớp thần kinh của Ca2+ là yếu tố chính quyết định sự phát triển của LTD hoặc LTP.
Sự phát triển và trí nhớ là hai khía cạnh liên quan chặt chẽ với nhau và mối quan hệ giữa chúng rất quan trọng. Cơ thể và bộ não của một người cần phát triển liên tục trong quá trình tăng trưởng, trí nhớ cũng được cải thiện và phát triển trong quá trình này.
Trong quá trình trưởng thành của một người, sự phát triển về thể chất đi trước sự phát triển của trí não. Trẻ em cần thoát khỏi sự phụ thuộc vào người lớn và học cách tự đi, đứng và thậm chí chơi bóng. Những hoạt động này thúc đẩy sự tăng trưởng và phát triển toàn diện về mọi mặt của cơ thể, hơn nữa còn tác động đến sự phát triển của não bộ. Khi chúng ta tập thể dục, cơ thể tiết ra nhiều hormone tăng trưởng, không chỉ có lợi cho sự phát triển của cơ thể mà còn thúc đẩy sự phát triển và kết nối của các tế bào thần kinh não. Ngoài ra, tập thể dục có thể cải thiện khả năng miễn dịch và sức chịu đựng của con người, giúp đối phó tốt hơn với nhiều áp lực và thách thức khác nhau.
Ngoài sự phát triển về thể chất, trí nhớ cũng là một khía cạnh rất quan trọng trong sự phát triển của trẻ. Bộ não của trẻ không ngừng học hỏi những kiến thức mới khi chúng lớn lên, từ màu sắc, hình dạng, con số cơ bản đến ngôn ngữ, kỹ năng xã hội và kiến thức môn học, tất cả đều cần được ghi nhớ và sử dụng liên tục. Các nghiên cứu đã chỉ ra rằng khi trẻ học kiến thức mới, não của chúng sẽ tạo ra các tế bào thần kinh và các kết nối mới, tiếp tục được củng cố và củng cố, từ đó cải thiện trí nhớ và hiệu quả học tập.
Để cải thiện trí nhớ của trẻ, vận động thể chất là yếu tố không thể thiếu. Tập thể dục phù hợp có thể tăng cường kết nối giữa cơ thể và não, cải thiện lưu thông máu và cung cấp oxy, đồng thời thúc đẩy hoạt động của tế bào thần kinh não. Ngoài ra, sự tập trung, tích cực học tập và áp dụng kiến thức mới, thói quen sinh hoạt tốt, ngủ đủ giấc có thể cải thiện trí nhớ, đây đều là những yếu tố cần chú ý.
Trong quá trình lớn lên của trẻ, sự phát triển và trí nhớ đều là những điểm then chốt. Sự thúc đẩy lẫn nhau giữa hai người và thói quen sống tích cực có thể giúp trẻ phát huy tốt hơn tiềm năng của mình. Vì vậy, chúng ta cần quan tâm và coi trọng sự phát triển toàn diện về thể chất và trí não của trẻ, quan tâm, hỗ trợ nhiều hơn để trẻ phát triển trong môi trường tốt hơn. Có thể thấy rằng chúng ta cần cải thiện trí nhớ, và Cistanche có thể cải thiện đáng kể trí nhớ vì nó còn có thể điều chỉnh sự cân bằng của các chất dẫn truyền thần kinh, chẳng hạn như tăng mức độ acetylcholine và các yếu tố tăng trưởng, rất quan trọng đối với trí nhớ và khả năng học tập. Ngoài ra, Cistanche Deserticola có thể cải thiện lưu lượng máu và thúc đẩy quá trình cung cấp oxy, điều này có thể đảm bảo não có đủ dinh dưỡng và năng lượng, từ đó cải thiện sức sống và sức bền của não.
Bấm vào biết cách cải thiện trí nhớ của bạn
LTD và LTP là các cơ chế phân tử có đặc điểm rõ ràng làm cơ sở cho việc học tập và hình thành trí nhớ và được tạo ra trong các thử nghiệm với các kích thích tần số cao hoặc thấp (sự lặp lại của hàng trăm gai trước hoặc sau khớp thần kinh).
Trong nhóm loài gặm nhấm, điện thế phụ thuộc vào thời gian tăng đột biến (STDP), một hiện tượng mô tả sự phụ thuộc của cường độ truyền qua khớp thần kinh vào thời gian giữa điện thế hoạt động đầu ra và đầu vào (gai) của tế bào thần kinh, được quan sát thấy ở 75 cặp–100, biến mất trong 25–50 cặp và tái xuất hiện thành 5–10 cặp.
STDP được tạo ra bởi rất ít cặp đôi, độc lập với thụ thể NMDA nhưng được trung gian bởi 2-AG và AEA, tác động lên cả CB1 và TRPV1 [100].
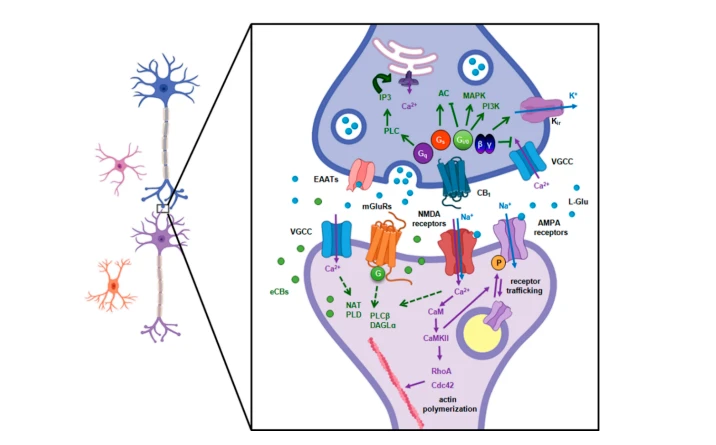
Hình 5. Các kích thích liên quan đến việc thiết lập tính dẻo của khớp thần kinh và tín hiệu eCB ngược trong khớp thần kinh glutamatergic. Sự giải phóng glutamate từ thiết bị đầu cuối trước synap sẽ kích hoạt các thụ thể glutamate ionotropic (NMDA, AMPA và kainate) và metabotropic (mGluRs), cùng với dòng Ca2+ qua VGCC là những yếu tố kích hoạt mạnh mẽ việc sản xuất foreCB (được biểu thị bằng màu xanh lá cây).
Dòng Ca2+ đi qua các thụ thể NMDA có liên quan đến việc điều hòa việc vận chuyển thụ thể AMPA, sự mở rộng cột sống và những thay đổi dẻo về cường độ dẫn truyền qua khớp thần kinh (được biểu thị bằng màu tím). AC, adenylate cyclase; AMPA, -amino-3-hydroxy-5-metyl-4-thụ thể axit isoxazolepropionic; CaM, peaceodulin; CaMKII, protein kinase II phụ thuộc canxi-calmodulin; Cdc42, protein tương đồng kiểm soát sự phân chia tế bào 42; DAGL, diacylglycerollipase; EAAT, chất vận chuyển axit amin kích thích; eCB, endocannabinoids; Glu, axit glutamic; IP3, inositol 3-photphat; Kir, kênh kali chỉnh lưu hướng vào trong; MAPK, protein kinase được hoạt hóa bằng mitogen; mGluRs, thụ thể glutamate metabotropic; NAT, N-acyltransferase; Thụ thể NMDA, N-methyl-D-aspartate; PI3K, phosphatidylinositol 3-kinase; PL, phospholipase; RhoA, thành viên gia đình tương đồng Ras A; VGCC, kênh canxi kiểm soát điện áp.
5.2. Độ dẻo của khớp thần kinh qua trung gian endocannabinoid
Sự kích thích các thụ thể dẫn truyền thần kinh sau khớp thần kinh và dòng Ca?+ được duy trì là tác nhân mạnh mẽ để sản xuất eCB và các đồng loại của chúng78,101] theo cách phụ thuộc vào hoạt động thần kinh.
Chất dẫn truyền thần kinh được giải phóng sẽ kích hoạt các thụ thể dẫn truyền thần kinh ionotropic, các thụ thể metabotropic kết hợp Gg (nhóm I của các thụ thể glutamate metabotropic, mGluRs, thụ thể dopamine D2, M1 và M3 thụ thể acetylcholine muscarinic, M1/M3mAChRs) và/hoặc kênh canxi kiểm soát điện áp. Điều này gây ra sự bùng nổ Ca2+ trong hậu khớp thần kinh và sản xuất eCB, chủ yếu là AEA và 2-AG, thông qua thụ thể CB1 và CB2 điều chỉnh sự giải phóng các chất dẫn truyền thần kinh trước synap.
Do đó, việc tạo ra AEA và 2-AG trong não cho thấy sự khác biệt về không gian và phụ thuộc vào sự bổ sung của các thụ thể dẫn truyền thần kinh trên một số tế bào thần kinh nhất định. Khả năng hoạt động của khớp thần kinh qua trung gian endocannabinoid có thể được thực hiện ở các tế bào thần kinh nhận/gửi đầu vào thông qua các khớp thần kinh được kích hoạt (đồng hợp tử) hoặc trong các tế bào thần kinh khác không tiếp xúc trực tiếp với các khớp thần kinh được kích hoạt (dị hợp chất).
Trầm cảm dài hạn qua trung gian endocannabinoid (eCB-LTD). CB1 và CB2 là các thụ thể kết hợp protein Gi/0, khi liên kết với phối tử sẽ ức chế hoạt động của adenylate cyclase và sản xuất cAMP, điều chỉnh tiêu cực các kênh canxi kiểm soát điện áp (VGCC) và kích hoạt các kênh kali (Kir) điều chỉnh bên trong và MAP kinase .
Điều này làm giảm dòng Ca2+vào đầu tận cùng trước synap, làm giảm khả năng kết hợp các túi synap phụ thuộc Ca2+- và làm giảm sự giải phóng chất dẫn truyền thần kinh trước synap.
Tái chế túi synap là một quá trình nhiều bước rất năng động được trung gian bởi SNARE-protein và các protein điều hòa khác, với dòng Ca2+ là yếu tố chính để các túi synap được gắn và mồi bước vào bước hợp nhất [102]. Cùng với việc sản xuất eCB phụ thuộc vào hoạt động và kích hoạt CB1, hoạt động tiền synap rất cần thiết cho loại tính dẻo này vì nó quyết định các tác nhân hướng tâm trong đó eCB-LTD sẽ được tạo ra [103]. Sự phụ thuộc hoạt động trước synap được trung gian bởi các chất tự động thụ thể NMDA tiền synap phát hiện sự giải phóng glutamate.
Do đó, LTD phụ thuộc vào thời gian chỉ được tạo ra khi kích hoạt đồng thời các thụ thể NMDA và CB1 tiền synap [104]. Không giống như LTP, kéo dài từ vài phút đến hàng giờ, độ dẻo ngắn hạn (STP) được duy trì trong tối đa hàng chục mili giây đến vài phút. Ức chế ức chế do khử cực (DSI)/ức chế kích thích do khử cực (DSE).

DSI/DSE là một dạng STP được hiện thực hóa lần lượt trong các khớp thần kinh ức chế (GABAergic) và kích thích (glutamatergic) và được tạo ra bằng cách khử cực của đầu cuối sau khớp thần kinh và dòng Ca2+ qua VGCC. Các thí nghiệm dược lý ủng hộ vai trò của 2-AG hơn là AEA hoặc Aladin ether (2-arachidonic glyceryl ether) là endocannabinoid liên quan để tạo ra DSE [105].
Sự lan tỏa glutamate có thể ảnh hưởng sâu sắc đến tính dễ bị kích thích của mạng bằng cách thay đổi thời gian ức chế qua trung gian eCB tại các khớp thần kinh GABA. Các thụ thể glutamate metabotropic có liên quan đến việc kiểm soát thời gian của DSI, rất có thể thông qua quá trình giải mẫn cảm dị loại của CB1 [106]. Do đó, độc tính kích thích qua trung gian glutamate có thể làm thay đổi đáng kể việc thiết lập các dạng dẻo và cân bằng khác nhau trong tín hiệu glutamate-/GABAergic [47].
Sự ức chế/kích thích được gợi lên từ synap (hoặc do metabotropic gây ra) (SSE/SSI).SSE/SSI là một dạng STP, được điều khiển bằng cách kích hoạt các thụ thể dẫn truyền thần kinh metabotropic (Gq/11-kết hợp) sau synap, sau đó kích hoạt phospholipase C (PLC) và DAGLvới việc tạo ra 2-AG và ngăn chặn sự giải phóng chất dẫn truyền thần kinh thông qua các thụ thể CB1 tiền synap [107].
Nếu sự kích thích khớp thần kinh ở mức độ sâu, các eCB được tạo ra có thể tiếp cận các vị trí ở xa hơn và điều hòa tính dẻo theo phương pháp dị hợp. Độ dẻo khớp thần kinh qua trung gian TRPV1-. Độ dẻo khớp thần kinh qua trung gian TRPV1-thể hiện sự tương tác giữa eCB và hệ thống nội vanilloid. Loại dẻo khớp thần kinh này được trung gian bởi sự liên kết của AEA với TRPV1 ở vị trí sau khớp thần kinh và dẫn đến sự nội hóa Ca2+-calcineurin và phụ thuộc clathrin của các thụ thể AMPA, điều này kích thích sự dẫn truyền kích thíchLTD [108,109].
TRPV1 tích hợp cảm giác kích thích vật lý và hóa học và được kích hoạt bởi nhiệt độ lớn hơn 43 ◦C, điều kiện axit,vanilloid như capsaicin hoặc endocannabinoids như AEA, N-arachidonoyl dopamine và N-oleoyl dopamine. TRPV1 nổi tiếng với vai trò truyền cơn đau thần kinh (viêm).
Đồng thời, TRPV1 làm trung gian LTD ở vùng hải mã và axit 12-(S)-hydroperoxy eicosatetraenoic (12-(S)-HPETE), một eicosanoid nội sinh được giải phóng trong quá trình kích thích khớp thần kinh, hoạt động ở các thụ thể TRPV1 để trigger LTD [110].
Người ta đưa ra giả thuyết rằng LTP qua trung gian eCB chỉ được tạo ra khi quan sát thấy sự gia tăng lớn Ca2+ và mức độ 2-AG cao được tạo ra (tức là sau khi kích hoạt đồng thời một số thụ thể dẫn truyền thần kinh sau khớp thần kinh, TRPV1, VGCC) [100 ].
Các quan sát cho thấy2-AG và AEA làm trung gian cho các dạng dẻo khác nhau với sự tham gia của các thụ thể CB1,TRPV1 và mGluRs tùy thuộc vào vùng não, mô tả đặc điểm của hệ thống eCB như một bộ tích hợp tín hiệu đa phương thức cho phép đa dạng hóa độ dẻo của khớp thần kinh trong một nơ-ron đơn lẻ [111].
Sự can thiệp của NAE và các đồng loại eCB khác với tín hiệu orendocannabinoid phân hủy enzyme cho thấy vai trò của chúng trong việc điều chỉnh hoạt động của các eCB sơ cấp. NAE, monoacylglycerol và một số chất dẫn truyền thần kinh N-acyl nhất định cạnh tranh với AEA hoặc2-AG về sự thoái hóa qua trung gian FAAH, do đó kéo dài thời gian sống của chúng [112] và khả năng tương tác với các thụ thể cannabinoid.
"Hiệu ứng cộng hưởng" này của các acylglycerol và NAE không phải cannabinoid{1}}có thể đóng vai trò như một chất điều chỉnh tốt bổ sung cho hoạt động của cannabinoid. Sự tương tác và chuyển hóa tổng thể của các phối tử nội sinh của CB1/2, TRPV1, GPR55 và GPR18 hiện đã được tích hợp vào "endocannabinoidome" và chứng minh rằng hệ thống này đóng vai trò thiết yếu không chỉ trong nhiều khía cạnh của hành vi, nhận thức và trí nhớ mà còn làm trung gian cho các cơ chế bảo vệ vốn có của giao diện thần kinh-miễn dịch.
6. Bệnh khớp thần kinh do viêm thần kinh và các bệnh thoái hóa thần kinh
Viêm thần kinh là đặc điểm chung của các rối loạn thoái hóa thần kinh cấp tính và mãn tính như bệnh Alzheimer và Parkinson, nhiễm virus hệ thần kinh trung ương, đột quỵ, rối loạn cận ung thư, chấn thương sọ não và bệnh đa xơ cứng.
Viêm thần kinh thường được đặc trưng bởi sự kích hoạt của các tế bào thần kinh đệm có khả năng miễn dịch (microglia vàastroglia), giải phóng các cytokine, prostaglandin và các loại oxy phản ứng, làm suy yếu tính toàn vẹn của hàng rào máu não (BBB) và dẫn đến sự xâm nhập của các tế bào miễn dịch ngoại biên.
6.1. Tiểu thần kinh đệm
Microglia là các tế bào miễn dịch bẩm sinh nội trú thực hiện các hoạt động giám sát miễn dịch cơ bản và giống như đại thực bào của CNS. Ở trạng thái không bị kích thích, microglia góp phần phát triển hệ thần kinh trung ương và duy trì cân bằng nội mô bằng cách hỗ trợ sự sống sót của tế bào thần kinh, sự chết của tế bào và quá trình tạo khớp thần kinh [113]. Tuy nhiên, các tế bào vi mô có thể được kích hoạt bởi các kích thích bệnh lý khác nhau trong quá trình nhiễm trùng, chấn thương não, đột quỵ và thoái hóa thần kinh [114].
Microglia được kích hoạt được đặc trưng bởi sự tăng sinh và sản xuất và bài tiết nhiều chất trung gian miễn dịch như cytokine, chemokine, prostaglandin và các chất trung gian oxy phản ứng [115–118]. Việc sản xuất các cytokine và chemokine có thể tạo điều kiện thuận lợi cho việc tuyển dụng bạch cầu ngoại biên vào não [119].
Trong quá trình viêm thần kinh, microglia hoạt hóa di chuyển đến vị trí bị thương hoặc nhiễm trùng và thực hiện các chức năng miễn dịch quan trọng như thực bào các vi sinh vật xâm nhập và loại bỏ các tế bào chết hoặc bị hư hỏng [120,121].
Tuy nhiên, sự kích hoạt mãn tính của microglia thường được coi là có hại cho sức khỏe tế bào thần kinh [122]. Để đáp ứng với sự kích hoạt, microglia có thể phân cực thành kiểu hình M1 gây viêm hoặc kiểu hình M2 chống viêm, mặc dù các trạng thái kích hoạt vi mô đã được công nhận là mạnh hơn phức tạp [123].
Các kích thích khác nhau gây ra trạng thái kích hoạt classicM1 của microglia như LPS, interferon (IFN)-, amyloid (A) và -synuclein [118,124–126]. Thụ thể giống Toll 4 (TLR4), một thành viên của họ thụ thể nhận dạng mẫu, làm trung gian cho khả năng miễn dịch bẩm sinh và được biểu hiện nhiều ở microglia [127]. Kích hoạt vi mô phụ thuộc TLR{10}}đã được quan sát thấy ở nhiều bệnh thoái hóa thần kinh khác nhau như bệnh Alzheimer (AD) và bệnh Parkinson (PD) [128,129].
Ngoài ra, TLR4 còn là nguyên nhân gây viêm thần kinh mãn tính sau đột quỵ và chấn thương tủy sống dẫn đến tổn thương não [130]. TLR4 có thể được kích hoạt bởi nhiều mẫu phân tử liên quan đến mầm bệnh (PAMP), chẳng hạn như LPS, thành phần chính của màng ngoài của vi khuẩn gram âm [130].
LPS là một trong những phối tử TLR4 được nghiên cứu rộng rãi nhất để hiểu cơ chế kích hoạt vi mô trong quá trình thoái hóa thần kinh [127]. Ngoài phản ứng chống viêm nêu trên, microgliacan còn áp dụng kiểu hình M2 chống viêm.
Sau khi microglia M1 tấn công các sinh vật xâm lấn để hạn chế tổn thương mô, microglia M2 chống viêm sẽ tham gia vào quá trình thực bào các mảnh vụn tế bào và chữa lành vết thương [123]. Một kiểu hình ức chế miễn dịch khác được tạo ra bởi các cytokine IL-10 và TGF-, hoặc bởi các tế bào apoptotic [123].Microglia là nguồn quan trọng của AEA và 2-AG trong điều kiện cơ bản và trong quá trình viêm thần kinh [75– 77].
Khi được kích thích bằng ATP (được giải phóng từ mô bị tổn thương), microglia tự sản xuất 2-AG [77].
Biểu hiện thụ thể CB2 được điều chỉnh tăng trong microglia được kích thích bằng các cytokine gây viêm [131], cho thấy vai trò quan trọng của CB2 trong việc điều chỉnh các trạng thái viêm thần kinh. Hơn nữa, người ta đã chứng minh rằng 2-AG và PEA ảnh hưởng đến các tế bào vi mô và dẫn đến giảm số lượng tế bào thần kinh bị tổn thương sau các tổn thương do kích thích độc tố trong môi trường nuôi cấy lát cắt hồi hải mã kiểu tổ chức.

2-AG đã kích hoạt thụ thể cannabidiol (ABN-CBD) bất thường và PEA đã được chứng minh là có vai trò trung gian bảo vệ thần kinh thông qua PPAR- [132]. Chất chủ vận CB2 AM1241 cũng đã được chứng minh là làm giảm quá trình kích hoạt vi mô bằng cách giảm sự biểu hiện của enzyme tổng hợp oxit nitric cảm ứng và chuyển kiểu hình của chúng từ M1 sang M2 [133].
Microglia liên tục quét môi trường của chúng và do các quá trình dài hướng tới các khớp thần kinh có thể theo dõi và phản hồi trạng thái chức năng của các khớp thần kinh.
Microglia góp phần vào sự trưởng thành của mạch thần kinh và tham gia vào cả quá trình cảm ứng và đào thải khớp thần kinh.
Trong quá trình viêm thần kinh, việc kích hoạt kéo dài các tế bào vi mô bị thu hút vào các vị trí tổn thương có thể làm trầm trọng thêm tổn thương thần kinh. Người ta dự đoán rằng 2-AG, được tạo ra bởi các tế bào thần kinh bị kích thích quá mức, sẽ gây ra sự di chuyển của vi mô [76] và tăng sinh [134].
6.2. Tế bào hình sao
Tế bào hình sao là nhóm tế bào thần kinh đệm lớn nhất và phong phú nhất trong hệ thần kinh trung ương và đóng vai trò quan trọng trong việc điều hòa cân bằng nội môi của hệ thần kinh trung ương, sự truyền dẫn và độ dẻo của khớp thần kinh cũng như các tác dụng bảo vệ thần kinh. Glia phản ứng với hoạt động của tế bào thần kinh bằng cách tăng nồng độ Ca2+ bên trong chúng, điều này kích hoạt giải phóng các chất trung gian có nguồn gốc thần kinh đệm.
Thuật ngữ 'khớp thần kinh ba bên' mô tả sự giao tiếp hai chiều giữa tế bào hình sao và tế bào thần kinh, trong đó các tế bào hình sao gần đó phản ứng với hoạt động của khớp thần kinh và ngược lại, điều chỉnh sự truyền dẫn và độ dẻo của khớp thần kinh [135].
Các tế bào Schwann quanh khớp thần kinh và các tế bào hình sao liên kết với khớp thần kinh được xem như là các yếu tố điều hòa không thể thiếu của các khớp thần kinh ba bên. Kích hoạt CB1 trong tế bào hình sao khuếch đại dòng Ca2+ và thúc đẩy giải phóng các chất dẫn truyền glio, như glutamate (dẫn truyền thần kinh đệm), điều chỉnh phản ứng mục tiêu ở giai đoạn trước và sau khớp thần kinh các trang web [24].
Suy giảm trí nhớ làm việc không gian và suy giảm sức mạnh khớp thần kinh lâu dài (LTD) in vivo ở các khớp thần kinh CA1 vùng đồi thị CA3-, gây ra do tiếp xúc cấp tính với cannabinoids ngoại sinh, là do sự kích hoạt CB1 astroglial và có liên quan đến phụ thuộc astroglia Công ty TNHH hồi hải mã [136].
Do chúng nằm gần các mạch máu và các tế bào thường trú khác trong hệ thần kinh trung ương như tế bào thần kinh, microglia và tế bào ít nhánh, tế bào hình sao đóng một vai trò quan trọng trong việc duy trì và tính thấm BBB. Ngoài ra, tế bào hình sao còn tham gia vào việc điều chỉnh phản ứng miễn dịch bẩm sinh bằng cách điều chỉnh các yếu tố gây viêm, chẳng hạn như cytokine, chemokine, mảnh bổ thể, oxy phản ứng hoặc các loại nitơ phản ứng.
Tuy nhiên, tế bào hình sao bị rối loạn chức năng dường như đóng một vai trò quan trọng trong sự khởi phát của các bệnh thoái hóa thần kinh như AD và ALS (được xem xét trong [137]). Tế bào hình sao bị kích hoạt hoặc tái hoạt động trong các tình trạng bệnh lý khác nhau như đột quỵ, chấn thương, phát triển khối u và các bệnh thoái hóa thần kinh. Theo phân loại kiểu hình M1/M2 của vi tế bào thần kinh đệm và đại thực bào, tình trạng viêm thần kinh có thể tạo ra hai loại tế bào hình sao phản ứng, được gọi là A1 và A2 [138].
Trong tế bào hình sao phản ứng A1, con đường NF-κB gây viêm được điều chỉnh tăng lên dẫn đến giải phóng các yếu tố bổ sung [139] phá hủy các khớp thần kinh và bài tiết các chất độc thần kinh cũng như các chất trung gian tiền viêm và chống viêm như PGD2, IFN-, TNF- , IL-1- , và TGF-, tương ứng [140–142].
Hoạt động STAT3 được tăng cường ở tế bào hình sao phản ứng A2 đã được quan sát thấy [143]. Hơn nữa, tế bào hình sao phản ứng A2 có thể điều chỉnh tăng cường nhiều yếu tố dinh dưỡng thần kinh như Thrombspondin [144] và yếu tố dinh dưỡng thần kinh có nguồn gốc từ não (BDNF) [145,146], giúp thúc đẩy sự tồn tại và phát triển của tế bào thần kinh hoặc sửa chữa khớp thần kinh. Bằng chứng tích lũy ủng hộ vai trò của tế bào hình sao như một nguồn của eCB.
Người ta đã chứng minh rằng tế bào hình sao có khả năng tạo ra 2-AG để phản ứng với ATP [147],endothelin [148] và kích hoạt thụ thể CB1 [75,149]. Hơn nữa, sự tiết ra AEA, homo-gamma-linolenylanolamide (HEA) và docosatetraenoylanolamide (DEA) do tế bào hình sao chuột được kích hoạt đã được xác nhận [75].
Đáng chú ý, không chỉ các thụ thể cannabinoid vi mô mà cả các thụ thể CB1 và CB2 astroglial cũng đóng vai trò quan trọng trong phản ứng với tình trạng viêm thần kinh [33]. Kích hoạt thụ thể astroglialCB1 bảo vệ chống lại stress oxy hóa và apoptosis do ceramide gây ra [150,151] và kích hoạt cả hai thụ thể CB1 và CB2 dường như ngăn chặn sự giải phóng oxit nitric (NO) do LPS gây ra bởi tế bào hình sao được nuôi cấy [152].
Theo đó, 2-AG đã được chứng minh là duy trì sự biểu hiện glutamine synthase trong tế bào hình sao theo cách phụ thuộc vào MAPK và do đó bảo vệ tế bào hình sao khỏi tiếp xúc với LPS [153].
2-AG dường như cũng làm giảm quá trình sản xuất tế bào hình sao của chondroitin sulfate proteoglycan, chất này tích tụ trong các tổn thương MS và được cho là có liên quan đến việc không thể tái tạo, cản trở sự biệt hóa tế bào tiền thân oligodendrocyte và sự phát triển của tế bào thần kinh [154].
Hơn nữa, 2-AG bảo vệ tế bào hình sao bị thiếu oxy-glucose thông qua việc phong tỏa tín hiệu NDRG2 và quá trình phosphoryl hóa STAT3 [155]. 2-AG và PEA đã được chứng minh là làm giảm hoạt hóa tế bào hình sao do amyloid gây ra và PEA làm tăng sản xuất 2-AG trong tế bào hình sao [156–158]. PEA cũng được đề xuất để cải thiện khả năng sống sót của tế bào thần kinh bằng cách có thể chống lại bệnh astrogliosis phản ứng [159,160].
Sự ức chế kích hoạt tế bào hình sao qua trung gian PEA và OEA dường như liên quan đếnPPAR- [161,162]. Hơn nữa, AEA đã được chứng minh là có tác dụng giải phóng glutamate thông qua hoạt hóa thụ thể CB1 tế bào hình sao trong lõi của nhân tế bào ở chuột [163].
Tế bào hình sao được phân lập từ chuột mắc bệnh viêm não tủy tự miễn thực nghiệm cấp tính (EAE) cho thấy sự giảm ở tất cả các gen liên quan đến chuyển hóa endocannabinoid, ngoại trừ Faah, vẫn tồn tại trong bệnh mãn tính và có liên quan đến mức độ phiên mã Cnr1 giảm cả ở giai đoạn cấp tính và giai đoạn phục hồi [164].
Astrocytic- cùng với MAGL thần kinh dường như chịu trách nhiệm chuyển đổi 2-AG thành prostaglandin và do đó bảo vệ hệ thần kinh khỏi sự kích hoạt thụ thể CB1 quá mức [165].
6.3. Cytokine liên quan đến viêm thần kinh
Bên cạnh tế bào thần kinh đệm và tế bào hình sao, tế bào nội mô và các tế bào thần kinh đệm khác có thể sản xuất ra cytokine và chemokine. Các cytokine phổ biến được tạo ra để đáp ứng với chấn thương não hoặc trong các bệnh thoái hóa thần kinh có thể gây độc tế bào thần kinh là IL-6, IL-1 và TNF- [166]. Hơn nữa, việc giải phóng liên tục các cytokine này sẽ dẫn đến BBB bị tổn hại [167].
Sau đó, các tế bào miễn dịch ngoại biên như đại thực bào, bạch cầu trung tính, bạch cầu đơn nhân, tế bào T và tế bào B có thể di chuyển vào não. Quá trình này làm trầm trọng thêm và góp phần gây ra tình trạng viêm thần kinh mãn tính và thoái hóa thần kinh.
Ví dụ: sau chấn thương sọ não, IL{0}} gây ra hiện tượng apoptosis thần kinh, phân hủy BBB và huy động các tế bào miễn dịch cũng như sản xuất các chất trung gian gây viêm [168]. Hơn nữa, trong quá trình tổn thương tủy sống, sự tiết ra các chất trung gian gây viêm bao gồm IL-1, nitric oxit synthase cảm ứng (iNOS), IFN-, IL-6, IL-23 và TNF- tiếp theo là sự kích hoạt của microglia cục bộ và thu hút các tế bào miễn dịch khác nhau như các đại thực bào có nguồn gốc từ tủy xương [169].
Khi xâm nhập vào vị trí bị thương, đại thực bào trải qua quá trình chuyển đổi kiểu hình từ kiểu hình M2 sang kiểu hình giống M{1}}. Đáng chú ý, sự lão hóa bình thường thường liên quan đến việc tăng số lượng microglia hoạt hóa trong não có liên quan đến các cơ chế dẻo khớp thần kinh bị thay đổi ở vùng hải mã, bao gồm cả LTP và do đó làm giảm hiệu suất bộ nhớ [170].
Hơn nữa, bộ não của người già cho thấy sự mất cân bằng cân bằng nội môi giữa các cytokine chống viêm và gây viêm làm tăng nguy cơ mắc các bệnh thoái hóa thần kinh như AD.
Mặc dù các cytokine gây viêm có thể gây chết tế bào và tổn thương mô nhưng chúng cũng tham gia vào quá trình sửa chữa mô [171]. Ví dụ, TNF- gây nhiễm độc thần kinh ở giai đoạn đầu nhưng góp phần vào sự phát triển mô ở giai đoạn sau của quá trình viêm thần kinh.
Một số nghiên cứu đã nhấn mạnh tác dụng điều chỉnh của ECS đối với tình trạng viêm thần kinh bằng cách điều chỉnh việc sản xuất cytokine. Ví dụ: 2-AG đã được chứng minh là có tác dụng ngăn chặn sự biểu hiện quá mức của TNF- , IL-1 và iNOS trong mô hình chuột của SO2-viêm não do SO gây ra [172].
Sự thiếu hụt MAGL dẫn đến tăng 2-nồng độ AG cũng làm giảm nồng độ PGE2 trong não và cytokine gây viêm sau khi sử dụng LPS ngoại vi ở chuột [173].
Sự ức chế dược lý có chọn lọc của ABHD6 làm giảm sản xuấtcytokine và chemokine trong mô hình chuột bị đau thần kinh [174], và chất ức chế MAGL CPD-4645 làm giảm đáng kể nồng độ IL-1 và IL-6 trong não sau thử thách LPS toàn thân [ 175].
Chất ức chế FAAH URB597 làm suy giảm mức độ TNF- và IL-1 tăng lên ở vùng hải mã của chuột già [176] và làm giảm Iba-1, TNF- , IL-6 và protein hóa học đơn nhân{{ 7}} (MCP-1) ở vùng hải mã của chuột tiếp xúc với ethanol [177].
Chất ức chế FAAH PF3845 làm tăng nồng độ AEA, OEA và PEA ở vỏ não trán và vùng hải mã của chuột [178]. Hơn nữa, sự gia tăng mức cơ chất FAAH này có liên quan đến sự suy giảm mạnh mẽ về mức độ TNF-, IL-6 và IL-1 ở vỏ não trước trán.
PEA đã được chứng minh là làm giảm các cytokine gây viêm sau chấn thương tủy sống [179] và chấn thương não [180,181], trong mô hình chèn ép dây thần kinh tọa [182], trong mô hình bệnh Parkinson [183,184] và bệnh nhân MS [185]. Hơn nữa, việc quản lý OEA làm giảm đáng kể nồng độ TNF- trong huyết tương và não sau khi áp dụng LPS [186] vàSEA gần đây đã được chứng minh là có tác dụng ngăn chặn mức độ TNF- và TGF{11}} tăng lên ở vỏ não trước trán của những con chuột bị thử thách LPS [47]. Chủ nghĩa chủ vận thụ thể CB2 đã được chứng minh là làm giảm nồng độ các cytokine gây viêm trong não do ứng dụng LPS [187], xuất huyết nội sọ [188] hoặc phẫu thuật [189] cũng như trong mô hình PD [190].
Đồng thời, chất chủ vận đảo ngược thụ thể CB1SR141716A (rimonabant) và chất đối kháng thụ thể CB2 SR144528 làm giảm đáng kể việc sản xuất IL-1 do LPS gây ra trong não [191] trong khi SR141716A cũng được chứng minh là làm tăng các cytokine gây viêm trong mô hình EAE [192]. Tác dụng bảo vệ thần kinh của SR141716A đã được thể hiện trong mô hình thoái hóa võng mạc [193] và thiếu máu não cục bộ do quang huyết khối vĩnh viễn [194].

Những phát hiện này chỉ ra rằng việc thao tác với thụ thể CB1 hoặc CB2 có thể có giá trị điều trị trong tình trạng viêm thần kinh; tuy nhiên, do tính phức tạp của ECS, khái niệm này vẫn cần được xem xét cẩn thận.
For more information:1950477648nn@gmail.com


