Cơ quan thụ cảm P2X và chức năng thận
Mar 24, 2022
Liên hệ: Audrey Hu Whatsapp / hp: 0086 13880143964 Email:audrey.hu@wecistanche.com
Matthew A. Bailey1 ∗, Robert J. Unwin2 và David G. Shirley2
Tích lũy bằng chứng chỉ ra rằng hệ thống thụ thể ATP / P2, hoạt động theo cơ chế tự tiết hoặc nội tiết, có thể ảnh hưởng đến một loạt cácthậnchức năng. Các tiểu đơn vị thụ thể P2X đã được xác định trong hầu hết cácthậnmạch và trong mọi phân đoạn nephron; ATP được giải phóng từthậncác tế bào biểu mô và các enzym chịu trách nhiệm phân hủy ATP được thể hiện trong hệ mạch và ống. Kích thích thụ thể P2X1 trong tiểu động mạch hướng tâm bằng ATP được giải phóng từthậncác đầu cuối thần kinh hoặc từ các tế bào hoàng điểm lân cận gây co mạch và góp phần điều hòathậnhuyết động học. Trong ống thận, có bằng chứng cho một loạt các tác dụng qua trung gian P2X: ức chế tái hấp thu ở ống gần; ức chế hoạt động đồng vận chuyển Na cộng K cộng với 2Cl− (thông qua tăng tổng hợp oxit nitric) ở chi tăng dần dày của quai Henle; ức chế tái hấp thu magie ở ống lượn xa; và điều chế sự tái hấp thu natri và nước trong ống góp. Cuối cùng, các thụ thể P2X, đặc biệt là các tiểu đơn vị P2X7, dường như đóng một vai trò quan trọng trong bệnh lý thận, đặc biệt đối với sự hình thành u nang ởđa nangquả thậndịch bệnhvà trongthậnviêm. © 2012 WILEY-VCH Verlag GmbH & Co. KGaA, Weinheim.

cistanche đánh giá: cải thiện thậnquả thậnhàm số
GIỚI THIỆU
Nucleotide và các thụ thể P2 đảm nhiệm một loạt các vai trò sinh lý trong cơ thể. Mặc dù kiến thức về tác dụng của hệ thống tự tiết / nội tiết của hệ thống này trongthậnđã tụt hậu so với các cơ quan / mô khác, thập kỷ qua đã chứng kiến những tiến bộ lớn trong việc thu hẹp khoảng cách. Cho đến nay, hầu hếtthậncác cuộc điều tra đã tập trung vào các thụ thể P2Y1; thông tin về các thụ thể P2X ở thận và chức năng của chúng bị hạn chế hơn.
BÍ MẬT CỦA ATP TRONG KIDNEYS
Hầu như tất cả các tế bào đều có thể giải phóng nucleotide, vàthậncác tế bào biểu mô và mạch máu cũng không ngoại lệ. Vekaria và cộng sự đã báo cáo nồng độ ATP trong ống tủy sống trong ống lượn gần của chuột (PCTs) in vivo là 200–300 nmol / L, cao hơn rõ rệt so với nồng độ trong dịch lọc cầu thận, cho thấy sự bài tiết ATP của tế bào PCT. Sử dụng các chi tăng dần (kim loại) dày lên tủy của chuột được tưới máu trong ống nghiệm, nhóm của Leipziger đã chỉ ra rằng sự gia tăng áp lực nội tủy dẫn đến tăng Ca2 cộng trong tế bào ([Ca2 plus] i) mà bản thân chúng phụ thuộc vào sự giải phóng nucleotide.3 Trong một nghiên cứu tiếp theo Tế bào hình sao biểu hiện thụ thể P2Y2 được sử dụng làm cảm biến sinh học để chứng minh sự giải phóng nucleotide tự phát và chủ vận. Vasopressin tạo ra nồng độ nucleotide nội tủy tối đa 200–300 nmol / L. Vì thụ thể P2Y2 không thể phân biệt giữa UTP và ATP, nên không thể xác định được (các) nucleotide cụ thể được giải phóng. Trong cùng một nghiên cứu, Odgaard và cộng sự nhận thấy rằng vasopressin cũng kích hoạt sự tiết nucleotide từ ống góp vỏ não chuột (CCD) được tưới máu trong ống nghiệm; nồng độ trong dịch vị lại tiếp cận 300 nmol / L.
Mặc dù những nồng độ này có thể thấp hơn ngưỡng kích hoạt thụ thể P2X, nhưng các phép đo pha số lượng lớn gần như chắc chắn đánh giá thấp nồng độ ở màng tế bào, vì ectonucleotidase chuyển hóa nhanh chóng các nucleotide được tiết ra (xem bên dưới).
(Các) cơ chế giải phóng ATP
Cơ chế tiết nucleotit từthậntế bào hình ống chưa được thành lập và có thể khác nhau giữa các phân đoạn. Sự xuất bào của túi chứa ATP là một trong những khả năng xảy ra; Ngoài ra, nhiều kênh / chất vận chuyển khác nhau đã được liên hệ.5 Kênh maxi-anion làm trung gian vận chuyển ATP qua màng đáy của tế bào điểm vàng để đáp ứng với việc tăng phân phối NaCl6 (xem bên dưới). Các kênh điều hòa độ dẫn truyền qua màng (CFTR) của bệnh xơ nang cũng được coi là một con đường của dòng chảy, nhưng khả năng này không nhận được sự ủng hộ chắc chắn.5 Bằng chứng về vai trò của các kênh huyết cầu liên kết (Cx) trong việc giải phóng ATP ở nephron xa đã được đưa ra. từ một nghiên cứu sử dụng chuột loại trực tiếp Cx30.7 CCDs mở một phần là vi phân trong ống nghiệm và các cảm biến sinh học biểu hiện thụ thể P2X2 được đặt tiếp xúc trực tiếp với màng đỉnh của tế bào CCD. Ở chuột hoang dã, sự gia tăng dòng chảy trong ống dẫn đến sự nhạy cảm với suramin (tức là qua trung gian nucleotide) làm tăng [Ca2 cộng] I trong tế bào cảm biến sinh học, trong khi phản ứng hầu như không có ở chuột loại trực tiếp Cx30. Tuy nhiên, có những nghi ngờ rằng các kênh máu Cx mở trong các điều kiện sinh lý. Ngược lại, các pannexin tương đồng về cấu trúc có thể được kích hoạt bằng cách khử cực màng trong phạm vi sinh lý. Pannexin cũng có thể tạo thành huyết cầu thấm ATP, nhưng sẽ cần các nghiên cứu sâu hơn để xác định vai trò của chúng, nếu có, trongquả thận.5
ECTONUCLEOTIDASES
Nucleotides được giải phóng từthậnhệ mạch và từ các tế bào biểu mô bị phân hủy nhanh chóng bởi các enzym định vị và hòa tan trên bề mặt (ectonucleotidases) thành các nucleotide khác nhau hoặc các nucleoside. Bốn họ ectonucleotidases tồn tại ectonucleoside triphosphate phosphohydrolase (NTPDases), ectonucleotide pyrophosphatase phosphodiesterase (NPP), ecto -5 '-nucleotidase và phosphatase kiềm. Các thành viên của cả bốn gia đình đã được xác định trongquả thận.8 Vì phối tử chính cho các thụ thể P2X là chính ATP, nên có khả năng các enzym này có ảnh hưởng sâu sắc đến các hiệu ứng qua trung gian P2X. Ngoài các enzyme phân hủy nucleotide, hai họ enzyme phosphoryl hóa tồn tại các kinase nucleoside diphosphate, xúc tác chuyển photphat đầu cuối của nucleoside 5 -triphosphates thành nucleoside 5 -diphosphates, và adenylate kinase, xúc tác sản xuất ADP từ ATP và AMP hoặc ngược lại, tùy thuộc vào nồng độ của các nucleotide tương ứng. Mặc dù ban đầu được cho là bị hạn chế đối với tế bào, nhưng có bằng chứng cho thấy các enzym phosphoryl hóa cũng có trong màng tế bào.quả thậnđược tóm tắt trong Bảng 1.

Họ NTPDase bao gồm tám thành viên, bốn trong số đó (NTPDases 1, 2, 3 và 8) thủy phân các nucleotide ngoại bào. NTPDase1 thủy phân ATP và ADP với ưu tiên gần như ngang nhau, trong khi NTPDase2 có ưu tiên hơn nhiều đối với ATP, do đó gây ra tích tụ ADP; NTPDase 3 và 8 là yếu tố trung gian trong sở thích của chúng.8 Ở chuột cống và chuột nhắt, NTPDase1 nổi bật trong hầu hết cácthậnmạch máu và cũng có ở chi tăng dần của Henle và ống góp tủy (CD). NTPDase2 đã được miễn dịch hóa trong viên nang Bowman và hầu hết các phân đoạn nephron ngoài ống lượn gần; sự biểu hiện trong tuyến thượng thận của NTPDase3 chỉ được nghiên cứu ở chuột, giống như NTPDase2, nó được tìm thấy ở chi dày lên trên (TAL), ống lượn xa và CD.8. Thông tin về NTPDase8 không đầy đủ.
Gia đình NPP bao gồm bảy thành viên, nhưng chỉ NPP1 đến NPP3 là có thể thủy phân nucleotide. Thông tin về sự phân phối nội tuyến của các NPP bị hạn chế. Nhuộm cho protein NPP1 đã được xác định trong các ống lượn gần của chuột và trong các màng đáy của ống lượn xa; trong khi sự nhuộm màu nổi bật cho NPP3 đã được tìm thấy ở cầu thận chuột và ở màng đỉnh của trực tràng pars, nhưng không phải ở các đoạn xa hơn.8 Ecto -5 -nucleotidase xúc tác giai đoạn cuối cùng của quá trình thủy phân nucleotide thành nucleoside. Nó được tìm thấy trong màng đỉnh của PCT chuột và trong các tế bào xen kẽ khắp nephron xa, cũng như không gian phúc mạc.8
Alkaline phosphatase đã được xác định trong màng đỉnh của PCT và pars trực tràng của chuộtthận. Mặc dù phosphatase kiềm có tính đặc hiệu cơ chất rộng, có khả năng phá vỡ ATP thông qua adenosine, giá trị Km đối với nucleotide adenin nằm trong khoảng milimolar thấp, làm dấy lên nghi ngờ về ý nghĩa sinh lý của enzyme này liên quan đến sự phân hủy nucleotide.
Lợi ích sức khỏe của cistanche tubolosa: cải thiệnquả thậnhàm số
BỘ NHẬN VÀ CHỨC NĂNG GIA HẠN P2X
Khi xem xétthậncác hoạt động được quy cho các thụ thể P2X, điều quan trọng cần nhớ là chúng có khả năng hoạt động cùng với nhiều thụ thể P2Y hiện diện trong toàn bộ hệ mạch vàthậnbiểu mô. Hơn nữa, màng plasma của bất kỳthậntế bào có thể chứa nhiều loại phụ thụ thể P2 và trong tế bào biểu mô, quần thể thụ thể có thể khác nhau ở vùng đỉnh và vùng đáy. Mặc dù việc chỉ định một phản ứng sinh lý cụ thể cho một thụ thể P2 nhất định đã được chứng minh là khó khăn, một số phương pháp có thể được sử dụng để tăng độ phân giải. Đầu tiên, các kỹ thuật hóa mô miễn dịch có thể xác định các kiểu phụ hiện diện trong vùng (và nếu có thể, vùng màng) được quan tâm. Thứ hai, các phương pháp tiếp cận dược lý có thể được sử dụng để kích thích hoặc đối kháng với các thụ thể cụ thể tại chỗ. Tuy nhiên, tại thời điểm viết bài, thiếu một chất chủ vận thực sự chọn lọc cho bất kỳ tiểu đơn vị P2X nào, mặc dù một số chất đối kháng chọn lọc có sẵn như Ip5I (chất đối kháng P2X1) và A -740003 (chất đối kháng P2X7) .10 Do đó, Thông thường cần phải so sánh các phản ứng của từng cá nhân với nhiều loại thuốc chủ vận khác nhau để cung cấp hồ sơ dược lý từ đó có thể rút ra các kết luận dự kiến.
Một cách tiếp cận bổ sung là sử dụng những con chuột 'loại bỏ' trong đó gen mã hóa thụ thể quan tâm đã bị xóa. Tuy nhiên, điều này không phải là không có những vấn đề tiềm ẩn của riêng nó. Sự xóa toàn bộ của một loại phụ thụ thể thực hiện một chức năng quan trọng có khả năng dẫn đến những thay đổi bù đắp. Cấu hình thụ thể P2 trongquả thậnsau đó có thể thay đổi để khôi phục tốc độ bài tiết tổng thể, sau đó có thể dẫn đến kết luận sai lầm về vai trò bình thường của thụ thể. Hệ thống Cre-loxP bổ sung một mức độ tinh chỉnh đối với phương pháp tiếp cận nhắm mục tiêu gen, cho phép loại bỏ mô cụ thể hoặc loại tế bào, nhưng điều này vẫn chưa được sử dụng trong nghiên cứu thụ thể P2 ở thận.
PHÂN PHỐI CÁC ĐẦU THU P2X TRONG KIDNEY
Mạch máu
Hình 1 (A) tóm tắt kiến thức hiện tại về sự phân bố của các thụ thể P2X trongthậncấu trúc mạch máu và hình ống ở chuột. Các phân tích hóa mô miễn dịch và phương Tây chỉ ra rằng các thụ thể P2X1 có trong cơ trơn mạch máu của chuộtthận, động mạch vòng cung, và động mạch liên cầu và trong tiểu động mạch hướng tâm, nhưng không phải, tiểu động mạch.11 Tiểu đơn vị P2X2 đã được miễn dịch hóa trong cơ trơn của các động mạch và tĩnh mạch lớn hơn trongquả thận, 11 và bằng chứng phân tử gần đây đã được cung cấp cho các tiểu đơn vị P2X4, ít nhất là trong động mạch vòng cung và liên động mạch.12 Trên cơ sở phát hiện mRNA và / hoặc lưu trữ chất chủ vận trong hệ thống nuôi cấy tế bào, P2X2,3,4,5, và 7 các tiểu đơn vị đã được xác định trong các tế bào trung mô cầu thận, nhưng trong số này, chỉ có biểu hiện thấp và thay đổi của hoạt tính miễn dịch P2X7 được tìm thấy ở cầu thận chuột.13


HÌNH 1|Các thụ thể P2X trong thận chuột. (A) Bản địa hóa. Chỉ những thụ thể đó mới thu được bằng chứng chắc chắn từ các nghiên cứu hóa mô miễn dịch và / hoặc phương pháp thấm phương Tây. Nếu có thể, vị trí đỉnh (a), đáy (b), hoặc nội bào (trong) được chỉ định. (B) Tác động giả định của việc kích thích thụ thể P2X trênquả thậnhàm số.
Tubule
Các nghiên cứu hóa mô miễn dịch đã xác định được biểu hiện hai bên của thụ thể P2X6 ở chuột PCT và biểu hiện đỉnh của thụ thể P2X5 trong phân đoạn S3 của trực tràng phân tích cú pháp; Biểu hiện mức độ thấp của protein P2X4 cũng được nhìn thấy trong PCT, mặc dù vùng màng không được xác định.13
Ở chuột, các chi mỏng dần và đi lên của Henle, có một số bằng chứng hóa mô miễn dịch cho các thụ thể P2X4 và P2X6 (không nêu miền màng; Tham khảo 13). Điều tương tự cũng áp dụng cho TAL. Ngoài ra, một nghiên cứu về bộ sao mã TAL của chuột đã tìm thấy bằng chứng cho các thụ thể P2X3 cũng như P2X4.14 Bằng chứng chức năng cho các thụ thể P2X cơ bản được cung cấp bởi Jensen và cộng sự, 3 người đã cho thấy ở chuột mTAL rằng ứng dụng cơ bản của ATP gây ra đỉnh ban đầu trong [Ca2 plus] tôi theo sau là một bình nguyên bền vững; trong khi đỉnh ban đầu bị giảm nồng độ trong mTAL từ những con chuột loại trực tiếp P2Y2, giai đoạn bình nguyên vẫn tồn tại, cho thấy sự hiện diện của một thụ thể P2 bên cơ bản bổ sung. Vì giai đoạn cao nguyên phụ thuộc vào Ca2 cộng với ngoại bào, các tác giả đã đề xuất một thụ thể P2X có thể thấm Ca2 cộng với.
Ở nephron xa, các nghiên cứu hóa mô miễn dịch đã xác định được các thụ thể P2X4 và P2X6 trên màng đáy của ống lượn xa của chuột, 13 và một loạt các thụ thể P2X đã được xác định trong CD. Hóa mô miễn dịch đã chỉ ra sự biểu hiện của P2X1 (chỉ ở chuột hạn chế natri; chỉ có tế bào xen kẽ), tiểu đơn vị P2X2, P2X4, P2X5 và P2X6 trong CCD và CD tủy.13,15 Đối với khu trú màng trong tế bào chính, P2X4 và 6 là được tìm thấy ở cả màng đỉnh và màng đáy; nhuộm cho P2X2 và 5 tiểu đơn vị được chỉ định là 'nội bào'.15 Ở chuột, hóa mô miễn dịch đã khu trú các tiểu đơn vị P2X1 và P2X4 vào màng đỉnh của tế bào CD tủy.16 Phân tích trên ngườiquả thậnhệ Phiên mãnhận thấy rằng trong số các thẻ cho 258 gen mang lại đặc tính vận chuyển, thụ thể P2X duy nhất được phát hiện với số lượng đáng kể trong CD là P2X4. 17
ẢNH HƯỞNG CỦA VIỆC KÍCH THÍCH ĐẦU THU P2X
Các tác động sinh lý của việc kích hoạt thụ thể P2X trongthậnhệ mạch và các phần của ống được tóm tắt trong Hình 1 (B).
Mạch máu
Truyền ATP vàothậnthay đổi động mạchthậnsức cản mạch máu, mặc dù bản chất và độ lớn của đáp ứng phụ thuộc vào trương lực mạch máu nền. Sử dụng chuột được tưới máu biệt lậpquả thậnchuẩn bị, các động mạch cầu thận tương đối không nhạy cảm với ATP, nồng độ vi cực được yêu cầu để gây ra sự co mạch thoáng qua, trong khi tiểu động mạch hướng tâm trải qua sự co lại bền vững ở nồng độ trong khoảng dưới âm sắc. Các tiểu động mạch tràn hoàn toàn không phản ứng với ATP.11 Vì vậy, trong quá trình chuẩn bị này, việc sử dụng ATP trong tuyến thượng thận thường là co mạch, do kích thích các thụ thể P2X1. Tuy nhiên, khi đường cơ sởthậnsức cản mạch máu cao, ATP gây giãn mạch, do sản xuất nitric oxide (NO) qua trung gian P2Y .11 Nhóm thụ thể chiếm ưu thế, cũng như nguồn và nồng độ cục bộ của nucleotide ngoại bào, do đó sẽ ảnh hưởng đến phản ứng sinh lý thực. ATP được giải phóng từthậnđầu cuối thần kinh sẽ tác động trực tiếp lên cơ trơn mạch máu, gây co mạch qua trung gian P2X 1-, trong khi việc giải phóng ATP ở vùng lân cận của thụ thể P2Y nội mô sẽ thúc đẩy tổng hợp NO và giãn mạch.

Cistanchetốt choquả thậnhàm số
Cơ chế điều tiết thận
Tự động điều chỉnhthậnlưu lượng máu là kết quả của ảnh hưởng tổng hợp của ít nhất hai cơ chế: phản ứng nội sinh của cơ trơn mạch máu và phản hồi cầu thận (TGF). Đáp ứng myogenic hoạt động dọc theo cây mạch máu cầu thận, đáp ứng với sự gia tăng áp lực xuyên màng cứng do dòng canxi qua trung gian kênh và do đó là sự co mạch của cơ trơn mạch máu. Các cơ chế truyền tín hiệu chính xác không được xác định, nhưng có liên quan đến sự giải phóng cục bộ của ATP. Trong tiểu động mạch hướng tâm, sự co mạch qua trung gian áp suất bị giảm rõ rệt bởi các chất đối kháng thụ thể P2 PPADS hoặc suramin hoặc bởi sự bão hòa và giải mẫn cảm sau đó của hệ thống thụ thể P2. Vai trò trung tâm của hệ thống P2 được nhấn mạnh hơn nữa qua các thí nghiệm trên chuột thiếu P2X 1-, trong đó việc giảm đường kính tiểu động mạch hướng tâm do áp suất gây ra bị loại bỏ.11 Điều này có thể có ý nghĩa lâm sàng vì chức năng thụ thể P2X1 bị suy giảm có thể làm cơ sở cho sự suy giảm trong quá trình tự điều chỉnh liên quan đến tăng huyết áp.18
TGF là một cơ chế theo đó thay đổi nồng độ NaCl trong chất lỏng chảy ra từ quai Henle (gây ra bởi sự thay đổi tốc độ dòng chảy của dịch ống) gây ra những thay đổi nghịch đảo tốc độ lọc cầu thận của nephron gốc. TGF được trung gian bởi bộ máy cầu thận cạnh (JGA), bao gồm một cảm biến - điểm vàng và một bộ tạo hiệu ứng - các tế bào hạt của tiểu động mạch hướng tâm; các thành phần khác của JGA (ví dụ, tế bào trung bì) cũng đóng một vai trò.
Bell và cộng sự. đã chứng minh sự giải phóng ATP qua màng đáy của tế bào điểm vàng để đáp ứng với nồng độ NaCl tăng lên trong phạm vi sinh lý, và nồng độ ATP trong kẽ vỏ não được chứng minh là đáp ứng thích hợp với sự ức chế hoặc hoạt hóa TGF in vivo.6 Điều này gợi ý rằng ATP là phân tử tín hiệu chính cho TGF, hoạt động trên các thụ thể P2X1. Tuy nhiên, các thí nghiệm nhắm mục tiêu gen chỉ ra rằng ATP có thể không phải là tín hiệu cuối cùng mà qua đó TGF gây ra sự co thắt của tiểu động mạch hướng tâm; thủy phân ATP thành adenosine dường như là rất quan trọng. Các phản ứng TGF in vivo bị giảm độc lực ở những con chuột thiếu thụ thể adenosine A1 hoặc ecto -5 '- nucleotidase, loại enzyme xúc tác giai đoạn cuối cùng của quá trình phân giải ATP thành adenosine.11 Hơn nữa, một nghiên cứu in vivo gần đây cho thấy truyền tĩnh mạch Các chất đối kháng thụ thể ATP không có tác dụng lên TGF.19
Tubule
Ống gần
Tác động chính được thiết lập của kích thích thụ thể P2 ở ống lượn gần là ức chế tái hấp thu natri bicarbonat do giảm hoạt tính của chất trao đổi Na cộng / H ở đỉnh (NHE3). Tuy nhiên, có rất ít nghi ngờ, trên cơ sở điều trị chủ vận / đối kháng chọn lọc, điều này được trung gian bởi thụ thể P2Y1 đỉnh, chứ không phải P2X, các thụ thể. và tạo gluconeogenesis, nhưng, một lần nữa, các thụ thể P2Y dường như chịu trách nhiệm. Sự thống trị của thụ thể P2Y trong phân đoạn này gần đây đã bị thách thức bởi một nghiên cứu trong đó các chất chủ vận thụ thể P2X, meATP và meATP được truyền vào tĩnh mạch cho chuột đã được gây mê. Mỗi thuốc chủ vận đều có tác dụng lợi tiểu natri và tăng độ thanh thải lithi (một chỉ số phân phối chất lỏng ở ống gần tận cùng) khi không có sự thay đổi về GFR; Hoạt động của Na cộng với K cộng với ATPase trong các ống lượn gần cô lập cũng bị ức chế.21 Không xác định được (các) loại phụ thụ thể P2 chịu trách nhiệm về tác dụng ức chế này đối với sự tái hấp thu ở ống gần.
Vòng Henle
Ý nghĩa chức năng của các thụ thể P2 trong các chi mỏng của Henle vẫn chưa rõ ràng, nhưng một loạt các thí nghiệm in vitro của nhóm Garvin đã cung cấp bằng chứng về tác dụng của ATP trong TAL. Trong huyền phù tế bào của mTAL chuột, ATP làm tăng sản xuất NO nội bào theo cách phụ thuộc vào nồng độ, nhạy cảm với suramin. Trên cơ sở meATP cũng gây ra sự gia tăng sản xuất NO, người ta lập luận rằng các thụ thể P2X chịu trách nhiệm chính, mặc dù đã lưu ý rằng UTP chủ vận P2Y2 / 4 cũng có tác dụng yếu.22 Enzyme chịu trách nhiệm sản xuất NO là NO synthase 3 (NOS3): ATP không thể kích thích sản xuất NO trong tế bào TAL từ chuột loại NOS3. NO (và ngụ ý, ATP) có thể làm giảm vận chuyển TAL bằng cách ức chế hoạt động của NKCC -2 ở đỉnh và (ở mức độ thấp hơn) trao đổi Na plus / H plus. ATP làm giảm liều lượng tiêu thụ oxy của TAL phụ thuộc và điều này bị chặn bởi liều suramin hoặc milimolar của chất ức chế NOS L-NAME. MeATP chủ vận P2X cũng làm giảm tiêu thụ oxy, trong khi chất đối kháng P2X NF023 ngăn chặn hoạt động của ATP. vận chuyển chất điện phân trong vòng Henle in vivo.
Ống xa
Không có nghiên cứu trực tiếp nào được thực hiện ở các ống lượn xa bản địa; do đó, kiến thức của chúng ta về vai trò của các thụ thể P2 trong các phân đoạn nephron này là rời rạc và chỉ giới hạn trong các phát hiện từ các nghiên cứu về nuôi cấy sơ cấp của các tế bào bản địa hoặc các dòng tế bào xa hoặc 'giống xa' bất tử. Việc kích hoạt các thụ thể được đặc trưng về mặt dược lý là P2X (miền màng không được nêu) trong dòng tế bào ống lượn xa của chuột bất tử đã được chứng minh là có thể ức chế tái hấp thu magie. Ngoài ra, các tế bào nuôi cấy từ các ống nối của thỏ đáp ứng với ATP ngoại bào với sự gia tăng [Ca2 cộng] I và ức chế hấp thu natri và canxi. Trong trường hợp này, việc lập hồ sơ dược lý liên quan đến các thụ thể P2Y2 (trên cơ sở tính tương đương của ATP và UTP), nhưng không thể loại trừ sự đóng góp của các thụ thể P2X.20
Ống thu gom
Các nucleotide ngoại bào, hoạt động từ cả hai phía đỉnh và đáy, có thể có những tác động đáng kể đến việc xử lý nước và điện giải trong CD — vị trí cuối cùng của việc điều tiết lượng nước tiểu.
Hiện nay đã có nhiều bằng chứng cho thấy sự kích thích thụ thể P2 ức chế tính thấm nước thẩm thấu do vasopressin kích thích trong CD do làm giảm nồng độ cAMP nội bào và tăng PGE2 nội bào. 23 Trên cơ sở phân tích chất chủ vận, sự ức chế được tìm thấy ở chuột là do các thụ thể P2Y2 và các nghiên cứu về sự xóa gen ủng hộ gợi ý này.24 Tuy nhiên, một nghiên cứu gần đây trên dòng tế bào CCD chuột được nuôi cấy, bất tử (mpkC-CDc14) đã cung cấp bằng chứng về sự tham gia của các thụ thể P2X trong tác dụng ức chế tái hấp thu nước qua trung gian vasopressin. Việc áp dụng dDAVP vào màng đáy dẫn đến hiện tượng huỳnh quang miễn dịch AQP2 được đánh dấu ở màng đỉnh, nhưng khi ATP sau đó được thêm vào môi trường, cả đỉnh hoặc mặt đáy, AQP2 được nội hóa.25 Điều trị bằng dDAVP dẫn đến sự chuyển vị của các phân nhóm P2X2 và P2Y2 sang tương ứng là màng đỉnh và màng đáy. Khi các thụ thể P2 cùng biểu hiện với AQP2 trong tế bào trứng Xenopus, việc kích hoạt các thụ thể P2X2 và P2Y2 (và cả các thụ thể P2Y4) làm giảm sự phong phú của màng tế bào AQP2 và tính thấm nước qua trung gian AQP {{26} }.25 Những phát hiện này cho thấy ngoài P2Y2 hai bên các thụ thể, các thụ thể P2X2 nằm trên đỉnh có thể góp phần điều hòa quá trình vận chuyển nước được kích thích AQP 2-.
Tác dụng của kích thích thụ thể P2 trong CD không chỉ giới hạn trong việc vận chuyển nước; một hành động riêng biệt là ức chế tái hấp thu natri qua trung gian ENaC. Các nghiên cứu trên các dòng tế bào và nuôi cấy sơ cấp đã liên tục cho thấy sự ức chế vận chuyển natri nhạy cảm với amiloride (hoặc benzamil-). Loại phụ thụ thể P2 chịu trách nhiệm đã được gán khác nhau cho P2Y2 hoặc P2X3 hoặc 4. 20 Là một ngoại lệ cho những phát hiện này, Li và cộng sự đã báo cáo sự gia tăng dòng điện ngắn mạch sau khi kích thích P2X1 và / hoặc 4 trong dòng tế bào CD của chuột (IMCD -3), mặc dù độ nhạy amiloride không được kiểm tra. Trong CD của chuột bản địa, ATP được tưới trong ống nghiệm, đỉnh hoặc đáy ức chế tái hấp thu natri, một tác động do giảm xác suất mở ENaC. Hồ sơ dược lý và việc sử dụng chuột biến đổi gen chỉ ra hiệu ứng qua trung gian P2Y {{18} }.26 Ngược lại, một nghiên cứu in vivo trên chuột cho thấy rằng tác dụng ức chế của nucleotide đối với sự tái hấp thu natri là hiệu ứng qua trung gian P2X.20 In bối cảnh này, một cuộc điều tra kẹp bản vá về CCD chuột mở tách đôi đã cung cấp bằng chứng rằng cả hai thụ thể P2X và P2Y đỉnh có thể ảnh hưởng đến hoạt động của ENaC.15 Kích hoạt các thụ thể P2Y (các loại phụ P2Y2 và / hoặc P2Y4) ức chế hoạt động của ENaC, trong khi kích hoạt P2X các thụ thể, (thụ thể P2X4 và / hoặc P2X4 / 6), hoặc hoạt động ENaC bị ức chế hoặc tăng cường, tùy thuộc vào nồng độ sáng của natri. Khi natri luminal là 50 mM (bắt chước nồng độ sinh lý bình thường), hoạt động kích hoạt P2X4 và / hoặc 4/6 làm tăng hoạt tính ENaC, trong khi khi natri luminal cao (145 mM), sự hoạt hóa P2X4 và / hoặc 4/6 ức chế hoạt động của ENaC. Hiệu quả thực sự của những hành động này là ức chế mạnh mẽ sự vận chuyển qua trung gian ENaC ở nồng độ natri trong dạ dày cao, và chỉ ức chế nhẹ ở nồng độ natri trong miệng thấp (Hình 2).
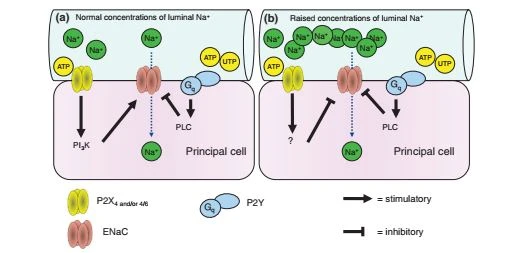
HÌNH 2|Đề xuất điều chỉnh hoạt động ENaC bởi các thụ thể P2X trong các tế bào chính của ống góp chuột (CD). Giả thuyết cho rằng hoạt động của ENaC trong CD chuột được điều hòa khác biệt bởi các thụ thể P2X4 và / hoặc 4/6 tùy thuộc vào nồng độ của Na plus. A. Khi nồng độ của Na cộng sáng ở mức bình thường (tức là ∼50 mM), sự hoạt hóa các thụ thể P2X4 và / hoặc 4/6 được biểu hiện ở đỉnh làm tăng hoạt tính ENaC thông qua sự hoạt hóa PI3K. Ngược lại, việc kích hoạt các thụ thể P2Y được biểu hiện theo đỉnh sẽ ức chế hoạt động của ENaC thông qua việc kích hoạt PLC. NBT Tác động tổng thể của việc kích hoạt thụ thể P2 (tức là P2X và P2Y, bằng cách sử dụng ATP) là một mức độ nhỏ ức chế ENaC. B. Khi nồng độ của Na cộng sáng cao (tức là 145 mM), sự hoạt hóa của thụ thể P2X4 và / hoặc 4/6 dẫn đến ức chế hoạt động của ENaC theo một cơ chế chưa được xác định, có thể liên quan đến dòng Na cộng. Như trước đây, việc kích hoạt các thụ thể P2Y biểu hiện theo đỉnh sẽ ức chế hoạt động của ENaC thông qua việc kích hoạt PLC. Hiệu quả tổng thể của việc kích hoạt thụ thể P2 (tức là cả P2X và P2Y, bằng cách sử dụng ATP) là mức độ ức chế ENaC lớn hơn nhiều. (Tái bản với sự cho phép của Ref 15. Copyright 2008 American Society of Nephrology)

cistanche được sử dụng để làm gì: cải thiện tình dục
BỘ NHẬN PHÉP P2X TRONG SINH LÝ HỌC PHÉP THUẬT
Bệnh thận đa nang
Đa nangquả thậndịch bệnh(PKD) có liên quan đến sự gia tăng không kiểm soát củathậncác tế bào biểu mô và sự vận chuyển chất lỏng bị rối loạn, gây ra sự hình thành và mở rộng của các u nang chứa đầy chất lỏng và sau đó phá hủy các mô bình thường xung quanh. Trong nuôi cấy, các tế bào PKD của người giải phóng nhiều ATP hơn so với các tế bào hình ống gần bình thường, chủ yếu từ bề mặt đỉnh của chúng. ATP tập trung trong dịch nang, phản ánh cả dòng chảy ATP tăng lên và giảm hoạt động của ecto-ATPase.27 ATP ngoại bào này, hoạt động trên các thụ thể P2 trên các tế bào lót nang, thúc đẩy cả sự phát triển của tế bào và sự tiết dịch. Hơn nữa, việc kích hoạt các thụ thể P2X7 có thể thúc đẩy quá trình apoptosis và tái tạo, cho phép mở rộng thêm nang. Để hỗ trợ điều này, biểu hiện protein thụ thể P2X7 đã được báo cáo trong biểu mô nang củacpk / cpkmô hình chuột của PKD lặn NST thường. Sử dụng các tế bào được phân lập từ mô hình này, BzATP chủ vận thụ thể P2X được sử dụng rộng rãi làm giảm số lượng u nang, nhưng không làm giảm kích thước u nang. Trong một mô hình chuột (Han-SPRD) của PKD trội tự động, mRNA gia tăng cho phân loại P2X7 đã được phát hiện trong các tế bào lót nang, mặc dù sự gia tăng tương tự trong mRNA mã hóa các thụ thể P2 khác cũng được báo cáo, cho thấy có sự tác động lẫn nhau phức tạp của các loại phụ thụ thể trong PKD .27
Viêm thận
Về sức khỏe,thậnbiểu hiện của thụ thể P2X7 rất thấp nhưng tăng lên rõ rệt trong một số tình trạng bệnh lý như các mô hình gặm nhấm của bệnh đái tháo đường và cao huyết áp.27 Kích thích thụ thể P2X7 kéo dài gây hình thành lỗ chân lông, dẫn đến ly giải và cuối cùng là chết tế bào; Các thụ thể P2X7 cũng có thể làm trung gian cho phản ứng viêm thông qua việc giải phóng các cytokine như IL -1 và IL -18. 28 Trong mô hình động vật gặm nhấm bị viêm cầu thận tăng sinh, sự gia tăng biểu hiện cầu thận của P2X7 là trùng hợp với khởi phát protein niệu. Hơn nữa, loại bỏ gen thụ thể P2X7 hoặc điều trị bằng chất đối kháng thụ thể P2X7 làm giảm mức độ nghiêm trọng của bệnh.28 Cuối cùng, vai trò tiềm năng của thụ thể P2X7 trongthậnxơ hóa đã được nghiên cứu trên một mô hình chuột về tắc nghẽn niệu quản một bên. Biểu hiện thoáng qua của P2X7 được phát hiện trong các tế bào biểu mô ống sau tắc nghẽn; và sự xâm nhập của đại thực bào, sự xơ hóa và sự biểu hiện của TGF- đều bị giảm độc lực ở những con chuột loại bỏ thụ thể P2X7.28
Tóm lại, mặc dù các chi tiết vẫn chưa được thiết lập, rõ ràng là các thụ thể P2X (kết hợp với các thụ thể P2Y) có một vai trò quan trọng trong việc điều hòa bình thường.thậnhàm số, và cả trong một số mô hình bệnh tật. Cách có vẻ rõ ràng cho việc sử dụng các biện pháp can thiệp cuối cùng để sửa đổi các hành động này, do đó thay đổi sự bài tiết nước và chất điện giải, cũng như việc điều trị các bệnh cụ thểthậntình trạng bệnh lý.
SỰ NHÌN NHẬN
Chúng tôi dành tặng bản thảo này để tưởng nhớ người bạn và đồng nghiệp của chúng tôi, David Shirley.
Công việc trong phòng thí nghiệm của các tác giả được hỗ trợ bởi Wellcome Trust, Hội đồng Nghiên cứu Y khoa, Quỹ Tim mạch Anh, Quỹ St. Peter's Trust cho Nghiên cứu Thận, Bàng quang & Tuyến tiền liệt, vàQuả thậnNghiên cứu Vương quốc Anh.

Lợi ích của chiết xuất cistanche: cải thiện chức năng thận
NGƯỜI GIỚI THIỆU
1. Vallon V, Rieg T. Quy định củathậnNaCl và nước vận chuyển bởi hệ thống thụ thể ATP / UTP / P2Y2. Am J PhysiolThậnPhysiol 2011, 301: F464 – F475.
2. Vekaria RM, Unwin RJ, Shirley DG. Nồng độ ATP trong cơ thể chuộtthậnhình ống. J Am Soc Nephrol 2006, 17: 1841–1847.
3. Jensen MEJ, Odgaard E, Christensen MH, Praetorius HA, Leipziger J. Tăng do dòng chảy [Ca2 plus] Tôi tăng phụ thuộc vào sự giải phóng nucleotide và tín hiệu purinergic tiếp theo trong nephron nguyên vẹn. J Am Soc Nephrol 2007, 18: 2062–2070.
4. Odgaard E, Praetorius HA, Leipziger J. Sự tiết nucleotide do AVP kích thích ở chi tăng dần tủy dày của chuột được tưới máu và ống góp vỏ não. Am J PhysiolThậnPhysiol 2009, 297: F341 – F349.
5. Praetorius HA, Leipziger J. Giải phóng ATP từ các tế bào không thích nghi được. Tín hiệu Purinergic 2009, 5: 433–446.
6. Bell PD, Komlosi P, Zhang ZR. ATP như một chất trung gian của tín hiệu điểm vàng. Tín hiệu Purinergic 2009, 5: 461–471.
7. Thiếu hụt Sipos A, Vargas SL, Toma I, Hanner F, Willecke K, Peti-Peterdi J. Connexin 30thậnGiải phóng ATP ở ống thận và bài niệu natri áp lực. J Am Soc Nephrol 2009, 20: 1724–1732.
8. Shirley DG, Vekaria RM, Sevigny J. Ectonucleotidases ´in thequả thận. Tín hiệu Purinergic 2009, 5: 501–511.
9. Yegutkin GG. Các ectoenzyme chuyển đổi nucleotide và nucleoside: các chất điều biến quan trọng của dòng tín hiệu purinergic. Biochim Biophys Acta 2008, 1783: 673–694.
10. Burnstock G. Sinh lý học và sinh lý bệnh của dẫn truyền thần kinh purinergic. Physiol Rev 2007, 87: 659–797.
11. Inscho EW. Các thụ thể ATP, P2 vàthậnvi tuần hoàn. Tín hiệu Purinergic 2009, 5: 447–460.
12. Harhun MI, Povstyan OV, Gordienko DV. Dòng điện qua trung gian thụ thể Purinoreceptor trong tế bào cơ từthậnđộng mạch kháng. Br J Pharmacol 2010, 160: 987–997.
13. Turner CM, Vonend O, Chan C, Burnstock G, Unwin RJ. Mô hình phân bố của các loại phụ thụ thể P2 nhạy cảm với ATP đã chọn ở chuột bình thườngquả thận: một nghiên cứu miễn dịch học. Tế bào Mô các cơ quan 2003, 175: 105–117.
14. Yu MJ, Miller RL, Uawithya P, Rinschen MM, Khositseth S, Brauchth DW, Chouh CL, Pisitkunh T, Nelson RD, Knepper MA. Phân tích mức hệ thống về biểu hiện gen AQP2 cụ thể của tế bào trongthậnống góp. Proc Natl Acad Sci Hoa Kỳ 2009, 106: 2441–2446.
15. Wildman SSP, Marks J, Turner CM, Yew-Booth L, Peppiatt-Wildman CM, King BF, Shirley DG, Wang W, Unwin RJ. Quy định phụ thuộc natri củathậndòng nhạy cảm với amiloride bởi các thụ thể P2 ở đỉnh. J Am Soc Nephrol 2008, 19: 731–742.
16. Li L, Lynch IJ, Zheng W, Cash MN, Teng X, Wingo CS, Verlander JW, Xia SL. Apical PRXR góp phần vào tín hiệu [Ca2 plus] I và chuột ISCinthậnMCD. Biochem Biophys Res Commun 2007, 359: 438–444.
17. Charbardes-Garonne D, M `ejean A, Aude JC, Cheval ´ L, Di Stefano A, Gaillard MC, Imbert-Teboul M, Wittner M, Balian C, Anthouard V, et al. Một cái nhìn toàn cảnh về biểu hiện gen ở ngườiquả thận. Proc Natl Acad Sci Hoa Kỳ 2003, 100: 13710–13715.
18. Inscho EW, Cook AK, Clarke A, Zhang S, Guan Z. Sự co mạch qua trung gian thụ thể P2X1 của các tiểu động mạch hướng tâm ở chuột tăng huyết áp truyền angiotensin II được cho ăn chế độ ăn nhiều muối. Tăng huyết áp 2011, 57: 780–787.
19. Schnermann J. Đáp ứng phản hồi cầu thận duy trì trong quá trình ức chế cấp tính thụ thể P2 purinergic ở chuột. Am J PhysiolThậnPhysiol 2011, 300: F339 – F344.
20. Bailey MA, Shirley DG. Ảnh hưởng của nucleotide ngoại bào lênthậnvận chuyển chất tan dạng ống. Tín hiệu Purinergic 2009, 5: 473–480.
21. Jankowski M, Szamocka E, Kowalski R, Angielski S, Szczepanska-Konkel M.thậnsự bài tiết natri và nước ở chuột bị sốc thuốc. Acta Physiol 2011, 202: 193–201.
22. Garvin JL, Herrera M, Ortiz PA. Quy định củathậnSự vận chuyển NaCl bằng oxit nitric, endothelin và ATP: ý nghĩa lâm sàng. Annu Rev Physiol 2011, 73: 359–376.
23. Kishore BK, Nelson RD, Miller RL, Carlson NG, Kohan DE. Các thụ thể P2Y2 và vận chuyển nước trongquả thận. Tín hiệu Purinergic 2009, 5: 491–499.
24. Rieg T, Bunday RA, Chen Y, Deschenes G, Junger W, Insel PA, Vallon V. Chuột thiếu thụ thể P2Y2 bị tăng huyết áp kháng muối và tạo điều kiện thuận lợi cho quá trình cộng Na ở thận và tái hấp thu nước. FASEB J 2007, 21: 3717–3726.
25. Wildman SSP, Boone M, Peppiatt-Wildman CM, Contreras-Sanz A, King BF, Shirley DG, Deen PM, Unwin RJ. Nucleotide điều hòa aquaporin 2 thông qua việc kích hoạt các thụ thể P2 ở đỉnh. J Am Soc Nephrol 2009, 20: 1480–1490.
26. Pochynyuk O, Rieg T, Bugaj V, Schroth J, Fridman A, et al. Na cộng với chế độ ăn uống ức chế khả năng mở của kênh natri biểu mô trongquả thậnbằng cách tăng cường âm sắc của thụ thể P2Y 2- đỉnh. FASEB J 2010, 24: 2056–2065.
27. Turner CM, Elliot JI, Tam FWK. Thụ thể P2 trong sinh lý bệnh. Tín hiệu Purinergic 2009, 5: 513–520.
28. Arulkumaran N, Unwin RJ, Tam FWK. Một vai trò điều trị tiềm năng cho các chất đối kháng thụ thể P2X7 (P2X7R) trong điều trị các bệnh viêm nhiễm. Chuyên gia Opin Điều tra Thuốc 2011, 20: 897–915.