Ký sinh trùng, nhiễm trùng và tiêm chủng vào các tế bào tối thiểu tổng hợp
Oct 27, 2023
TRỪU TƯỢNG: Các tế bào tối thiểu tổng hợp cung cấp một mô hình có thể kiểm soát và thiết kế được cho các quá trình sinh học. Mặc dù đơn giản hơn nhiều so với bất kỳ tế bào sống tự nhiên nào, tế bào tổng hợp cung cấp nền tảng để nghiên cứu nền tảng hóa học của các quá trình sinh học quan trọng. Ở đây, chúng tôi trình bày một hệ thống tế bào tổng hợp với các tế bào chủ, tương tác với ký sinh trùng và trải qua quá trình lây nhiễm ở mức độ nghiêm trọng khác nhau. Chúng tôi chứng minh cách vật chủ có thể được thiết kế để chống lại sự lây nhiễm, chúng tôi điều tra chi phí trao đổi chất của việc mang tính kháng thuốc và chúng tôi cho thấy một phương pháp tiêm chủng giúp vật chủ miễn dịch với mầm bệnh. Công việc của chúng tôi mở rộng hộp công cụ kỹ thuật tế bào tổng hợp bằng cách chứng minh các tương tác và cơ chế của mầm bệnh giữa vật chủ và cơ chế để có được khả năng miễn dịch. Điều này đưa các hệ thống tế bào tổng hợp tiến một bước gần hơn đến việc cung cấp một mô hình toàn diện về đời sống tự nhiên, phức tạp.

lợi ích cistanche cho nam giới - tăng cường hệ thống miễn dịch
GIỚI THIỆU
Trong vài thập kỷ qua, lĩnh vực sinh học tổng hợp đã bùng nổ, cho phép tạo ra các tế bào tổng hợp giống và mô hình hóa các khía cạnh của đời sống sinh học tự nhiên. Mô hình hóa các con đường và hành vi của tế bào trong tế bào tổng hợp mang lại nhiều lợi thế so với tế bào sống như môi trường phản ứng đơn giản và xác định hơn, kiểm soát hoàn toàn cấu trúc protein và hóa học của tế bào, khả năng ngăn chặn các quá trình và quá trình sinh học can thiệp, cũng như duy trì các hệ thống sinh học quan trọng không có trong các hệ thống phản ứng in vitro.1,2 Những tài sản độc đáo này của công nghệ tế bào tổng hợp đã cho phép mô phỏng các điều kiện và con đường sinh học trong một lò phản ứng sinh học in vitro giống như sự sống (tế bào tổng hợp) và mang lại sự hiểu biết tốt hơn về nhiều lĩnh vực nghiên cứu, bao gồm sự tập trung phân tử, động lực học lipid-protein,4 trao đổi chất tối thiểu,5 và nhiều khía cạnh quan trọng khác của đời sống sinh học.2 Những tế bào tổng hợp giống như sự sống này với những đặc tính độc đáo của chúng đang nhanh chóng trở thành mô hình tốt hơn và làm sáng tỏ hơn vào hoạt động bí ẩn bên trong của đời sống tế bào.6,7 Những bước đột phá này không chỉ giới hạn ở các quá trình đơn bào; tương tác kỹ thuật giữa các quần thể liposome cũng đã chứng tỏ là một công nghệ mạnh mẽ. Ví dụ, thiết kế của một hệ thống tế bào tổng hợp mô phỏng mối quan hệ động vật ăn thịt-con mồi đã được phát triển bằng cách sử dụng ánh sáng làm tín hiệu giữa các quần thể tế bào tổng hợp này.8 Một công việc phức tạp khác đã được phát triển cho phép truyền tín hiệu qua ma trận giọt tế bào tổng hợp, cho phép huỳnh quang lan truyền theo không gian trong quần thể.9 Ngoài các tương tác tế bào tổng hợp-tế bào tổng hợp, gần đây cũng có những tiến bộ trong các giao diện tế bào sống-tế bào tổng hợp. Ví dụ, người ta đã chứng minh rằng một tế bào tổng hợp được thiết kế để giao tiếp với tế bào gốc thần kinh có thể tạo ra sự biệt hóa thần kinh cũng như hoạt động như một khung tổng quát có khả năng giao tiếp với các loại tế bào khác.10 Đã có vô số tiến bộ trong quá trình phát triển về việc truyền tín hiệu và các tế bào tổng hợp hoạt động như các giao diện, phần lớn được khám phá trong các phần đánh giá sau.11−13 Nói tóm lại, có toàn bộ lĩnh vực nghiên cứu liên quan đến việc bắt chước sự tương tác của các quần thể tế bào trong hệ thống mô hình của các tế bào tổng hợp. Mặc dù vậy, vẫn chưa có nghiên cứu nào sử dụng tế bào tổng hợp để mô hình hóa sự lây nhiễm, ký sinh hoặc tiêm chủng. Giống như các tế bào tổng hợp thường được sử dụng để mô hình hóa các quá trình sinh học phức tạp theo cách đơn giản và có kiểm soát, tiềm năng tồn tại là có thể mô hình hóa các tương tác giữa các sinh vật phức tạp này. Tầm quan trọng của điều này có thể được thấy trong nghiên cứu đột phá đã tạo ra thành công các hạt thể thực khuẩn hoạt động trong nền tảng biểu hiện protein không có tế bào.14 Chúng tôi mong muốn đưa khái niệm này lên tầm vĩ mô bằng cách thiết kế các quần thể tế bào tổng hợp có thể chủ động lây nhiễm lẫn nhau và chiếm quyền điều khiển. bộ gen của tế bào chủ, giống như virus sống và ký sinh trùng. Khả năng áp dụng và chế tạo các tế bào tổng hợp để mô hình hóa các hành vi bệnh tật này sẽ cung cấp một công cụ có giá trị cho cộng đồng khoa học.
Trong công việc này, chúng tôi trình bày hệ thống của chúng tôi để mô hình hóa bệnh tế bào tổng hợp. Chúng tôi đã thiết kế một tế bào chủ có thể bị lây nhiễm từ quần thể tế bào tổng hợp ký sinh thứ hai và nghiên cứu sự cạnh tranh tài nguyên, chiếm đoạt bộ gen và tái sử dụng trao đổi chất xảy ra trong quá trình lây nhiễm như vậy. Chúng tôi cũng mô hình hóa một phương pháp cho phép giải cứu vật chủ sau khi bị nhiễm trùng cũng như phương tiện tiêm chủng cho phép vật chủ chống lại sự lây nhiễm của các tế bào tổng hợp gây bệnh. Nói tóm lại, chúng tôi trình bày một khung mô hình lây nhiễm và bệnh mới cho các tế bào tổng hợp. Với công nghệ này, các tế bào tổng hợp có thể bắt đầu được sử dụng làm mô hình thô sơ cho bệnh tật, nhiễm trùng và tiêm chủng (Hình 1).

Hình 1. Hệ thống ký sinh, lây nhiễm và tiêm chủng trong các tế bào tối thiểu tổng hợp. (a) “Vật chủ” là tế bào tổng hợp biểu hiện protein huỳnh quang màu xanh lá cây (GFP). Trên bề mặt màng ngoài, vật chủ mang thẻ ssDNA. Các protein duy nhất được chuyển sang vật chủ khỏe mạnh là protein của chính vật chủ từ các plasmid mà vật chủ được tạo ra. (b) "Ký sinh trùng" là một liposome chứa đầy DNA plasmid mã hóa gen cho protein huỳnh quang mCherry và bề mặt của liposome ký sinh được trang trí bằng thẻ ssDNA (bổ sung cho thẻ trên bề mặt vật chủ). Quá trình "lây nhiễm" bắt đầu bằng sự hợp nhất giữa liposome của vật chủ và ký sinh trùng, qua trung gian là các thẻ DNA bổ sung trên bề mặt của chúng. Sau khi lây nhiễm, vật chủ biểu hiện cả gen chủ ban đầu (GFP) và gen ký sinh (mCherry). (c) Quá trình “lây nhiễm” bắt đầu bằng việc các liposome “mầm bệnh” mang gen mã hóa enzyme giới hạn MunI kết hợp với liposome của vật chủ. Gen mầm bệnh MunI được vật chủ biểu hiện và enzyme hạn chế MunI tiêu hóa DNA của vật chủ. Điều này dẫn đến hệ gen của vật chủ bản địa bị tiêu hóa, biến phần lớn biểu hiện protein của vật chủ từ GFP thành protein mã hóa của mầm bệnh, MunI. (d) "Lây nhiễm gây chết người" là sự kết hợp của liposome chủ (có bộ gen GFP) với liposome mầm bệnh chứa gen mã hóa aHL, một loại protein màng. Sau khi bị nhiễm trùng, vật chủ biểu hiện aHL, tạo ra các lỗ màng, gây rò rỉ chất dinh dưỡng của vật chủ và ngăn chặn hiệu quả quá trình trao đổi chất của vật chủ. (e) "Miễn dịch" là quá trình ủ vật chủ với ssDNA chứa trình tự tương thích với các thẻ dung hợp trên bề mặt liposome của vật chủ. DNA gây miễn dịch tạo ra sự song công với các thẻ DNA chủ, ngăn cản sự lai của các oligo DNA khác với các thẻ này. Điều này ngăn cản sự kết hợp của bất kỳ liposome gây bệnh nào với vật chủ. Đây là hình ảnh chứng minh khái niệm và các biểu đồ nhằm mục đích minh họa, thể hiện lượng protein tương đối được biểu hiện từ vật chủ và các mầm bệnh khác nhau. Dữ liệu thực tế cho mỗi hệ thống được cung cấp trong các hình tiếp theo.
KẾT QUẢ VÀ THẢO LUẬN
Trong công việc này, chúng tôi sử dụng các từ: vật chủ, ký sinh trùng, nhiễm trùng, gây chết người, vắc xin và tiêm chủng, tất cả đều trong bối cảnh các hệ thống tế bào tổng hợp, không sống. Khi nói đến sự lây nhiễm "chết người", chúng tôi muốn nói đến sự giảm dịch mã rõ rệt trong quần thể tế bào tổng hợp. Tất cả các thí nghiệm trong công việc này đều được thực hiện trên các tế bào tổng hợp không sống, không tự sao chép và không tiến hóa. Đây là một hệ thống mô hình về các đặc tính và quá trình sinh học tự nhiên.
lợi ích bổ sung cistanche-tăng khả năng miễn dịch
Nhấn vào đây để xem các sản phẩm Tăng cường miễn dịch Cistanche
【Hỏi thêm] Email:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Sự lây nhiễm của một tế bào tổng hợp bằng một tế bào tổng hợp ký sinh chiếm đoạt tài nguyên máy chủ.
Để kiểm tra khái niệm về hệ thống tế bào tổng hợp bắt chước sự lây nhiễm, chúng tôi bắt đầu bằng cách xây dựng một hệ thống mô hình cho ký sinh trùng. Chúng tôi đã sử dụng khái niệm đơn giản nhất về một loại ký sinh trùng có thể tái tạo lại trong hệ thống sinh hóa không sống này: một loại ký sinh trùng chiếm đoạt một số tài nguyên của vật chủ. Trong trường hợp này, quá trình trao đổi chất của vật chủ được thể hiện bằng biểu hiện của protein GFP và ký sinh trùng được thể hiện bằng biểu hiện của protein mCherry. Đối với hệ thống này, chúng tôi sử dụng hiện tượng đã được chứng minh trước đây về năng suất biểu hiện protein tuyến tính phụ thuộc vào nồng độ mẫu DNA trong TxTl.15,16. Đầu tiên, chúng tôi bắt đầu tìm ra nồng độ plasmid tổng số tối ưu mà tại đó tỷ lệ GFP và mCherry DNA tương ứng với tỷ lệ huỳnh quang quan sát được từ các protein này. Chúng tôi tùy tiện gán gen GFP là "vật chủ" và gen mCherry là "ký sinh trùng". Những cái tên này không có ý nghĩa gì đặc biệt trong thí nghiệm cụ thể này nhưng sẽ chỉ ra vật chủ và ký sinh trùng trong các thí nghiệm tế bào tổng hợp tiếp theo. Ở đây, chúng tôi sử dụng những tên này để giúp dễ dàng liên hệ các thí nghiệm chứng minh khái niệm này với các thí nghiệm lây nhiễm tế bào tổng hợp tiếp theo bằng cách sử dụng cùng các plasmid. Chúng tôi đã trộn lẫn các plasmid GFP và mCherry, với cả hai gen dưới sự kiểm soát của chất kích thích T7 ở các tỷ lệ plasmid khác nhau và tổng nồng độ plasmid trong các mẫu 1, 5, 10 hoặc 15 nM (Hình 2b). Các kết quả tuân theo mối quan hệ gần như tuyến tính được mong đợi giữa nồng độ plasmid và cường độ huỳnh quang được ghi lại, với sự phù hợp nhất giữa tỷ lệ nồng độ huỳnh quang và plasmid được quan sát thấy ở tổng số 10 nM plasmid. Mối quan hệ được quan sát chỉ ra rằng các plasmid, với các protein có kích thước và thành phần axit amin tương tự nhau (Hình S1), cạnh tranh để giành cùng một nguồn tài nguyên TxTl cho sự biểu hiện của chúng. Việc thay đổi nồng độ tương đối của hai plasmid dẫn đến những thay đổi về hiệu quả biểu hiện tỷ lệ thuận với tỷ lệ của các plasmid. Điều này chỉ ra rằng đây sẽ là một mô hình tốt để bắt chước nhiễm ký sinh trùng: bộ gen của ký sinh trùng (mCherry plasmid) sẽ cạnh tranh với bộ gen của vật chủ (plasmid GFP). Tiếp theo, chúng tôi quyết định thử nghiệm trường hợp trong đó một trong hai plasmid nằm dưới sự kiểm soát của chất kích thích mạnh hơn, do đó bắt chước kịch bản phân bổ tài nguyên sai lệch. Để duy trì khía cạnh cạnh tranh tài nguyên của các thí nghiệm lây nhiễm "ký sinh trùng" trong tương lai, chúng tôi giữ cả hai gen dưới cùng một chất kích thích RNA polymerase (T7 RNA polymerase, T7 RNAP) nhưng có độ mạnh khác nhau. Chúng tôi đã sử dụng trình khởi động T7 RNAP mạnh T7Max, cho thấy năng suất phiên mã cao hơn đáng kể, dẫn đến năng suất dịch mã tương ứng cao hơn, trong TxTl.17 Chúng tôi đã thử nghiệm thiết lập phản ứng giống hệt với thiết lập được mô tả trước đó: hai plasmid ở các tỷ lệ khác nhau, được thử nghiệm ở tổng số cuối cùng khác nhau nồng độ plasmit. Một trong các plasmid nằm dưới sự kiểm soát của chất kích thích T7Max mạnh, trong khi plasmid còn lại nằm dưới sự điều khiển của chất kích thích T7 chính tắc. Trong cả hai trường hợp thử nghiệm, sự biểu hiện plasmid T7Max đủ mạnh để độ huỳnh quang của protein từ gen thuộc T7Max không tăng đáng kể khi tăng tổng nồng độ của plasmid (Hình 2c, 2d). Dường như không có vấn đề gì nếu T7Max điều khiển GFP hay mCherry, cả hai protein đều phản ứng với chất kích thích mạnh hơn với mức tăng tương đối tương tự. Điều này cung cấp một mô hình đầy hứa hẹn cho việc lây nhiễm ký sinh trùng "mạnh hơn" (một ký sinh trùng mang gen T7Max vào vật chủ dưới T7) và ngược lại, vật chủ mạnh hơn chống lại ký sinh trùng yếu hơn (vật chủ có bộ gen dưới T7Max và ký sinh trùng mang gen T7). Được khuyến khích bởi những thí nghiệm chứng minh nguyên lý này, chúng tôi chuyển sang thí nghiệm tế bào tổng hợp.
Trong mọi trường hợp, "sự lây nhiễm" là sự hợp nhất giữa tế bào tổng hợp của vật chủ và ký sinh trùng. Quá trình tổng hợp được tạo điều kiện thuận lợi nhờ các thẻ DNA trên bề mặt của liposome, sử dụng hệ thống tổng hợp cảm ứng DNA được mô tả trước đây.18 Tóm lại, các tế bào tổng hợp được tạo ra bằng Escherichia coli TxTl bên trong màng POPC và cholesterol, và tờ rơi bên ngoài được trang trí với DNA sợi đơn được neo vào màng bằng cách biến đổi cholesterol. Nếu một cặp liposome có các thẻ bổ sung gặp nhau, các thẻ DNA sẽ lai, đưa các màng lại với nhau và bắt đầu phản ứng tổng hợp màng, sau đó là quá trình trộn lumen. Trong các thí nghiệm của chúng tôi, tế bào tổng hợp của vật chủ là liposome chứa TxTl với T7 RNAP bên cạnh bộ gen của GFP được mã hóa bằng plasmid. Việc theo dõi huỳnh quang GFP đóng vai trò đại diện cho “sức khỏe” của quá trình trao đổi chất của vật chủ. Ký sinh trùng đến chứa bộ gen ở dạng mCherry mã hóa plasmid, hệ thống dịch mã hoàn chỉnh, nhưng không có T7 RNA polymerase. Điều này đảm bảo rằng bất kỳ thay đổi quan sát được nào trong quá trình trao đổi chất của vật chủ là do gen do ký sinh trùng mang vào chứ không phải từ sự hợp nhất của ký sinh trùng và liposome của vật chủ, làm loãng tế bào chất của vật chủ. Các thí nghiệm lây nhiễm ký sinh trùng được thực hiện với màng vật chủ được dán nhãn Marina Blue DHPE, một loại thuốc nhuộm lipid màng xanh. Điều này cho phép chúng tôi bình thường hóa huỳnh quang gen của vật chủ và ký sinh trùng được quan sát thành huỳnh quang màu xanh lam, bình thường hóa kết quả thành tổng lượng huỳnh quang màng vật chủ có trong mẫu. Điều này giải thích cho sự pha loãng tổng thể tích của mẫu sau khi bổ sung các liposome ký sinh. Màng ký sinh trùng không được dán nhãn huỳnh quang. Tất cả các thí nghiệm đều được kèm theo một mẫu đối chứng, trong đó chỉ có một quần thể có mặt vật chủ, nhưng với mCherry plasmid, để hiển thị mức biểu hiện mCherry tối đa có thể về mặt lý thuyết nếu đó là gen duy nhất trong quần thể. Trong loạt thí nghiệm đầu tiên, chúng tôi đã trộn lẫn vật chủ và ký sinh trùng với các gen dưới sự kiểm soát của chất kích thích T7 thông thường.vì vậy cả gen của vật chủ và ký sinh trùng đều "mạnh" như nhau. Chúng tôi trộn vật chủ với ký sinh trùng để ký sinh trùng chiếm 25, 50 hoặc 75% tổng số liposome. Trong mọi trường hợp, huỳnh quang GFP của vật chủ giảm khi có sự hiện diện của ký sinh trùng, với sự gia tăng tương ứng của huỳnh quang mCherry ký sinh trùng (Hình 2e). Các mẫu chỉ có ký sinh trùng và không có vật chủ không tạo ra huỳnh quang màu nào như mong đợi. Trong mọi trường hợp, phản ứng tổng hợp liposome qua trung gian DNA không hiệu quả 100%;18,19 Do đó, mức giảm tương đối của huỳnh quang vật chủ và tăng huỳnh quang ký sinh trùng không lớn như giá trị lý thuyết dự kiến dựa trên tỷ lệ vật chủ so với ký sinh trùng. Nói cách khác, việc lây nhiễm không hiệu quả 100%. Trong trường hợp này, chất lượng tình cờ của hệ thống tổng hợp do DNA tạo ra là một đặc điểm có lợi của hệ thống. Giống như trường hợp nhiễm trùng tự nhiên, nhiễm trùng qua trung gian phản ứng tổng hợp tế bào không ảnh hưởng đến tất cả các vật chủ và không phải tất cả các ký sinh trùng đều tìm thấy vật chủ. Tiếp theo, chúng tôi đã điều tra hai trường hợp, trong đó vật chủ và ký sinh trùng không giống nhau về sức mạnh bộ gen của chúng. Trong một trường hợp, bộ gen chủ nằm dưới sự kiểm soát của trình khởi động T7 trong khi bộ gen ký sinh trùng nằm dưới trình khởi động T7Max (Hình 2f) và trong kịch bản ngược lại, bộ gen chủ nằm dưới trình khởi động T7Max và bộ gen ký sinh trùng nằm dưới trình khởi động T7 (Hình 2g). Trong trường hợp vật chủ yếu hơn bị ký sinh trùng mạnh hơn tấn công, sự gia tăng tương đối của huỳnh quang mCherry ký sinh và sự giảm huỳnh quang GFP tương ứng của vật chủ mạnh hơn nhiều so với trường hợp trước đó của vật chủ và ký sinh trùng giống nhau. Đúng như dự đoán, khi vật chủ mạnh hơn ký sinh trùng, thì điều ngược lại lại đúng: mức huỳnh quang mCherry thấp hơn và mức giảm huỳnh quang GFP tương đối thấp hơn so với trường hợp trùng khớp đồng đều. Điều này được minh họa rõ nhất bằng cách so sánh một điểm dữ liệu trong cùng điều kiện lây nhiễm: với tỷ lệ ký sinh trùng là 75%. Quần thể vật chủ và ký sinh trùng đồng đều dẫn đến huỳnh quang của ký sinh trùng lớn hơn vật chủ một chút. Khi ký sinh trùng mạnh hơn, huỳnh quang của ký sinh trùng cao hơn đáng kể so với vật chủ. Và khi vật chủ mạnh hơn thì huỳnh quang ký sinh sẽ thấp hơn vật chủ một chút. Những điểm dữ liệu được đánh dấu này được đánh dấu bằng ngôi sao màu vàng trong Hình 2e−g. Chúng tôi đã thực hiện thí nghiệm đối chứng trên vật chủ bị nhiễm ký sinh trùng "không có triệu chứng", ký sinh trùng mang plasmid có chất kích thích T7 nhưng không có trình tự mã hóa protein (chúng tôi đã loại bỏ băng mCherry khỏi plasmid) (Hình 2h). Độ huỳnh quang GFP của vật chủ giảm tối thiểu ở mức độ ký sinh trùng cao hơn, cho thấy rằng một lượng nhỏ tài nguyên vật chủ được dành cho việc phiên mã RNA không mã hóa ngắn từ plasmid ký sinh. Dữ liệu này cũng xác nhận rằng gánh nặng trao đổi chất chính của nhiễm ký sinh trùng trên vật chủ nằm ở việc sử dụng các nguồn dịch mã chứ không phải phiên mã. Quan sát này phù hợp với các quan sát trước đây về việc dịch mã là nguồn tài nguyên có tính thay đổi và hạn chế hơn trong các hệ thống không có tế bào.20 Nhìn chung, các thí nghiệm này cung cấp một mô hình về việc lây nhiễm một loại ký sinh trùng chiếm đoạt tài nguyên trao đổi chất của vật chủ, với các hành vi tổng hợp của tế bào bắt chước khía cạnh của mối quan hệ vật chủ-ký sinh trùng tự nhiên.

Hình 2. Nhiễm ký sinh trùng chiếm đoạt tài nguyên của vật chủ. (a) Liposome tế bào tổng hợp của vật chủ chứa hệ thống dịch mã không có tế bào và GFP mã hóa plasmid. Bề mặt của máy chủ được trang trí bằng thẻ ssDNA. Liposome ký sinh chứa mCherry mã hóa plasmid, có hệ thống dịch mã nhưng không có RNA polymerase (vì vậy ký sinh trùng không thể biểu hiện mCherry). Bề mặt của ký sinh trùng được trang trí bằng các thẻ ssDNA bổ sung cho các thẻ trên bề mặt vật chủ. Các thẻ DNA tạo điều kiện thuận lợi cho sự hợp nhất giữa liposome của vật chủ và ký sinh trùng và vật chủ biểu hiện cả GFP bộ gen của chính nó và bộ gen ký sinh có chứa mCherry. (b−d) Bằng chứng về nguyên tắc cho bộ gen của vật chủ (GFP) và ký sinh trùng (mCherry) cạnh tranh để giành cùng một nguồn tài nguyên tế bào tổng hợp. Những thí nghiệm này được thực hiện trong dung dịch TxTl, không phải trong liposome. Hai plasmid, mã hóa GFP và mCherry, được trộn lẫn theo tỷ lệ được biểu thị bằng biểu tượng plasmid ở bên trái bản đồ nhiệt, với tổng nồng độ DNA của mẫu được biểu thị ở hàng phía trên bản đồ nhiệt. Huỳnh quang được đo ở các kênh màu xanh lá cây (GFP) và màu đỏ (mCherry). Mỗi plasmid được thử nghiệm ở hai biến thể với các chất xúc tiến có độ mạnh khác nhau: với T7 và với chất xúc tiến T7Max mạnh hơn. Dữ liệu riêng lẻ cho tất cả các bản đồ nhiệt được cung cấp trong Hình S2−S4. Các khóa học theo thời gian riêng lẻ đại diện cho sự biểu hiện protein của vật chủ T7 và ký sinh trùng được cung cấp trong Hình S5−S7 và đối với ký sinh trùng T7Max trong Hình S8−S10. (e−g) Vật chủ bị nhiễm ký sinh trùng. Trong mỗi thí nghiệm, liposome của vật chủ được trộn lẫn với liposome ký sinh. Sự hợp nhất của ký sinh trùng với vật chủ mang lại DNA mCherry ký sinh, được biểu hiện cùng với DNA GFP của vật chủ. Các tỷ lệ khác nhau giữa vật chủ và ký sinh trùng đã được thử nghiệm, được biểu thị bằng các biểu tượng bên dưới biểu đồ thanh. Bộ gen của vật chủ dưới vùng khởi động T7 đã bị nhiễm một ký sinh trùng có bộ gen của nó nằm dưới bảng khởi động T7 (e) và với một ký sinh trùng có bộ gen của nó dưới bảng khởi động T7Max (f), vật chủ cũng được tạo ra với bộ gen T7Max và bị nhiễm với ký sinh trùng có bảng gen T7 (g). Các khóa học về thời gian đại diện cho từng cá nhân để biểu hiện protein được cung cấp trong Hình S11. Các thí nghiệm tương tự ở nồng độ lipid tổng cao hơn và thấp hơn được cung cấp trong Hình S12. Dấu vết tinh chế loại trừ kích thước cho thấy sự ổn định của mụn nước sau khi truyền tĩnh mạch được cung cấp trong Hình S13. (h) Nhiễm ký sinh trùng không tương thích: ký sinh trùng mang gen khởi đầu T7 nhưng DNA không mã hóa. Các thanh lỗi biểu thị SEM, n=3. Các giá trị huỳnh quang trong bảng (e-h) được chuẩn hóa thành huỳnh quang màu xanh lam của thuốc nhuộm màng để chuẩn hóa kết quả theo nồng độ của tế bào chủ. Tất cả các loạt mẫu được dán nhãn "vật chủ bị nhiễm GFP" đều là các thí nghiệm, trong đó vật chủ và ký sinh trùng có các thẻ DNA bổ sung trên bề mặt, cho phép hợp nhất các liposome, gọi là nhiễm trùng. Các mẫu hiển thị "vật chủ GFP khỏe mạnh" được dán nhãn hàng loạt, trong đó vật chủ và ký sinh trùng được trộn lẫn theo tỷ lệ được hiển thị, nhưng không chứa các thẻ hợp nhất bổ sung, khiến cho việc lây nhiễm là không thể. Hình thoi trong bảng (e−h) biểu thị một tình trạng lây nhiễm cụ thể minh họa rõ nhất sự khác biệt về cường độ biểu hiện của vật chủ và ký sinh trùng trong bảng (e−g) và lợi ích của khả năng miễn dịch của vật chủ trong bảng (h). So sánh trực tiếp giá trị vật chủ và vật ký sinh được biểu thị bằng ngôi sao được đưa ra trong Hình S14. Dữ liệu về việc nhiễm ký sinh trùng không có bất kỳ plasmid nào được thể hiện trong Hình S15.
Sự lây nhiễm của một tế bào tổng hợp có thể phá hủy bộ gen của vật chủ.
Ký sinh trùng được mô tả ở trên đang biểu hiện mCherry mã hóa bộ gen bằng cách sử dụng tài nguyên của vật chủ, nhưng vật chủ vẫn duy trì một số quá trình trao đổi chất và tiếp tục biểu hiện GFP mặc dù bị nhiễm trùng. Tiếp theo, chúng tôi quyết định điều tra một hệ thống trong đó sự lây nhiễm dẫn đến việc ký sinh trùng tiếp quản hoàn toàn quá trình trao đổi chất của vật chủ thông qua việc phá hủy bộ gen của vật chủ (Hình 3a). Để thiết kế một kịch bản như vậy, chúng tôi đã nghiên cứu một enzyme cắt giới hạn tiêu hóa plasmid trong TxTl. Trong các thí nghiệm chứng minh nguyên lý, enzyme hạn chế MunI được biểu hiện dưới dạng TxTl mà không có liposome. Plasmid MunI được trộn với plasmid GFP ở các tỷ lệ khác nhau. Nếu plasmid GFP không chứa vị trí hạn chế MunI, thì sự giảm tương đối nhỏ trong huỳnh quang GFP quan sát được có thể được giải thích bằng sự cạnh tranh được mô tả trước đây giữa hai plasmid đối với tài nguyên TxTl. Nếu plasmid GFP có vị trí hạn chế MunI, thì huỳnh quang GFP sẽ giảm đáng kể và mức giảm tỷ lệ thuận với lượng plasmid mã hóa MunI ngày càng tăng (Hình 3b). Biểu hiện MunI được theo dõi thông qua Western Blot và được chia tỷ lệ tương ứng với nồng độ plasmid (Hình 3c).

cistanche tubulosa-cải thiện hệ thống miễn dịch
Được khích lệ bởi những kết quả này, chúng tôi đã thiết lập một thí nghiệm lây nhiễm bằng các tế bào tổng hợp. Vật chủ mang plasmid GFP và mầm bệnh mang plasmid MunI. Nồng độ của plasmid GFP và MunI được đặt ở mức 2 mM, thấp hơn nhiều so với nồng độ bão hòa plasmid đối với TxTl.21 Chúng tôi dự định duy trì ở mức tổng nồng độ plasmid mà tại đó biểu hiện của vật chủ và ký sinh trùng sẽ đủ cao để cạnh tranh trực tiếp với các nguồn lực hạn chế ( giống như trong trường hợp được mô tả ở trên về một loài ký sinh đơn giản), thay vào đó chủ yếu có ý định đo lường tác động của enzyme ký sinh đang tích cực phá hủy bộ gen của vật chủ. Giống như trong các thí nghiệm ký sinh trùng được mô tả trước đó, vật chủ chứa TxTl và T7 RNA polymerase của vi khuẩn, mầm bệnh chỉ mang chiết xuất tế bào mà không có T7 RNA polymerase, và cả vật chủ và mầm bệnh đều được dán nhãn bằng thẻ tổng hợp DNA bổ sung. Màng tế bào chủ được dán nhãn Marina Blue DHPE để chuẩn hóa kết quả phát huỳnh quang theo nồng độ liposome của vật chủ. Vật chủ và mầm bệnh được trộn lẫn với nhau theo các tỷ lệ khác nhau, với mầm bệnh là 25, 50 hoặc 75% tổng quần thể. Độ phát huỳnh quang của vật chủ "bị nhiễm", trong đó vật chủ và mầm bệnh chứa các thẻ hợp nhất bổ sung, giảm khi số lượng mầm bệnh ngày càng tăng. Huỳnh quang GFP từ vật chủ "khỏe mạnh", trong đó mầm bệnh không chứa các thẻ hợp nhất bổ sung, không giảm khi có bất kỳ lượng mầm bệnh nào. Các mẫu chỉ có mầm bệnh dẫn đến không có huỳnh quang có thể đo được (Hình 3d). Biểu hiện protein MunI gây bệnh đã được định lượng bằng phân tích Western Blot, với dữ liệu được hiển thị cho chuỗi mẫu của vật chủ bị nhiễm bệnh (Hình 3e). Tiếp theo, chúng tôi đã điều tra sự lây nhiễm trong trường hợp vật chủ miễn dịch với mầm bệnh: plasmid GFP của vật chủ không có vị trí hạn chế MunI (Hình 3f). Sự phát huỳnh quang của vật chủ sau khi bị nhiễm giảm nhưng không đáng kể bằng trường hợp trước đó của vật chủ có vị trí MunI trong bộ gen. Protein mầm bệnh MunI được biểu hiện ở mức tương đương với các thí nghiệm lây nhiễm trước đó (Hình 3g), do đó tải lượng trao đổi chất trên vật chủ là tương tự nhau. Sự giảm huỳnh quang của vật chủ bị nhiễm bệnh trong các thí nghiệm này là do một số tài nguyên vật chủ bị mầm bệnh biểu hiện MunI chiếm đoạt, nhưng do tổng nồng độ plasmid thấp hơn nhiều so với các thí nghiệm mầm bệnh đơn giản trước đó nên mức giảm huỳnh quang của vật chủ ít đáng kể hơn. Thí nghiệm này cũng xác nhận rằng sự giảm huỳnh quang của vật chủ có vị trí MunI (Hình 3d) là do các khóa học về thời gian biểu hiện protein được cung cấp trong Hình S22. ( g ) Biểu hiện của MunI được theo dõi thông qua phân tích Western blot thông qua thử nghiệm đối với các mẫu được hiển thị trong chuỗi "bị nhiễm GFP" trong bảng (f). Các thanh lỗi trên tất cả các bảng biểu thị SEM, n=3. Các giá trị huỳnh quang trong bảng (d, f) được chuẩn hóa thành huỳnh quang màu xanh lam của thuốc nhuộm màng được sử dụng để chuẩn hóa kết quả theo nồng độ của tế bào chủ. Huỳnh quang trong bảng (b) được chuẩn hóa thành plasmid 0 mM MunI cho mỗi chuỗi mẫu. Các biểu tượng kim cương trong bảng (d, f) làm nổi bật một tình trạng cụ thể minh họa rõ nhất sự khác biệt trong phản ứng với sự lây nhiễm từ vật chủ nhạy cảm với bảng mầm bệnh (d) và miễn dịch với bảng mầm bệnh (f). Tất cả các loạt mẫu được dán nhãn "bị nhiễm GFP" đều là các thí nghiệm, trong đó vật chủ và mầm bệnh có các thẻ DNA bổ sung trên bề mặt, cho phép hợp nhất các liposome, gọi là nhiễm trùng. Chuỗi có nhãn "GFP khỏe mạnh" hiển thị các mẫu, trong đó vật chủ và mầm bệnh được trộn lẫn theo tỷ lệ được hiển thị nhưng không chứa các thẻ hợp nhất bổ sung, khiến cho việc lây nhiễm không thể xảy ra.

Hình 3. Sự lây nhiễm phá hủy bộ gen của vật chủ và chiếm đoạt tài nguyên của vật chủ. (a) Các tế bào chủ chứa GFP mã hóa plasmid, với hai vị trí hạn chế MunI; mầm bệnh chứa plasmid mã hóa enzyme giới hạn MunI. Sau khi hợp nhất giữa vật chủ và mầm bệnh, TxTl của vật chủ biểu hiện enzyme hạn chế MunI, sau đó tiêu hóa bộ gen của vật chủ. (b) Các thí nghiệm chứng minh nguyên tắc về sự lây nhiễm: plasmid GFP được điều chế có và không có các vị trí hạn chế MunI. Plasmid GFP được trộn với plasmid MunI và biểu hiện GFP đã được ghi lại. Những thí nghiệm này được thực hiện trong dung dịch TxTl không có liposome. Bằng chứng về nguyên tắc cho thí nghiệm lây nhiễm, với enzyme MunI được thêm vào bên ngoài thay vì được biểu hiện bằng TxTl, được thể hiện trong Hình S16 và S17. Các khóa học về thời gian biểu hiện protein đại diện được cung cấp trong Hình S18. (c) Biểu hiện MunI được theo dõi bằng phân tích Western blot; cường độ của dải MunI đã được định lượng trong cùng các mẫu với kết quả huỳnh quang được hiển thị trong bảng (b) cho chuỗi "Vắng mặt địa điểm MunI". Một blot phía tây đại diện của enzyme hạn chế MunI được cung cấp trong Hình S19. ( d ) huỳnh quang GFP của vật chủ trộn với liposome mầm bệnh theo tỷ lệ hiển thị dưới biểu đồ dữ liệu. Plasmid GFP của vật chủ có hai vị trí hạn chế MunI. Các khóa học về thời gian biểu hiện protein đại diện được cung cấp trong Hình S20. Dữ liệu về các thử nghiệm lây nhiễm bằng thẻ tổng hợp không tương thích được cung cấp trong Hình S21. (e) Biểu hiện của MunI được theo dõi thông qua phân tích Western blot thông qua thử nghiệm đối với các mẫu được hiển thị trong chuỗi "bị nhiễm GFP" trong bảng (d). ( f ) huỳnh quang GFP của vật chủ trộn với liposome mầm bệnh theo tỷ lệ hiển thị dưới biểu đồ dữ liệu. GFP chủ không có vị trí hạn chế MunI, giúp nó có khả năng miễn dịch với protein mầm bệnh. Các khóa học về thời gian biểu hiện protein đại diện được cung cấp trong Hình S22. ( g ) Biểu hiện của MunI được theo dõi thông qua phân tích Western blot thông qua thử nghiệm đối với các mẫu được hiển thị trong chuỗi "bị nhiễm GFP" trong bảng (f). Các thanh lỗi trên tất cả các bảng biểu thị SEM, n=3. Các giá trị huỳnh quang trong bảng (d, f) được chuẩn hóa thành huỳnh quang màu xanh lam của thuốc nhuộm màng được sử dụng để chuẩn hóa kết quả theo nồng độ của tế bào chủ. Huỳnh quang trong bảng (b) được chuẩn hóa thành plasmid 0 mM MunI cho mỗi chuỗi mẫu. Các biểu tượng kim cương trong bảng (d, f) làm nổi bật một tình trạng cụ thể minh họa rõ nhất sự khác biệt trong phản ứng với sự lây nhiễm từ vật chủ nhạy cảm với bảng mầm bệnh (d) và miễn dịch với bảng mầm bệnh (f). Tất cả các loạt mẫu được dán nhãn "bị nhiễm GFP" đều là các thí nghiệm, trong đó vật chủ và mầm bệnh có các thẻ DNA bổ sung trên bề mặt, cho phép hợp nhất các liposome, gọi là nhiễm trùng. Chuỗi có nhãn "GFP khỏe mạnh" hiển thị các mẫu, trong đó vật chủ và mầm bệnh được trộn lẫn theo tỷ lệ được hiển thị nhưng không chứa các thẻ hợp nhất bổ sung, khiến cho việc lây nhiễm không thể xảy ra.
Sự lây nhiễm của một tế bào tổng hợp có thể "Chết người", làm cạn kiệt tài nguyên tế bào chủ và những sự lây nhiễm như vậy có thể được "xử lý" để giải cứu chức năng.
Các thí nghiệm về ký sinh trùng và mầm bệnh ở trên đã chứng minh rằng các tế bào tổng hợp có thể được sử dụng làm mô hình lây nhiễm, trong đó mầm bệnh chiếm đoạt tài nguyên của vật chủ. Tiếp theo, chúng tôi quyết định nghiên cứu một tình huống trong đó sự lây nhiễm khiến quá trình trao đổi chất của vật chủ ngừng hoạt động sau khi protein gây bệnh biểu hiện. Trong trường hợp này, mầm bệnh có thể so sánh với việc nhiễm vi khuẩn biểu hiện độc tố chết người trừ đi khía cạnh sao chép của vật chủ hoặc ký sinh trùng vì các tế bào tổng hợp này không sao chép (Hình 4a). Để thiết kế hệ thống này, chúng tôi đã chọn hemolysin (aHL), một loại độc tố tự nhiên và protein màng được sử dụng rộng rãi trong kỹ thuật tế bào tổng hợp để tạo ra các lỗ trên màng không đặc hiệu.22,23 Chúng tôi đánh giá cao sự trớ trêu của lựa chọn này vì aHL được biểu hiện một cách tự nhiên bởi Staphylococcus Aureus như một độc tố, và protein sau đó được sử dụng để điều khiển sự vận chuyển qua màng và kéo dài quá trình chuyển hóa tế bào tổng hợp.24 Ở đây, chúng tôi quay lại sử dụng aHL vì vai trò tự nhiên của nó là một chất độc có hại do nhiễm trùng tạo ra. Một ví dụ đáng chú ý khác liên quan đến kỹ thuật tế bào tổng hợp về việc sử dụng độc tính của aHL để gây chết tế bào tự nhiên đến từ việc ứng dụng tế bào tổng hợp làm công nghệ trị liệu ung thư.25 Để chứng minh về nguyên tắc, chúng tôi đã chứng minh rằng biểu hiện nồng độ cao của aHL trong các túi tế bào tổng hợp dẫn đến rò rỉ nội dung tế bào và giảm đáng kể sự biểu hiện GFP bên trong tế bào. Hiệu ứng này có thể đảo ngược nếu bên ngoài liposome chứa tất cả các phân tử nhỏ cần thiết cho TxTl (Hình 4b). Trong hệ thống mô hình mầm bệnh vật chủ của chúng tôi, vật chủ chứa plasmid mã hóa GFP và mầm bệnh chứa plasmid mã hóa aHL. Tất cả thiết kế của các thí nghiệm lây nhiễm đều tương tự như các kịch bản ký sinh trùng và mầm bệnh được mô tả ở trên, với mầm bệnh không mang T7 RNAP và cả vật chủ và mầm bệnh đều được trang trí bằng thẻ tổng hợp DNA. Thật thú vị, chúng tôi quan sát thấy rằng ở nồng độ mầm bệnh thấp hơn (mầm bệnh chiếm 25 hoặc 50% tổng quần thể), huỳnh quang của vật chủ chỉ giảm nhẹ. Tuy nhiên, việc tăng nồng độ mầm bệnh lên 75% dẫn đến huỳnh quang GFP của vật chủ giảm đáng kể (Hình 4c). Chúng tôi suy đoán rằng kết quả này có thể là do sự rò rỉ chất dinh dưỡng tương đối chậm từ các tế bào tổng hợp ở nồng độ aHL thấp hơn. Độ huỳnh quang GFP chỉ được đo sau 12 giờ ủ và GFP là một loại protein rất ổn định. Do đó, có thể trong trường hợp nồng độ aHL thấp hơn (lượng mầm bệnh thấp hơn), sự rò rỉ chất dinh dưỡng do aHL gây ra đủ chậm để các tế bào chủ tích lũy một lượng GFP đáng kể trước khi ảnh hưởng của sự rò rỉ do aHL gây ra trở nên tê liệt. sự trao đổi chất. Để tách rời kết quả của sự cạnh tranh đơn giản về tài nguyên giữa bộ gen của vật chủ và ký sinh trùng, chúng tôi đã thực hiện các thí nghiệm "lây nhiễm với giải cứu" trong đó bộ đệm bên ngoài chứa tất cả các phân tử nhỏ tạo nên hỗn hợp năng lượng TxTl, axit amin và muối. Điều này được thiết lập tương tự như điều kiện “chất dinh dưỡng bên ngoài” được thử nghiệm trong Hình 4b. Sự giảm huỳnh quang của vật chủ trong các thí nghiệm này tương tự như các mẫu "lây nhiễm mà không được giải cứu" trước đó với mức độ mầm bệnh là 25 và 50%. Mức giảm huỳnh quang của vật chủ ở mức 75% mầm bệnh nhỏ hơn đáng kể so với mức giảm quan sát được trong các mẫu không được giải cứu (Hình 4d). Sự khác biệt lớn về kết quả của thí nghiệm với 75% ký sinh trùng, với các điểm dữ liệu trong bảng Hình 4 (c, d) được đánh dấu bằng một ngôi sao, dường như ủng hộ giả thuyết của chúng tôi rằng nồng độ aHL cao hơn sẽ gây hại sớm trong phản ứng. Ở nồng độ mầm bệnh thấp hơn, sự rò rỉ đủ chậm để GFP của vật chủ tích lũy (như được thấy cả khi có và không có chất dinh dưỡng giải cứu), do đó huỳnh quang GFP quan sát được giảm sau khi lây nhiễm chủ yếu là do cạnh tranh về nguồn lực. Ở nồng độ mầm bệnh cao hơn, huỳnh quang GFP trong các mẫu có chất dinh dưỡng bên ngoài giảm chủ yếu do cạnh tranh tài nguyên. Những thí nghiệm này chứng minh rằng chúng ta có thể thiết kế các tế bào tổng hợp để mô hình hóa sự lây nhiễm, dẫn đến hai kết quả khác nhau: hình phạt trao đổi chất của chính sự lây nhiễm (giảm GFP do cạnh tranh tài nguyên) và sự lây nhiễm "chết người" hơn do loại bỏ biểu hiện protein của vật chủ. Được khuyến khích bởi quan sát này, chúng tôi quyết định nghiên cứu một hệ thống trong đó các tế bào tổng hợp có thể chủ động chống lại sự nhiễm trùng gây bệnh và điều tra hình phạt trao đổi chất của phản ứng như vậy.

lợi ích cistanche cho nam giới - tăng cường hệ thống miễn dịch
Tế bào tổng hợp có thể chống lại sự lây nhiễm bằng chiến lược lấy cảm hứng từ vi khuẩn.
Lấy cảm hứng từ chức năng nổi tiếng của các enzyme giới hạn để bảo vệ vi khuẩn chống lại DNA ngoại lai, chúng tôi đã tìm cách sử dụng chiến lược này trong các tế bào tổng hợp. Chúng tôi đã mở rộng hệ thống ký sinh trùng được trình bày trong Hình 2: ngoài GFP, chúng tôi đã thêm plasmid chứa MunI vào vật chủ. Ký sinh trùng chứa mCherry, như trong các thí nghiệm trước đó. Plasmid mCherry chứa vị trí hạn chế MunI (Hình 5a). Đầu tiên, chúng tôi thực hiện các thí nghiệm chứng minh nguyên tắc để đánh giá tải trọng trao đổi chất của việc biểu hiện MunI trên vật chủ. Trong các thí nghiệm TxTl không được đóng gói này, chúng tôi đã theo dõi biểu hiện của GFP và biểu hiện của mCherry, mỗi loại được trộn với lượng plasmid MunI hoặc EcorI ngày càng tăng. Tất cả các gen đều nằm dưới sự kiểm soát của cùng một chất kích thích T7. Gen GFP có vị trí giới hạn EcorI nhưng không có vị trí giới hạn MunI và gen mCherry có vị trí giới hạn MunI nhưng không có vị trí giới hạn EcorI. Khi plasmid của enzyme giới hạn được trộn với một plasmid protein huỳnh quang mà không có vị trí nhận biết enzyme giới hạn đó, thì sự biểu hiện protein huỳnh quang giảm tỷ lệ thuận với sự gia tăng của plasmid của enzyme giới hạn, cho thấy sự cạnh tranh giữa hai plasmid về nguồn TxTl, như đã được trình bày trước đó đối với GFP và mCherry trong Hình 2. Các cặp không cắt này là GFP với MunI (Hình 5b) và mCherry với EcorI (Hình 5e). Khi một protein huỳnh quang được kết hợp với một enzyme giới hạn có khả năng cắt gen quy định protein huỳnh quang đó, thì huỳnh quang giảm đáng kể đến mức gần như mức nền ở nồng độ plasmid enzyme giới hạn cao hơn. Các cặp cắt này là GFP với EcorI (Hình 5c) và mCherry với MunI (Hình 5d). Điều này cho thấy sự giảm huỳnh quang đáng kể vượt xa sự cạnh tranh đơn giản về tài nguyên và tương tự như kịch bản lây nhiễm được thể hiện trong Hình 3. Biểu hiện MunI khi có mặt GFP làm giảm biểu hiện GFP. Nếu chúng ta sử dụng GFP làm đại diện cho quá trình trao đổi chất "cơ bản" của vật chủ thì MunI có thể được coi là tải lượng trao đổi chất trên vật chủ.

Hình 4. Vật chủ dễ bị nhiễm trùng “chết người”, nhưng vật chủ có thể được cứu sống. (a) Vật chủ chứa plasmid GFP và mầm bệnh chứa plasmid mã hóa kênh màng hemolysin (aHL). Sau khi lây nhiễm, vật chủ biểu hiện aHL, tạo ra các lỗ trên màng, gây rò rỉ chất dinh dưỡng và làm giảm hoạt động trao đổi chất của vật chủ. ( b ) Bằng chứng về nguyên tắc đối với aHL biểu hiện vật chủ (không bị nhiễm trùng, vật chủ được tạo ra với cả 5nM GFP và lượng plasmid aHL được chỉ định). Vật chủ được ủ trong môi trường đệm có hoặc không có chất dinh dưỡng (tất cả các thành phần của hỗn hợp năng lượng, muối và axit amin được sử dụng để chuẩn bị cho hệ thống dịch mã tự do tế bào chủ). Nồng độ chất dinh dưỡng giải cứu tối ưu đã được thiết lập bằng thực nghiệm, dữ liệu được hiển thị trong Hình S23. (c) Vật chủ bị nhiễm mầm bệnh, với số lượng mầm bệnh khác nhau trên mỗi tế bào vật chủ. Sự rò rỉ của các phân tử nhỏ từ các tế bào "khỏe mạnh" và "bị nhiễm" được đo trực tiếp bằng cách sử dụng thuốc nhuộm phân tử nhỏ, dữ liệu được hiển thị trong Hình S24 và S25. (d) Các thí nghiệm tương tự như vậy được trình bày trong bảng (c), nhưng bộ đệm bên ngoài chứa các chất dinh dưỡng phân tử nhỏ tương tự như các điều kiện thí nghiệm “chất dinh dưỡng bên ngoài” được trình bày trong bảng (b). Các thanh lỗi trên tất cả các bảng biểu thị SEM, n=3. Các giá trị huỳnh quang trong bảng (b-d) được chuẩn hóa thành huỳnh quang màu xanh lam của thuốc nhuộm màng được sử dụng để chuẩn hóa tín hiệu về nồng độ của tế bào chủ. Các biểu tượng kim cương trong bảng (c, d) làm nổi bật một tình trạng cụ thể minh họa rõ nhất sự khác biệt trong phản ứng với sự lây nhiễm từ vật chủ không có bảng dinh dưỡng bên ngoài (c) và khả năng miễn dịch với mầm bệnh do có sự hiện diện của bảng dinh dưỡng bên ngoài (d). Đối với các bảng (c, d), chuỗi "GFP bị nhiễm" là vật chủ được kết hợp với mầm bệnh mang protein aHL và "GFP khỏe mạnh" là vật chủ được kết hợp với mầm bệnh không mang plasmid.
Chúng tôi tiến hành các thí nghiệm lây nhiễm, trộn vật chủ (với plasmid GFP và MunI) với một ký sinh trùng (với plasmid mCherry). Như trước đây, chúng tôi đã nghiên cứu các kịch bản có số lượng ký sinh trùng trong quần thể ngày càng tăng (Hình 5f). Việc kiểm soát tích cực chỉ mCherry biểu hiện vật chủ (với EcorI thay vì MunI để cân bằng tải lượng trao đổi chất) đã tạo ra một chuẩn mực cho lượng protein mầm bệnh tối đa theo lý thuyết có thể được biểu hiện trong vật chủ (Hình 5f). Khi số lượng ký sinh trùng tăng lên, huỳnh quang GFP của vật chủ giảm đi, nhưng mức giảm huỳnh quang của vật chủ bị nhiễm bệnh nhỏ hơn đáng kể so với mức giảm biểu hiện GFP được quan sát thấy trong các thí nghiệm trước đó với cùng loại ký sinh trùng. GFP và ký sinh trùng mCherry huỳnh quang của MunI biểu hiện vật chủ bị nhiễm bệnh này (điểm dữ liệu được gắn nhãn ngôi sao trong Hình 5f) có thể được so sánh trực tiếp với các vật chủ lây nhiễm tương tự mà không có MunI (điểm dữ liệu được gắn nhãn ngôi sao trong Hình 2e). Ở vật chủ biểu hiện MunI, GFP của vật chủ bắt đầu với mức độ hoàn toàn thấp hơn khi khỏe mạnh (vì một số nguồn lực được chuyển sang biểu hiện MunI) nhưng sau khi bị lây nhiễm, sự giảm huỳnh quang của vật chủ ít đáng kể hơn và vật chủ tạo ra ít protein mCherry ký sinh hơn nhiều. hơn trong trường hợp vật chủ không biểu hiện MunI. Thí nghiệm này chứng minh lợi ích của việc vật chủ dành một số nguồn lực để bảo vệ chống lại ký sinh trùng. Hệ thống này có thể được coi là một mô hình sinh hóa rất đơn giản cho các sinh vật biểu hiện protein để bảo vệ chống lại các bệnh nhiễm trùng trong tương lai hoặc thậm chí là các yếu tố môi trường có hại. Vật chủ ban đầu kém mạnh mẽ hơn (nếu chúng ta lấy biểu hiện GFP làm tiêu chuẩn cho sức khỏe của vật chủ), nhưng trong trường hợp bị nhiễm trùng, nguồn lực bổ sung mà vật chủ dành cho việc biểu hiện các protein phòng thủ sẽ mang lại hiệu quả, cung cấp sự bảo vệ chống lại ký sinh trùng lây nhiễm. Do đó, trong tế bào tổng hợp không sống đơn giản này, chúng tôi đã tái tạo lại một ví dụ về cuộc chạy đua vũ trang sinh học cơ bản.
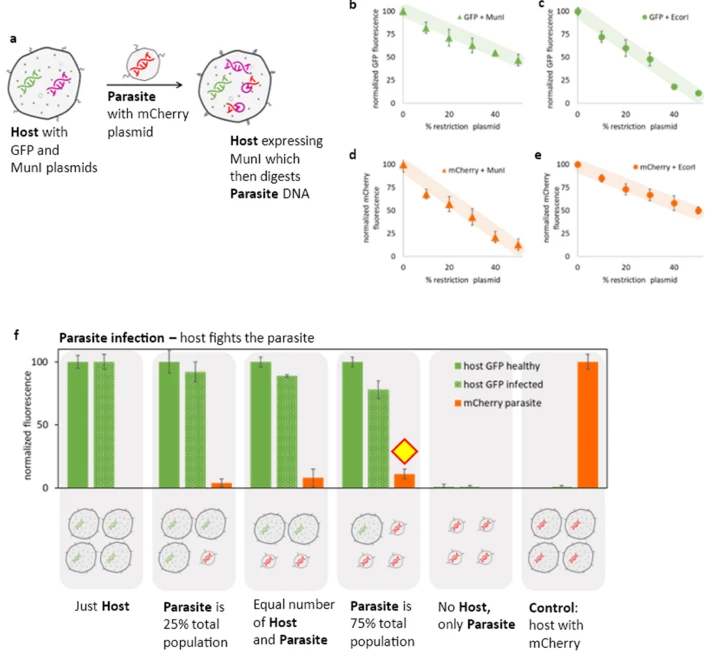
Hình 5. Tế bào chủ bảo vệ chống lại nhiễm trùng. (a) Tế bào chủ chứa hai plasmid: một plasmid mã hóa (không có vị trí hạn chế MunI) và một mã hóa enzyme hạn chế MunI (gen "kháng ký sinh trùng"). Ký sinh trùng chứa plasmid mCherry, trong một hệ thống tương tự như các thí nghiệm được hiển thị trong Hình 2. Sự lây nhiễm được thực hiện qua trung gian thông qua sự hợp nhất thông qua các thẻ DNA trên bề mặt vật chủ và ký sinh trùng. Sau khi lây nhiễm, plasmid mCherry do ký sinh trùng đưa vào sẽ được tiêu hóa bởi enzyme giới hạn MunI của vật chủ. (b−e) Đo lường chi phí trao đổi chất để thể hiện tính kháng ký sinh trùng. Các thí nghiệm nằm trong một hệ thống TxTl số lượng lớn, không được gói gọn trong các túi. Trong mỗi thí nghiệm, plasmid protein huỳnh quang (GFP hoặc mCherry) được trộn với plasmid enzyme giới hạn (MunI hoặc EcorI) theo tỷ lệ được chỉ định trên trục x để có tổng nồng độ plasmid là 10 mM. GFP có trang web hạn chế EcorI nhưng không có trang web MunI và mCherry có trang web hạn chế MunI nhưng không phải là trang web hạn chế EcorI. Đường xu hướng là một hướng dẫn trực quan nhưng không phù hợp với dữ liệu. Thanh lỗi biểu thị SEM, n=3. Các thí nghiệm đối chứng với các enzym giới hạn đã được tinh chế, thay vì biểu hiện chúng từ plasmid, được trình bày trong Hình S26. Độ ổn định của liposome với lượng plasmid ký sinh tăng lên cũng được đo lường, dữ liệu được hiển thị trong Hình S27. (f) Vật chủ bị nhiễm ký sinh trùng với số lượng ngày càng tăng. "GFP của vật chủ khỏe mạnh" là biểu hiện của GFP từ các tế bào của vật chủ được hợp nhất với ký sinh trùng mà không có bất kỳ plasmid nào. "Vật chủ bị nhiễm GFP" là vật chủ được hợp nhất với ký sinh trùng mang mCherry. Huỳnh quang màu đỏ là huỳnh quang mCherry từ ký sinh trùng hợp nhất với vật chủ (chỉ có dữ liệu từ vật chủ bị nhiễm bệnh. Các mẫu vật chủ khỏe mạnh không mang plasmid mCherry). Các thanh lỗi trên tất cả các bảng biểu thị SEM, n=3. Các giá trị huỳnh quang được chuẩn hóa thành huỳnh quang màu xanh lam của thuốc nhuộm màng được sử dụng để chuẩn hóa kết quả theo nồng độ của tế bào chủ. Biểu tượng kim cương biểu thị sự biểu hiện của protein ký sinh trong các điều kiện lây nhiễm cụ thể, có thể so sánh trực tiếp với điểm dữ liệu được đánh dấu bằng ngôi sao trong Hình 2e, một thí nghiệm trong cùng điều kiện, nhưng vật chủ thiếu gen kháng MunI.
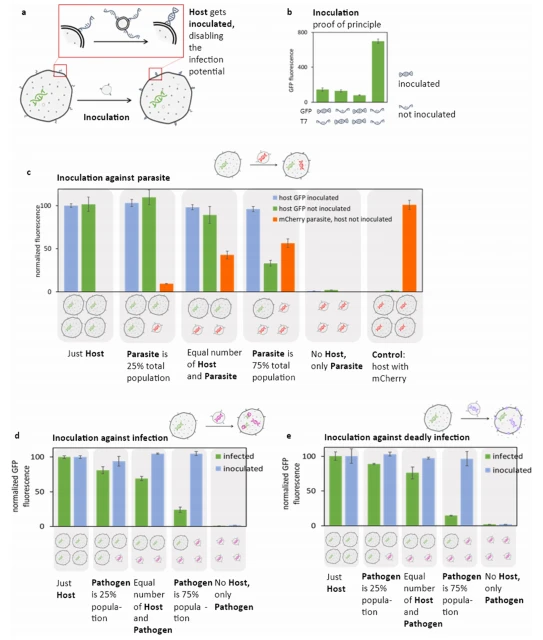
Hình 6. Tiêm chủng giúp bảo vệ chống lại nhiễm trùng. (a) Vật chủ chứa plasmid GFP. Mầm bệnh trong các thí nghiệm này là một trong ba sơ đồ lây nhiễm được trình bày trong bài báo này: một loại ký sinh trùng (như trong Hình 2), một mầm bệnh có enzyme hạn chế MunI tiêu hóa bộ gen GFP của vật chủ (như trong Hình 3), hoặc một mầm bệnh mang kênh màng aHL gây rò rỉ chất dinh dưỡng từ vật chủ (như hình 4). Trong mỗi trường hợp, vật chủ và mầm bệnh chứa các thẻ tổng hợp DNA bổ sung. Trước khi đưa mầm bệnh vào, vật chủ được "cấy": được ủ với lượng oligo ssDNA dư thừa bổ sung vào các thẻ DNA dung hợp trên bề mặt vật chủ (các thẻ giống hệt với các thẻ này trên mầm bệnh trừ đi phần cholesterol được sử dụng để neo thẻ vào màng của vật chủ). mầm bệnh). Việc tiêm chủng làm cho các thẻ dung hợp trên bề mặt vật chủ trở thành sợi kép, do đó không thể hòa hợp với mầm bệnh. (b) Bằng chứng về nguyên tắc của chương trình tiêm chủng. Quần thể liposome mang GFP dưới sự kiểm soát của chất kích thích T7 RNA, nhưng không có T7 RNA polymerase, được hợp nhất với các liposome chứa T7 RNA polymerase. Protein GFP chỉ có thể được biểu hiện nếu hai quần thể hợp nhất. Một hoặc cả hai đối tác trộn được "cấy" bằng cách ủ với thẻ DNA tương thích với thẻ dung hợp trên bề mặt của liposome, làm cho thẻ dung hợp trở thành chuỗi kép và do đó không tương thích với dung hợp. Lộ trình thời gian đại diện cho biểu hiện protein được hiển thị trong Hình S28. Các thử nghiệm điều khiển không có bất kỳ thẻ kết hợp nào được nêu trong Hình S29 và các điều khiển có thẻ kết hợp không tương thích được cung cấp trong Hình S30. Nồng độ oligo tiêm chủng được thiết lập bằng thực nghiệm, dữ liệu được hiển thị trong Hình S31. (c) Thí nghiệm lây nhiễm ký sinh trùng. Vật chủ mang GFP được hợp nhất với ký sinh trùng mang mCherry, như được mô tả trong Hình 2. Vật chủ và ký sinh trùng được trộn lẫn với một tỷ lệ khác nhau giữa vật chủ và ký sinh trùng; tế bào chủ hoặc được tiêm chủng (với thẻ dung hợp DNA sợi kép không tương thích với phản ứng tổng hợp) hoặc không được tiêm chủng (do đó dễ bị hợp nhất với ký sinh trùng). Sự phát huỳnh quang mCherry chỉ được báo cáo đối với các mẫu có vật chủ không được tiêm chủng vì không có huỳnh quang mCherry có thể đo lường được trong các mẫu vật chủ được tiêm chủng. Việc tiêm chủng đảo ngược đã được thử nghiệm bằng cách tiêm vào ký sinh trùng thay vì vật chủ, dữ liệu được hiển thị trong Hình S32. (d) Các thí nghiệm lây nhiễm với bộ gen của vật chủ nhạy cảm với mầm bệnh mang enzyme giới hạn MunI, như được mô tả trong Hình 3. Chuỗi dữ liệu bị nhiễm thể hiện vật chủ không được tiêm chủng và chuỗi dữ liệu được tiêm chủng thể hiện các mẫu có vật chủ được ủ bằng oligos tiêm chủng, do đó không dễ bị kết hợp với mầm bệnh. (e) Các thí nghiệm lây nhiễm với mầm bệnh mang gen aHL, dẫn đến các kênh aHL rò rỉ chất dinh dưỡng ra khỏi tế bào chủ sau khi lây nhiễm, như được mô tả trong Hình 4. Chuỗi dữ liệu bị nhiễm biểu thị vật chủ không được tiêm chủng và chuỗi dữ liệu được tiêm chủng biểu thị các mẫu có vật chủ được ủ với oligos tiêm chủng, do đó không dễ bị kết hợp với mầm bệnh. Các thanh lỗi trên tất cả các bảng biểu thị SEM, n=3. Các giá trị huỳnh quang trong bảng (c-e) được chuẩn hóa thành huỳnh quang màu xanh lam của thuốc nhuộm màng được sử dụng để chuẩn hóa kết quả theo nồng độ của tế bào chủ. Một số dữ liệu hiển thị trong hình này là các thử nghiệm có cách thiết lập giống hệt với các thử nghiệm hiển thị trong các hình trước đó (như được nêu trong mỗi chú thích). Các thí nghiệm này được lặp lại đối với hình này để tạo ra dữ liệu sử dụng cùng một lô TxTl để so sánh trực tiếp các kết quả, loại bỏ sự biến đổi theo từng đợt của các chế phẩm TxTl.
Cấy tế bào tổng hợp ngăn ngừa nhiễm trùng.
Trong ví dụ được mô tả ở trên, chúng tôi đã chứng minh khả năng bảo vệ của vật chủ chống lại ảnh hưởng của bộ gen của mầm bệnh bằng cách biểu hiện thêm một loại protein. Tiếp theo, chúng tôi hỏi liệu có thể mô hình hóa một tình huống trong đó một số biện pháp can thiệp giúp vật chủ nhạy cảm trước đó miễn dịch với nhiễm trùng ngay từ đầu hay không. Chúng tôi gọi nó là mô hình tiêm chủng. Mặc dù thừa nhận đây không phải là một sự tương tự hoàn hảo, nhưng khía cạnh chúng tôi tập trung vào là tế bào tổng hợp của vật chủ không tiêu tốn bất kỳ nguồn lực nào để tạo ra khả năng miễn dịch. Trong mô hình tiêm chủng của chúng tôi, chúng tôi đã thiết kế một phương pháp điều trị biến tế bào tổng hợp của vật chủ dễ bị nhiễm trùng thành các tế bào không thể kết hợp với mầm bệnh. Hệ thống tổng hợp tế bào tổng hợp được sử dụng trong suốt bài viết này dựa vào các thẻ DNA chuỗi đơn để tạo ra phản ứng tổng hợp màng liposome. Để tiêm chủng chống lại phản ứng tổng hợp bằng mầm bệnh, chúng tôi đã ủ các tế bào bằng DNA oligonucleotide bổ sung với oligo hợp nhất trên bề mặt tế bào (Hình 6a). Đầu tiên, chúng tôi cần xác nhận rằng việc tiêm chủng bằng cách ủ với oligo bổ sung có tác dụng loại bỏ phản ứng tổng hợp. Trong các thí nghiệm chứng minh nguyên lý, hai quần thể liposome đã được chuẩn bị: một quần thể có TxTl với GFP mã hóa plasmid dưới sự kiểm soát của chất kích thích T7 và quần thể còn lại có TxTl và T7 RNA polymerase nhưng không có plasmid. Sau khi hợp nhất hai quần thể này, plasmid GFP được trộn với T7 RNA polymerase và tạo ra biểu hiện GFP. Nếu hai quần thể có thẻ hợp nhất chuỗi đơn và bổ sung, thì phản ứng tổng hợp xảy ra và huỳnh quang GFP được phát hiện. Nếu một hoặc cả hai quần thể được ủ với chất bổ sung oligonucleotide cho thẻ dung hợp, thì phản ứng tổng hợp liposome đã không xảy ra và GFP không được biểu hiện (Hình 6b). Sau khi thiết lập hệ thống tiêm chủng, chúng tôi tiến hành tiêm chủng để bảo vệ các tế bào tổng hợp của vật chủ trong ba trong số các tình huống lây nhiễm được mô tả trước đó trong nghiên cứu này. Đầu tiên, chúng tôi sử dụng kịch bản ký sinh trùng được mô tả trong Hình 2. Các tế bào chủ, chứa bộ gen GFP, được tiêm một chất bổ sung oligo vào thẻ dung hợp trên bề mặt của vật chủ và vật chủ được trộn với ký sinh trùng mCherry. Chúng tôi trộn vật chủ với ký sinh trùng ở các tỷ lệ khác nhau. Trong mọi điều kiện lây nhiễm, huỳnh quang mCherry ký sinh trùng không thể phát hiện được nếu vật chủ được tiêm chủng và huỳnh quang GFP của vật chủ được tiêm chủng không giảm. Các thí nghiệm đối chứng với vật chủ không được tiêm chủng cho thấy sự giảm biểu hiện GFP của vật chủ và sự gia tăng tín hiệu mCherry ký sinh, như mong đợi (Hình 6c). Tiếp theo, chúng tôi áp dụng hệ thống tiêm chủng cho trường hợp vật chủ bị nhiễm mầm bệnh mang enzyme giới hạn MunI mã hóa bộ gen có khả năng tiêu hóa bộ gen GFP của vật chủ, như trong các thí nghiệm được hiển thị trong Hình 3. Vật chủ được tiêm chủng không cho thấy sự suy giảm trong huỳnh quang GFP sau khi trộn với lượng mầm bệnh ngày càng tăng, trong khi vật chủ không được tiêm chủng bị nhiễm bệnh và huỳnh quang GFP của vật chủ giảm tỷ lệ thuận với lượng mầm bệnh ngày càng tăng (Hình 6d). Việc tiêm chủng cũng có hiệu quả chống lại mầm bệnh aHL. Các vật chủ được tiêm chủng cho thấy không có sự giảm huỳnh quang khi trộn với mầm bệnh, trong khi huỳnh quang GFP của vật chủ không được tiêm chủng giảm đáng kể khi bị nhiễm trùng (Hình 6e). Trong mọi trường hợp, quy trình tiêm chủng đơn giản này, ủ vật chủ bằng DNA oligo bổ sung với oligo tổng hợp trên bề mặt vật chủ, là đủ để loại bỏ khả năng lây nhiễm vào tế bào vật chủ của các tế bào tổng hợp gây bệnh. Do đó, chúng tôi đã trình diễn một mô hình can thiệp hóa lý đơn giản để bảo vệ tế bào chủ khỏi bị nhiễm trùng.

lợi ích cistanche cho nam giới - tăng cường hệ thống miễn dịch
KẾT LUẬN
Trong bài báo này, chúng tôi trình bày các phương pháp sử dụng tế bào tối thiểu tổng hợp để mô hình hóa các bệnh nhiễm ký sinh trùng và mầm bệnh. Động lực đằng sau công việc của chúng tôi có gấp đôi. Chúng tôi muốn thiết kế các hành vi phức tạp, giống như sự sống vào các tế bào tổng hợp, tạo điều kiện thuận lợi cho mục tiêu chế tạo các tế bào tổng hợp gần giống với tế bào sống tự nhiên hơn. Chúng tôi cũng muốn tận dụng hệ thống tế bào tổng hợp đơn giản và có thể kiểm soát được để mô hình hóa các đặc tính cơ bản của quá trình lây nhiễm, tiêm chủng và kháng thuốc. Mặc dù các tế bào tổng hợp không tiến hóa hoặc tự sao chép, nhưng hệ thống này cho phép nghiên cứu động thái lây nhiễm theo mô hình đơn giản và dễ phân tích. Chúng tôi hy vọng các nguyên tắc lây nhiễm được mô tả ở đây sẽ giúp tạo ra các mô hình thực tế và có thể áp dụng cho các mầm bệnh khác nhau và giảm thiểu lây nhiễm. Việc nghiên cứu hệ thống tế bào tổng hợp đơn giản hóa này đã làm nổi bật những tương tác cơ bản giữa ký sinh trùng và mầm bệnh. Mặc dù các tế bào tổng hợp chưa (chưa) còn sống và chúng không có khả năng trải qua quá trình tiến hóa theo thuyết Darwin, nhưng hệ thống này cho phép chúng ta quan sát sự tương tác giữa mầm bệnh và vật chủ mà không có khả năng phát triển khả năng miễn dịch tự nhiên hoặc thay đổi độc lực của mầm bệnh. Mặc dù động lực lây nhiễm vật chủ được trình bày ở đây sử dụng các tế bào tổng hợp dựa trên vi khuẩn, hệ thống này vốn không bị giới hạn ở TxTl vi khuẩn. Thậm chí có thể tưởng tượng việc sử dụng hệ thống được trình bày ở đây để mô hình hóa động lực lây nhiễm trong các quần thể giống như hệ sinh thái tự nhiên, tận dụng tính đơn giản vốn có của các tế bào tổng hợp để kiểm soát và nghiên cứu hoàn toàn sự tương tác giữa các thành viên khác nhau của các quần thể lớn.
NGƯỜI GIỚI THIỆU
(1) Ứng dụng. Mẹ ơi. Hôm nay 2016, 19, 516−532.
(2) Gaut, NJ; Adamala, KP Tái tạo các yếu tố tế bào tự nhiên trong tế bào tổng hợp. Khuyến cáo. Biol. 2021, 5, số 2000188.
(3) Tân, C.; Saurabh, S.; Bruchez, nghị sĩ; Schwartz, R.; Leduc, P. Sự đông đúc phân tử định hình biểu hiện gen trong các hệ thống nano tế bào tổng hợp. Nat. Công nghệ nano. 2013, 8, 602−608.
(4) Glantz, ST; Berlew, EE; Chow, BY Giao diện màng giống tế bào tổng hợp để thăm dò các tương tác động giữa protein và lipid, tái bản lần thứ nhất; Công ty Elsevier, 2019; Tập. 622.
(5) Triệu, J.; Trương, Y.; Trương, X.; Lý, C.; Tât nhiên.; Sønderskov, SM; Mu, W.; Đồng, M.; Han, X. Bắt chước quá trình trao đổi chất của tế bào trong tế bào nhân tạo: Vận chuyển phân tử phổ quát qua màng thông qua phản ứng tổng hợp mụn nước. Hậu môn. Chem. 2022, 94, 3811−3818.
(6) Damiano, L.; Stano, P. Về "Tính sống động" của tế bào tổng hợp. Đằng trước. Bioeng. Công nghệ sinh học. 2020, 8, số 953.
(7) Salehi-Reyhani, A.; Ces, O.; Elani, Y. Mô phỏng tế bào nhân tạo làm mô hình đơn giản hóa cho nghiên cứu sinh học tế bào. Exp. Biol. Med. 2017, 242, 1309−1317.
(8) Chakraborty, T.; Wegner, SV truyền tín hiệu từ tế bào đến tế bào thông qua ánh sáng trong cộng đồng tế bào nhân tạo: Động vật ăn thịt phát sáng thu hút con mồi. ACS Nano 2021, 15, 9434−9444.
(9) Dupin, A.; Simmel, FC Tín hiệu và sự khác biệt trong mạch đa ngăn dựa trên nhũ tương trong mạch gen Vitro. Nat. Chem. 2019, 11, 32−39.
(10) Toparlak, OD; Zasso, J.; Bridi, S.; Serra, MD; Macchi, P.; Conti, L.; Baudet, M.-L.; Tế bào nhân tạo Mansy, SS thúc đẩy sự biệt hóa thần kinh. Khoa học. Khuyến cáo. 2020, 6, số eabb4920.
(11) Robinson, AO; Venero, OM; Adamala, KP Hướng tới cuộc sống tổng hợp: Truyền thông tế bào tổng hợp mô phỏng sinh học. Curr. Ý kiến. Chem. Biol. 2021, 64, 165−173.
(12) Smith, JM; Chowdhry, R.; Booth, MJ Kiểm soát Truyền thông Tế bào-Tế bào Tổng hợp. Đằng trước. Mol. Sinh học. 2022, 8, số 1321.
(13) Elani, Y. Kết nối các tế bào sống và tế bào tổng hợp như một biên giới mới nổi trong sinh học tổng hợp. Angew. Chem., Int. Ed. 2021, 60, 5602− 5611.
(14) Rustad, M.; Eastlund, A.; Jardine, P.; Noireaux, V. Tổng hợp TXTL không có tế bào của vi khuẩn truyền nhiễm T4 trong một phản ứng trong ống nghiệm. Tổng hợp. Biol. 2018, 3, số ysy002.
(15) Marshall, R.; Noireaux, V. Mô hình hóa định lượng phiên mã và dịch thuật của All-E. coli Hệ thống không có tế bào. Khoa học. Dân biểu 2019, 9, Số 11980.
(16) Garamella, J.; Marshall, R.; Rustad, M.; Noireaux, V. Hộp công cụ Tất cả E. coli TX-TL 2.0: Nền tảng cho Sinh học tổng hợp không có tế bào. Tổng hợp ACS. Biol. 2016, 5, 344−355.
(17) Deich, C.; Tiền mặt, B.; Sato, W.; Sharon, J.; Aufdembrink, L.; Gaut, NJ; Heili, J.; Stokes, K.; Engelhart, AE; Adamala, Hệ thống phiên mã KP T7Max. 2021, 1−28.
(18) Gaut, NJ; Gomez-Garcia, J.; Heili, JM; Tiền mặt, B.; Hàn, Q.; Engelhart, AE; Adamala, Sự kết hợp có thể lập trình của KP và Sự khác biệt của các tế bào tối thiểu tổng hợp. Tổng hợp ACS. Biol. 2022, 11, 855− 866.
(19) Stengel, G.; Zahn, R.; Höök, F. Sự kết hợp có thể lập trình được bằng DNA của các túi Phospholipid. Mứt. Chem. Sóc. 2007, 129, 9584− 9585.
(20) Chizzolini, F.; Forlin, M.; Yeh Martín, N.; Berloffa, G.; Cecchi, D.; Mansy, Bản dịch không có tế bào SS có nhiều biến đổi hơn so với phiên mã. Tổng hợp ACS. Biol. 2017, 6, 638−647.
(21) Shin, J.; Noireaux, V. Hộp công cụ biểu hiện không có tế bào E. coli: Ứng dụng cho các mạch gen tổng hợp và tế bào nhân tạo. Tổng hợp ACS. Biol. 2012, 1, 29−41.
(22) Noireaux, V.; Libchaber, A. Lò phản ứng sinh học mụn nước là một bước hướng tới việc lắp ráp tế bào nhân tạo. Proc. Natl. Học viện. Khoa học. Hoa Kỳ 2004, 101, 17669−17674.
(23) Adamala, KP; Martin-Alarcon, DA; Guthrie-Honea, KR; Boyden, ES Engineering Tương tác mạch di truyền bên trong và giữa các tế bào tối thiểu tổng hợp. Nat. Chem. 2017, 9, 431−439.
(24) Noireaux, V.; Bar-Ziv, R.; Godefroy, J.; Salman, H.; Libchaber, A. Hướng tới một tế bào nhân tạo dựa trên biểu hiện gen trong mụn nước. Vật lý. Biol. 2005, 2, P1−P8.
(25) Krinsky, N.; Kaduri, M.; Zinger, A.; Shainsky-Roitman, J.; Goldfeder, M.; Benhar, tôi.; Hershkovitz, D.; Schroeder, A. Tế bào tổng hợp tổng hợp protein trị liệu bên trong khối u. Khuyến cáo. Y tế Mater. 2018, 7, số 1701163.
(26) Kwon, YC; Jewett, MC Phương pháp chuẩn bị chiết xuất thô thông lượng cao để tổng hợp protein không có tế bào mạnh mẽ. Khoa học. Dân biểu 2015, 5, Số 8663.
(27) Mặt Trời, ZZ; Hayes, CA; Shin, J.; Caschera, F.; Murray, RM; Noireaux, V. Các quy trình triển khai hệ thống biểu hiện không có tế bào TXTL dựa trên Escherichia Coli cho sinh học tổng hợp. J.Vis. Exp. 2013, 79, 1−15.
(28) Fujii, S.; Matsuura, T.; Sunami, T.; Nishikawa, T.; Kazuta, Y.; Yomo, T. Hiển thị Liposome để lựa chọn trong ống nghiệm và sự phát triển của protein màng. Nat. Giao thức. 2014, 9, 1578−1591.
(29) Löffler, PMG; Ries, O.; Rabe, A.; Okholm, AH; Thomsen, RP; Kjems, J.; Vogel, S. Một dòng thác kết hợp Liposome được lập trình bằng DNA. Angew. Chem., Int. Ed. 2017, 56, 13228−13231.