Vai trò của MicroRNA trong bệnh thận liên quan đến béo phì
Mar 09, 2023
Trừu tượng:
Béo phì là một vấn đề sức khỏe toàn cầu lớn và có liên quan đến nguy cơ suy giảm chức năng thận đáng kể. Bệnh thận liên quan đến béo phì, là một trong những biến chứng của béo phì, được đặc trưng bởi tổn thương cấu trúc và chức năng của thận và là một trong những nguyên nhân quan trọng gây ra bệnh tật và tử vong trên toàn thế giới. Mặc dù ngày càng có nhiều dữ liệu liên quan đến tăng lipid máu và nhiễm độc mỡ với tổn thương thận, nhưng sự hiểu biết về các cơ chế phân tử dẫn đến sự phát triển của tổn thương thận là khan hiếm. MicroRNA (miRNA) là các phân tử RNA nhỏ không mã hóa được sản xuất nội sinh với chức năng quan trọng trong việc điều hòa biểu hiện gen sau phiên mã. miRNA đã được chứng minh là bộ điều chỉnh quan trọng của một loạt các quá trình sinh lý và bệnh lý ở nhiều cơ quan, thận là một trong số đó. Trong tổng quan này, chúng tôi trình bày tổng quan về miRNA, tập trung vào vai trò chức năng của chúng trong cơ chế bệnh sinh của bệnh lý thận liên quan đến béo phì. Chúng tôi giải thích những phát hiện mới liên quan đến tín hiệu qua trung gian miRNA trong các bệnh thận liên quan đến béo phì và nêu bật những ưu điểm và triển vọng trong tương lai của ứng dụng điều trị của miRNA trong các bệnh về thận.
Ngắt:
Thận là nền tảng bẩm sinh, là gốc của sức khỏe, là động lực của sự sống. Theo y học cổ truyền, ngũ vị tương ứng với ngũ tạng. Đắng vào tâm, ngọt vào tỳ, chua vào gan, hăng vào phổi, mặn vào thận.", mặn tương ứng với thận. Thức ăn mặn và thuốc có tác dụng gây nôn, nhuận tràng và bổ dưỡng. Ví dụ như cây cỏ ba lá, thuốc và thức ăn cùng nguồn gốc, vị ngọt hơi mặn, eo đầu gối đau yếu, tay chân lạnh, khô ruột táo bón v.v. có thể cải thiện chức năng thận và bảo vệ thận, chẳng hạn như bổ thận dương.
Nhấp vào sản phẩm ham muốn tình dục cistanche
từ khóa:
microRNA; béo phì; quả thận; tăng lipid máu; nhiễm độc mỡ; bệnh thận liên quan đến béo phì; viêm nhiễm; tác nhân trị liệu; bảo vệ lại
1. Giới thiệu
Béo phì là một dịch bệnh toàn cầu đang bùng phát và là một yếu tố nguy cơ quan trọng đối với sự phát triển và tiến triển của bệnh thận mãn tính (CKD). Thật vậy, tỷ lệ mắc bệnh thận liên quan đến béo phì, là một trong những biến chứng của bệnh béo phì, đã tăng gấp 10-trong vài năm qua [1]. Tăng lắng đọng chất béo có thể dẫn đến viêm hệ thống và mãn tính, thay đổi hệ thống renin–angiotensin–aldosterone (RAAS), tạo ra các loại oxy phản ứng (ROS), cũng như thay đổi huyết động và hình thái ở thận [2–5]. Tất cả các quá trình phụ thuộc lẫn nhau này sau đó có thể dẫn đến suy giảm chức năng thận và tiến triển thành bệnh thận giai đoạn cuối (ESRD). Bất kể có nhiều báo cáo liên quan đến sự tích tụ chất béo và nhiễm độc mỡ với tổn thương thận, các con đường cơ bản chịu trách nhiệm cho sự phát triển của suy thận liên quan đến béo phì vẫn chưa được hiểu đầy đủ.
miRNA là các phân tử RNA sợi đơn ngắn, không mã hóa, có vai trò quan trọng trong việc điều hòa biểu hiện gen. miRNA đã được báo cáo là có liên quan đến các quá trình sinh học cơ bản, do đó đóng vai trò thiết yếu trong sự phát triển cơ quan bình thường và cân bằng nội môi [6,7]. Hơn nữa, miRNA đã được xác định là nhân tố quan trọng trong nhiều tình trạng sinh lý bệnh như ung thư, bệnh tự miễn và rối loạn tim mạch và thận [8–10]. Do các đặc điểm độc đáo của chúng như trình tự nucleotide được bảo tồn cao có độ dài nhỏ và thành phần đã biết, miRNA đại diện cho cơ sở tiềm năng để phát triển các liệu pháp mới cho các bệnh liên quan đến miRNA.
Tổng quan hiện tại khám phá kiến thức hiện đại về vai trò của miRNA trong cơ chế bệnh sinh của bệnh thận liên quan đến béo phì, cũng như tín hiệu truyền tin liên quan đến phản ứng qua trung gian miRNA ở thận. Chúng tôi tóm tắt những phát hiện hiện tại về việc sử dụng miRNA làm mục tiêu can thiệp điều trị tiềm năng, nêu bật các lợi ích và triển vọng trong tương lai của việc sử dụng điều trị các phân tử RNA nhỏ không mã hóa này trong các bệnh thận.
2. miRNA: Quá trình sinh học và Cơ chế hoạt động
MicroRNA (miRNA) là các phân tử RNA sợi đơn, không mã hóa, nội sinh nhỏ với chiều dài trung bình là 22 nucleotide và trình tự được bảo tồn cao giữa các loài [11]. miRNA đã được báo cáo là có vai trò quan trọng trong việc điều chỉnh biểu hiện gen thông qua quá trình xử lý sau phiên mã của RNA thông tin (mRNA) [12]. Tuy nhiên, sự tham gia của chúng trong việc kích hoạt hoặc làm im lặng gen phiên mã cũng đã được mô tả [13]. Khoảng 2700 miRNA trưởng thành đã được xác định ở người [14] và bằng chứng tích lũy được chỉ ra rằng hầu hết các gen của con người có thể được điều chỉnh bởi miRNA [15]. Một miRNA duy nhất có thể điều chỉnh ~200 mRNA tham gia vào các con đường khác nhau của tế bào, đồng thời, một bản phiên mã mRNA có thể được điều chỉnh đồng thời bởi các miRNA khác nhau [15,16].
2.1. Sinh học của miRNA
Quá trình sinh học của miRNA chịu sự kiểm soát nghiêm ngặt về không gian và sự rối loạn điều hòa của bất kỳ bước nào trong quá trình tổng hợp chúng có liên quan đến nhiều bệnh ở người. Quá trình sinh học chủ yếu tuân theo con đường chính tắc với hai enzyme RNase—Drosha và Dicer đóng vai trò quan trọng. Tuy nhiên, sự tồn tại của các con đường thay thế, không chính tắc, độc lập với Drosha hoặc Dicer cũng đã được mô tả [13]. Bằng chứng cho thấy rằng ~1 phần trăm miRNA được bảo tồn được tạo ra thông qua các con đường thay thế này [17] và một số miRNA không chính tắc được báo cáo là có liên quan đến các bệnh khác nhau ở người [13]. Trong phần đánh giá này, chúng tôi sẽ tập trung sự chú ý vào con đường sinh học miRNA chính tắc.
Sự hình thành miRNA bắt đầu bằng quá trình phiên mã DNA bộ gen trong nhân (Hình 1). Quá trình này được xúc tác bởi RNA polymerase II (RNA Pol II) chịu trách nhiệm hình thành bản phiên mã miRNA chính (pri-miRNA) với một vòng lặp cuối cùng. Trong bước tiếp theo, tiền-miRNA được nhận dạng và phân cắt bởi một phức hợp vi xử lý, được hình thành bởi RNase III Drosha và DGCR8 (vùng quan trọng của hội chứng DiGeorge 8) để cuối cùng tạo ra một kẹp tóc ngắn hơn, được gọi là tiền chất miRNA (tiền miRNA) [18 ]. Pre-miRNA được xuất khẩu vào tế bào chất bằng phức hợp exportin-5 RanGTP để hoàn thành quá trình trưởng thành của nó. Trong tế bào chất, tiền miRNA được nhận diện bởi phức hợp Dicer-TRBP, được hình thành từ enzyme Dicer RNAase III và protein gắn RNA phản ứng chuyển hóa, TRBP [17].
Phức hợp này tách vòng đầu cuối của tiền miRNA tạo ra một song công miRNA nhỏ khoảng 22 nt [18,19], với một sợi bắt nguồn từ 50 (5p) và sợi kia từ nhánh 30 (3p) của thân kẹp tóc. . miRNA song công sau đó tải lên Argonaute protein 2 (AGO) để tạo thành phức hợp tiền RISC (RNA-gây ra sự im lặng) [17]. Trong phức hợp trước RISC, song công miRNA sẽ bung ra và chỉ một chuỗi sẽ hoạt động như một chuỗi "dẫn hướng" dẫn phức hợp RISC trưởng thành đến một chuỗi bổ sung gần đó, chủ yếu ở 30 -vùng chưa được dịch mã (30UTR) của mRNA mục tiêu, sẽ có ảnh hưởng trực tiếp đến quá trình dịch mã protein [17]. Chuỗi "hành khách" còn lại của song công miRNA sẽ tạo ra các miRNA không hoạt động và ít phong phú hơn, và sau đó sẽ bị loại bỏ [17]. Người ta tin rằng cả hai nhánh đều có thể tạo ra các miRNA trưởng thành, nhưng nhánh nào sẽ được chọn tùy thuộc vào các điều kiện khác nhau. Lựa chọn này được đặt tên là "chuyển đổi cánh tay" [20].
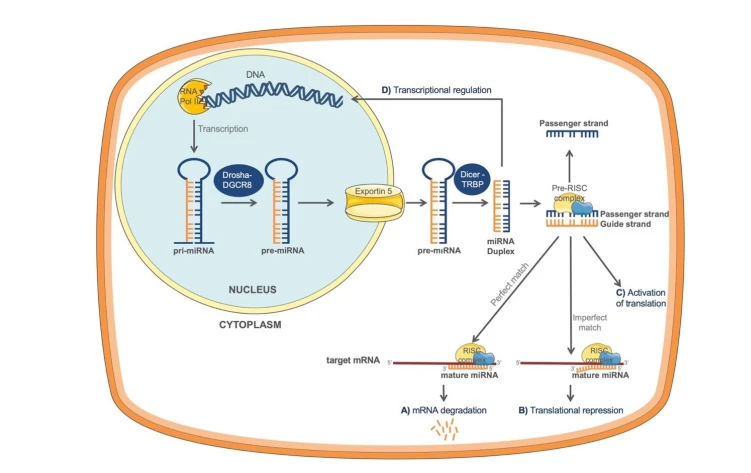
Hình 1. Cơ chế điều hòa sinh học và gen sau phiên mã của miRNA. Trong nhân, DNA bộ gen được RNA polymerase II phiên mã để tạo thành một miRNA sơ khai. pr-miRNA được nhận biết và phân cắt bởi phức hợp bao gồm RNase III Drosha và DGCR8 để tạo ra pre-miRNA. Pre-miRNA được xuất vào tế bào chất bằng exportin-5 RanGTP và được Dicer-TRBP cắt tiếp để tạo ra miRNA song công. Song công này được tải vào phức hợp tiền RISC, do đó chỉ có một sợi ("dây dẫn hướng") sẽ ở lại để tạo thành phức hợp RISC. Chuỗi dẫn hướng sẽ dẫn phức hợp RISC trưởng thành đến trình tự bổ sung 30 UTR gần đó của mRNA mục tiêu. Nếu miRNA và mRNA mục tiêu của nó thiết lập kết hợp hoàn hảo, sự suy giảm mRNA trực tiếp sẽ xảy ra (A).
Ngoài ra, sự kết hợp không hoàn hảo giữa miRNA và mRNA mục tiêu của nó sẽ dẫn đến ức chế tịnh tiến và giảm mức protein của gen mục tiêu (B). Trong một số điều kiện nhất định, miRNA có thể kích hoạt quá trình dịch mã của mRNA đích (C). miRNA cũng có thể được tìm thấy trong nhân điều hòa phiên mã gen (D), bằng cách làm bất hoạt hoặc kích hoạt gen mục tiêu thông qua các vị trí gắn miRNA trong trình tự khởi động gen. DGCR8, đồng sáng lập khu vực quan trọng của hội chứng DiGeorge 8; TRBP, protein liên kết RNA phản ứng kích hoạt giao dịch.
2.2. Cơ chế điều hòa biểu hiện gen qua trung gian miRNA
miRNA đóng vai trò điều hòa quan trọng trong nhiều quá trình tế bào thông qua điều hòa sau phiên mã trong tế bào chất [12]. Tuy nhiên, một số miRNA trưởng thành cũng đã được tìm thấy trong nhân nơi chúng có thể đóng vai trò trong việc kích hoạt hoặc làm im lặng gen phiên mã [12]. Trong quá trình điều hòa sau phiên mã, tính bổ sung cơ sở giữa miRNA và mRNA mục tiêu của nó chủ yếu xảy ra thông qua vùng mầm của miRNA và trình tự bổ sung của 30 -vùng chưa được dịch mã (30UTR) của mRNA [18]. Vùng hạt giống là một trình tự 6-mer hoặc 7-mer trong 2-8 hoặc 1-8 cơ sở đầu tiên của đầu 50 của miRNA, tương ứng, có thể nhận ra các mRNA mục tiêu [21].
Ngoài vùng hạt chuẩn, một vùng hạt mở rộng đã được phát hiện đại diện cho trình tự 6-mer trong các vị trí miRNA 4–10 [21]. Chuỗi 6-mer này trùng lặp một phần với chuỗi chính tắc và đã có báo cáo rằng cả hai chuỗi này đều có thể khớp với mục tiêu của mình với tỷ lệ cao tương tự [21]. Mặc dù sự bổ sung được mô tả nhiều nhất đã được báo cáo giữa miRNA và vùng 30UTR của mRNA, nhưng sự gắn kết của miRNA với 50UTR hoặc vùng mã hóa của mRNA mục tiêu cũng đã được quan sát thấy [10].
Có thể phân biệt các cơ chế hoạt động khác nhau của miRNA. Một mặt, sự khớp hoàn hảo giữa miRNA và mRNA mục tiêu 30UTR của nó có thể dẫn đến suy giảm trực tiếp mRNA (Hình 1A), mặt khác, sự khớp không hoàn hảo có thể gây ra ức chế tịnh tiến (Hình 1B) và giảm protein mức độ của gen mục tiêu [22]. Thật thú vị, người ta đã mô tả rằng trong các điều kiện cụ thể, miRNA cũng có thể kích hoạt quá trình dịch mã của các mRNA mục tiêu (Hình 1C) [23].
Dữ liệu gần đây cho thấy rằng một số miRNA nhất định cũng có thể được tìm thấy trong nhân, điều chỉnh quá trình phiên mã gen (Hình 1D), bằng cách làm im lặng hoặc kích hoạt gen mục tiêu thông qua các vị trí gắn miRNA trong các chất kích thích gen [13]. Mặc dù cần nghiên cứu thêm để hiểu quá trình định vị hạt nhân của miRNA, nhưng các cơ chế khác nhau có thể giải thích quá trình này gần đây đã được đề xuất: (a) miRNA được vận chuyển trở lại nhân bởi các protein khác nhau hoặc, (b) tất cả các quá trình tổng hợp miRNA nhất định xảy ra trong nhân [13,24].
Mẫu biểu hiện của miRNA có thể dành riêng cho tế bào và mô. miRNA rất cần thiết cho sự phát triển bình thường và cân bằng nội môi của cơ quan, đồng thời chúng tham gia vào các quá trình cơ bản của tế bào như tăng sinh, biệt hóa, chết theo chương trình và chuyển hóa [6,7]. Hơn nữa, miRNA có liên quan đến nhiều tình trạng bệnh lý như ung thư, rối loạn tim mạch, bệnh tự miễn và bệnh thận [8–10].

3. miRNA trong Sinh lý và Bệnh thận
miRNA đã được phát hiện trong mô thận trưởng thành và phôi thai và đã được chứng minh là đóng vai trò quan trọng trong sự phát triển và cân bằng nội môi của thận, trong khi việc bãi bỏ quy định của chúng có liên quan đến các bệnh thận khác nhau.
các nghiên cứu lập hồ sơ biểu hiện miRNA đã phát hiện ra rằng miR-192, miR-194, miR-204, miR-215, miR-216 [25], miR{{6} }a và miR-886 [7] được ưu tiên biểu hiện ở thận so với các mô khác. Ngoài ra, các miRNA như let-7ag, miR-10a/b, miR-21, miR-30ae, miR-130, miR{{16} }, miR-196a/b, miR-200a và miR-872 cũng đã được xác nhận là biểu hiện trong mô thận [26].
Các nghiên cứu gần đây cho thấy vai trò quan trọng của miRNA trong việc điều chỉnh sự phát triển của thận. Cụ thể, các miRNA phụ thuộc vào Dicer như miR-17 và 106b [27] đã được chứng minh là cần thiết cho sự sống sót của nephron [28,29], trong khi đột biến có điều kiện của enzyme xử lý tiền miR Dicer1 trong việc phát triển biểu mô thận hoặc stroma dẫn đến những khiếm khuyết đáng kể trong quá trình hình thành thận [28]. Một số dòng bằng chứng chỉ ra vai trò của các miRNA khác nhau trong việc điều chỉnh cấu trúc và cân bằng nội môi của thận [6,30]. Bijkerk và cộng sự. [31] đã chứng minh rằng miR-132 có vai trò quan trọng trong việc điều chỉnh cân bằng nước trong cơ thể [31] và mức độ renin ở trạng thái ổn định phụ thuộc vào muối [32], do đó tham gia vào quá trình điều chỉnh RAAS. RAAS rất cần thiết cho việc quản lý muối thận, bảo tồn nước và huyết áp [32].
Điều quan trọng là những thay đổi trong biểu hiện miRNA đã được chứng minh là có ảnh hưởng đến các thành phần của con đường RAAS [33]. họ miR-466a/b/c/e được điều chỉnh bởi aldosterone (ALDO) và góp phần tạo ra vòng phản hồi tiêu cực làm giảm tín hiệu ALDO dài hạn. Do đó, họ miR-466a/b/c/e bảo vệ các mô nhạy cảm với aldosterone khỏi phơi nhiễm ALDO quá mức [33] và đóng vai trò quan trọng trong cân bằng nội môi của thận. Hơn nữa, miR-6869- 5p cũng đã được mô tả như một bộ điều chỉnh của tầng RAAS [34]. Ngoài ra, miR-181 và miR-663 đã được chứng minh là điều chỉnh biểu hiện renin trong các tế bào cạnh cầu thận [35–37]. miR-200b và miR-717 rất cần thiết để duy trì cân bằng nội môi điện giải [38], trong khi miR-192 điều chỉnh quá trình vận chuyển natri trong tế bào biểu mô thận [39,40]
Xơ hóa ống kẽ thận (TIF) là một quá trình nguy hiểm được đặc trưng bởi sự phá hủy nhu mô thận [41] và là một con đường quan trọng trong sự tiến triển của CKD [42]. Nhiều nghiên cứu đã hỗ trợ vai trò của miRNA trong xơ hóa thận. Ví dụ, mức độ của họ miR-29a đã được chứng minh là giảm trong mô thận bị ảnh hưởng bởi xơ hóa [8,18,43]. Một nghiên cứu từ Chau et al. đã báo cáo rằng miR-21 đã được điều hòa lại trong bệnh xơ hóa thận và bệnh thận do tiểu đường, trong khi những con chuột bị hạ gục miR-21 biểu hiện ít tổn thương thận hơn sau khi tắc nghẽn niệu quản một bên (UUO) hoặc tổn thương tái tưới máu do thiếu máu cục bộ [44]. Một số microRNA khác như họ miR-200, miR-214, miR-199, miR-382, miR-133, miR-212 [15] , mir-433, và miR-192 [45], miR-184 [8], và họ miR-30 [15] cũng đã được chứng minh là có tham gia vào quá trình này xơ hóa thận và/hoặc quá trình chuyển tiếp trung mô-biểu mô ống thận (EMT), một trong những cơ chế chính trong cơ chế bệnh sinh của TIF thận [46,47].
Bệnh thận đái tháo đường (DN) là một biến chứng đã biết của bệnh đái tháo đường týp 1 và 2 có thể dẫn đến bệnh thận tiến triển. Nhiều loại miRNA đã được báo cáo là có liên quan đến cơ chế bệnh sinh của DN, chẳng hạn như các họ miR-21, miR-25 và mir-29, miR-34a{{6 }}p, miR-141, miR-184, miR-370, miR-377, miR-503, gia đình -7, miR{{ 13}}, miR-126, miR-130b, miR-192, miR-424 và miR-146a, v.v., như được xem xét trong [8 ]. Ví dụ, miR-192 cho thấy biểu hiện gia tăng ở cầu thận của chuột mắc bệnh tiểu đường [48], trong khi nó giảm ở các tế bào biểu mô ống lượn gần trong quá trình xơ hóa [49]. Trong mô hình chuột của DN, miR-141 giảm ở thận bị ảnh hưởng, sau đó dẫn đến sự gia tăng TGF- 1 và sự phát triển của xơ hóa thận [50]. miR-503 có liên quan đến rối loạn chức năng nội mô do tiểu đường [51], và sự biểu hiện quá mức của nó cũng gây ra tổn thương tế bào túi thừa [52]. Dữ liệu gần đây cho thấy mức độ thấp của miR-25 [53] và miR-126 [54] trong máu ngoại vi của bệnh nhân tiểu đường.
Hơn nữa, Lv et al. [55] đã chứng minh sự giảm miR-130b trong huyết tương của bệnh nhân DN và đề xuất miRNA này như một yếu tố dự đoán tiềm năng của DN [55]. Vương và cộng sự. [56] đã mô tả sự giảm đáng kể của miR-424 trong mô thận bị ảnh hưởng bởi DN loại 1 so với thận khỏe mạnh, trong khi sự điều chỉnh tăng của nó đã ức chế quá trình chết theo chương trình và giảm những thay đổi bệnh lý ở thận [56]. Tương tự, mir-146a làm giảm cầu thận của bệnh nhân tiểu đường và có liên quan đến sự phát triển của tổn thương cầu thận và suy giảm chức năng thận [57]. Ngoài ra, miR-377 được biểu hiện quá mức trong các tế bào trung mô của chuột trong DN [58].
Vai trò của miRNA đối với sự phát triển và sinh lý của thận, cũng như trong các tình trạng bệnh lý của thận như TIF thận, tổn thương thận cấp tính, DN, viêm thận lupus, bệnh thận IgA, bệnh thận đa nang, v.v., đã được xem xét rộng rãi ở những nơi khác [ 7,8,59,60]. Do đó, trong bài đánh giá này, chúng tôi sẽ tập trung chú ý vào vai trò tiềm năng của miRNA đối với bệnh thận liên quan đến béo phì.
4. Bệnh thận liên quan đến béo phì
Béo phì là một bệnh dịch toàn cầu đang gia tăng và là một vấn đề sức khỏe lớn trên thế giới. Do lối sống thay đổi nhanh chóng, tỷ lệ béo phì và các biến chứng liên quan đến béo phì đã tăng lên đáng kể trong vòng hai thập kỷ qua. Người ta đã chứng minh rằng béo phì là một yếu tố rủi ro độc lập đối với sự phát triển của CKD và tiến triển thành ESRD [61,62]. Quan sát ban đầu từ đoàn hệ nghiên cứu tim Framingham cho thấy mối liên quan giữa chỉ số khối cơ thể (BMI) cao và nguy cơ mắc CKD cao hơn [63]. Béo phì có thể gây ra những thay đổi về hình thái và huyết động ở thận [64], bên cạnh viêm thận [65] và stress oxy hóa [4], có thể dẫn đến suy giảm chức năng thận và sau đó là xơ cứng cầu thận và TIF thận [64,66].

4.1. Ảnh hưởng của mỡ đối với thận
Một lượng đáng kể chất béo trong cơ thể thường được lưu trữ trong mô mỡ (AT) dưới dạng chất béo trung tính [67,68]. Là một cơ quan nội tiết trao đổi chất tích cực, AT cảm nhận được những thay đổi trong cân bằng năng lượng hệ thống và tham gia tích cực vào việc điều hòa cân bằng nội môi năng lượng [69], thông qua các cơ chế điều tiết autocrine và/hoặc paracrine [69]. Ngay sau khi kho AT tổng thể bị vượt qua, lipid tuần hoàn sẽ bắt đầu tích tụ ngoài tử cung trong các mô không chứa mỡ bao gồm cả thận, góp phần gây tổn thương mô thông qua một quá trình được gọi là nhiễm độc mỡ [68,70]. Hơn nữa, sự phì đại bất thường của AT sẽ dẫn đến những thay đổi trong mô hình bài tiết adipocytokine được coi là sự gia tăng của leptin, resistin và visfatin trong huyết thanh, cũng như giảm adiponectin [71], cùng với các thông số viêm và xơ hóa có thể dẫn đến tế bào thận rối loạn chức năng (Hình 2). Moorhead và cộng sự lần đầu tiên giải thích một cơ chế mà theo đó nồng độ lipid bất thường có thể gây ra sự tiến triển của bệnh thận, đề xuất giả thuyết nhiễm độc thận do lipid [72]. Cụ thể, ở thận, có một số loại tế bào đặc biệt nhạy cảm với sự tích tụ lipid như tế bào biểu mô ống lượn gần (RPTEC), tế bào podocytes và tế bào trung mô [73].
Đặc biệt RPTEC dường như nhạy cảm nhất với tình trạng quá tải lipid vì ống lượn gần hầu như chỉ sử dụng chất béo làm nguồn năng lượng của chúng. Thật vậy, lipid là một nguồn và dự trữ năng lượng quan trọng và có vai trò thiết yếu trong việc truyền tín hiệu trong và ngoài tế bào trong hầu hết các tế bào sống. Tuy nhiên, sự tích tụ lipid trong các tế bào không có bộ máy phân tử đầy đủ để xử lý lượng lipid lớn [74,75], chẳng hạn như tế bào thận nội tại, có thể gây tổn thương và rối loạn chức năng thận bằng cách kích hoạt các cơ chế tác động khác nhau như tạo ra ROS [2], suy giảm hoạt động của renin–angiotensin–aldosterone [3], bài tiết các yếu tố tiền viêm và xơ hóa [4], và kháng insulin [3] (Hình 2). Những sự kiện thứ cấp tự kéo dài này sau đó dẫn đến suy giảm dần dần cấu trúc và chức năng của thận.
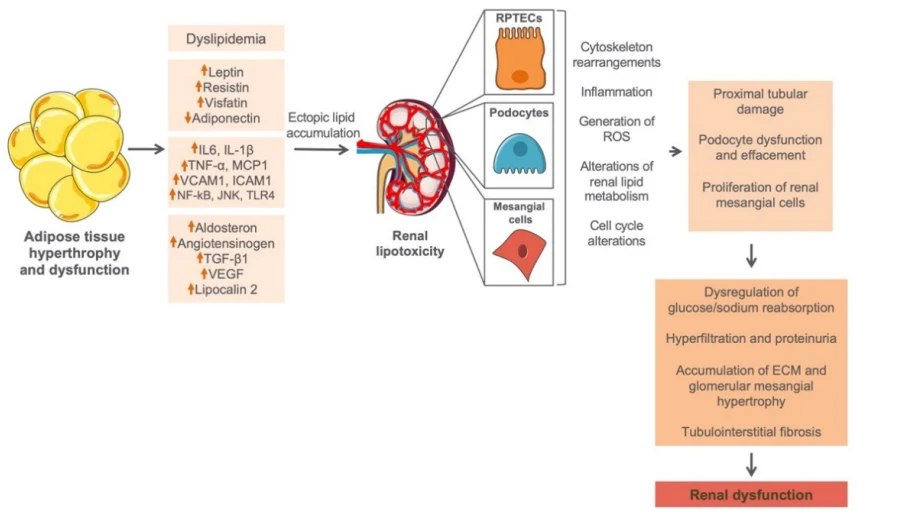
Hình 2. Ảnh hưởng của mỡ đối với chức năng thận bình thường. Sự phì đại bất thường của mô mỡ trong bệnh béo phì có thể dẫn đến những thay đổi trong biểu hiện của các adipocytokine khác nhau, các thông số gây viêm và xơ hóa, cũng như sự tích tụ lipid tuần hoàn trong thận, góp phần gây tổn thương mô thông qua một quá trình được gọi là nhiễm độc mỡ. RPTEC, podocytes và tế bào trung mô không được trang bị đầy đủ máy móc để xử lý tình trạng quá tải lipid lớn; do đó, sự tích tụ lipid trong các tế bào này sẽ dẫn đến rối loạn chức năng tế bào kèm theo việc tạo ra ROS, suy giảm hoạt động của renin–angiotensin–aldosterone, bài tiết các yếu tố tiền viêm và chức năng, và kháng insulin. Những sự kiện thứ cấp tự kéo dài này sau đó có thể dẫn đến tổn thương thêm các tế bào thận và suy giảm dần cấu trúc và chức năng của thận. RPTECs, tế bào biểu mô ống lượn gần; ROS, các loại oxy phản ứng; ECM, ma trận ngoại bào.
4.2. Đặc điểm của bệnh thận liên quan đến béo phì
Bệnh thận liên quan đến béo phì được đặc trưng bởi tăng trọng lượng thận và phì đại các nephron riêng lẻ [3,76]. Do đó, phì đại ống thận và cầu thận đại diện cho hai thay đổi cấu trúc quan trọng của nephron liên quan đến mỡ. Đặc biệt, các đối tượng béo phì cho thấy kích thước cầu thận 3-tăng gấp lần và tăng sự hình thành các mao mạch cầu thận mới [5], có thể là do siêu lọc cầu thận [5]. Sự gia tăng tốc độ lọc cầu thận trong bệnh béo phì dẫn đến phân suất lọc cao hơn và quá tải ống thận, điều này có thể kích thích tái hấp thu natri và nước ở ống lượn gần, và sau đó tăng thêm mức lọc cầu thận thông qua phản hồi ống thận [5]. Những thay đổi huyết động thận như vậy đại diện cho cơ sở sinh lý bệnh quan trọng nhất đối với tổn thương thận liên quan đến béo phì.
Nhiều bằng chứng cho thấy mối liên quan giữa tích lũy lipid ở thận và rối loạn chức năng thận trong các mô hình bệnh khác nhau ở động vật, bao gồm các mô hình bệnh CKD và các mô hình bệnh chuyển hóa (béo phì, đái tháo đường và hội chứng chuyển hóa) [64,77–89]. Trong các mô hình đã đề cập, phần lớn thiệt hại đối với RPTEC và cầu thận đã được mô tả, do sự lắng đọng quá nhiều lipid trong các tế bào này. Ở người, sự tích tụ lipid ở thận đã được đặc trưng trong một số tình trạng, chẳng hạn như xơ hóa cầu thận từng đoạn khu trú (FSGS) [90], xơ hóa thận do tăng huyết áp [91], bệnh thay đổi tối thiểu (MCD) [92], bệnh Fabry [93] và bệnh cầu thận lipoprotein. [94]. Hơn nữa, béo phì và tích lũy lipid ở thận là rất cần thiết cho sự khởi phát và tiến triển của DN ở bệnh tiểu đường loại 2 (T2D). Do đó, DN trong T2D (T2DN) cũng có thể được coi là bệnh thận liên quan đến béo phì [70].
Mặc dù ngày càng có nhiều báo cáo liên quan đến béo phì và lượng lipid cao với suy thận, cơ chế phân tử chi phối sự phát triển của rối loạn chức năng thận vẫn chưa được hiểu đầy đủ. Do đó, nhu cầu chưa được đáp ứng là khám phá các con đường trị liệu tiềm năng mới để ngăn ngừa và/hoặc đảo ngược tác động bất lợi của bệnh béo phì và mức lipid bất thường đối với chức năng thận.
5. miRNA và vai trò chức năng của chúng đối với bệnh thận liên quan đến béo phì
Nhiều nghiên cứu đã hỗ trợ vai trò của miRNA trong các bệnh thận khác nhau, tuy nhiên kiến thức về vai trò của chúng đối với bệnh thận liên quan đến béo phì là khan hiếm. Ở đây chúng tôi mô tả sự đóng góp của miRNA vào các khía cạnh khác nhau của bệnh thận liên quan đến béo phì. Chúng tôi mô tả cách miRNA ảnh hưởng đến sự khởi đầu và tiến triển của chấn thương thận liên quan đến béo phì. Ngoài ra, bất cứ khi nào có thể, chúng tôi mô tả các lộ trình truyền tín hiệu liên quan đến các phản ứng qua trung gian miRNA ở thận (Bảng 1).
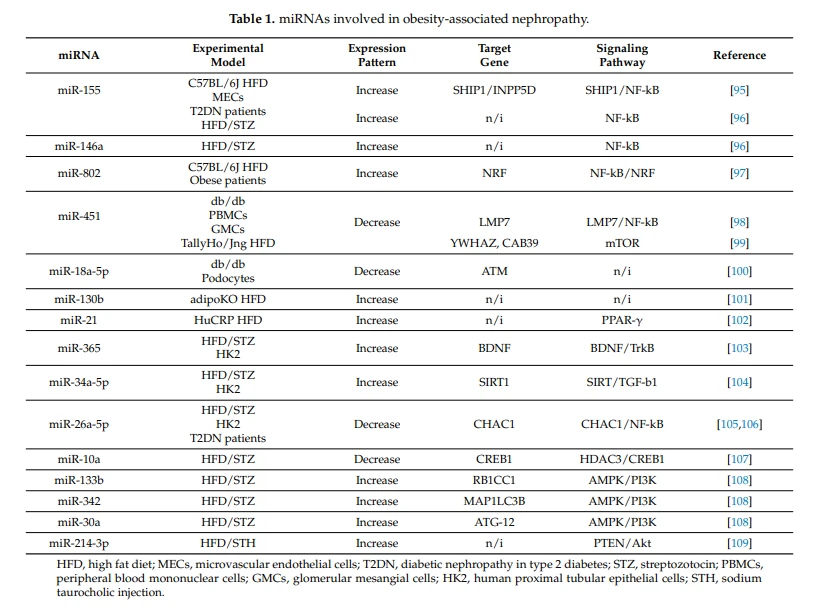
miR-155 được thể hiện trong các tế bào khác nhau của thận, chẳng hạn như tế bào ống, tế bào nội mô và mô đệm, và mức độ cao của nó đã được báo cáo là có liên quan đến các loại CKD khác nhau. Trịnh và cộng sự. (2019) đã chứng minh vai trò quan trọng của miR-155 trong bệnh thận liên quan đến béo phì [95]. Cụ thể, các tác giả đã tiết lộ rằng những con chuột được cho ăn chế độ ăn nhiều chất béo (HFD) biểu hiện sự gia tăng rõ rệt của miR-155 thận, tương quan thuận với tổn thương cấu trúc và chức năng của thận. Hơn nữa, việc điều trị các tế bào nội mô mạch máu thận bằng axit palmitic dẫn đến sự gia tăng biểu hiện miR-155, sau đó là tổn thương tế bào lipotoxic, viêm và stress oxy hóa. Các tác giả chứng minh rằng miR-155 nhắm trực tiếp vào 3´-UTR của SHIP1/INPP5D và ngăn chặn sự biểu hiện của nó trong ống nghiệm và trong cơ thể sống gây ra phản ứng viêm thận thông qua con đường NF-kB [95].
Thật thú vị, sự ức chế cụ thể của miR-155 dẫn đến ức chế tín hiệu SHIP1/NF-kB ở thận và cải thiện đáng kể tình trạng viêm do chế độ ăn kiêng, stress oxy hóa và rối loạn chức năng thận [95]. Kết quả tương tự cũng thu được ở T2DN, một chứng rối loạn thận đặc trưng bởi béo phì và tích tụ lipid ở thận. Cụ thể, các tác giả đã cho thấy sự gia tăng rõ rệt biểu hiện miR-155 ở thận người và chuột bị ảnh hưởng bởi T2DN [96]. Cùng một nhóm đã mô tả một mẫu biểu thức tương tự cho miR-146a trong T2DN [96].
Một bằng chứng khác về vai trò của miRNA trong bệnh thận liên quan đến béo phì là công trình gần đây của Sun et al. (2019) [97]. Cụ thể, các tác giả đã chứng minh sự gia tăng rõ rệt biểu hiện miR-802 ở thận của chuột C57BL/6J được cho ăn HFD, tương quan thuận với các thông số chức năng thận của chuột béo phì, chẳng hạn như BUN huyết thanh và creatinine [97]. Một cách nhất quán, những bệnh nhân béo phì đã chứng minh mức miR-802 lưu hành cao hơn so với những người gầy, tương quan thuận với nồng độ creatinine nhưng tiêu cực với độ thanh thải creatinin.
Điều thú vị là, bằng cách sử dụng phương pháp phân phối lentillin mang microbubble dựa trên siêu âm để làm im lặng miR-802 ở thận, các tác giả đã xác nhận rằng sự ức chế của miR-802 được bảo vệ chống lại tình trạng viêm do HFD, thâm nhiễm đại thực bào, xơ hóa và chức năng tổn thương thận. Về mặt cơ học, Sun et al. cung cấp bằng chứng về sự ràng buộc trực tiếp của miR-802 với 30UTR của yếu tố ức chế NF-kB (NRF) và xác nhận rằng tín hiệu miR-802/NF-kB/NRF có thể là một trong những cơ chế phân tử chi phối quá trình của bệnh thận liên quan đến béo phì. Các tác giả đã đề xuất lợi ích điều trị của việc sử dụng chất ức chế miR-802 và đề xuất miR-802 như một dấu ấn sinh học tiềm năng của rối loạn chức năng thận ở những đối tượng béo phì [97].
Mặt trời và cộng sự. (2016) [98] đã đề xuất vai trò bảo vệ cho miR-451 trong chấn thương thận liên quan đến béo phì. Cụ thể, các tác giả đã cho thấy sự điều hòa giảm đáng kể miR-451 ở thận của chuột db/db DN béo phì và tế bào đơn nhân máu ngoại vi (PBMC) của bệnh nhân mắc DN. Một cách nhất quán, các tế bào trung mô được điều trị bằng glucose cao cho thấy sự điều hòa ngược phụ thuộc vào liều của miR-451 [98]. Mặt trời và cộng sự. đã xác nhận rằng miR-451 nhắm mục tiêu trực tiếp 30 -UTR của LMP7 và ngăn chặn con đường LMP7/NF-kB điều chỉnh các phân tử tiền viêm xuôi dòng trong các tế bào trung mô.
Điều quan trọng là, sự biểu hiện quá mức của miR-451 đã cải thiện đáng kể tổn thương cầu thận, albumin niệu và biểu hiện của các yếu tố tiền viêm và xơ hóa ở vỏ thận của chuột béo phì db/db. Một bằng chứng khác về vai trò của miR-451 đối với tổn thương thận do béo phì là nghiên cứu của Fluitt et al. (2020) [99]. Các tác giả đã sử dụng mô hình chuột TallyHo/Jng (TH) kháng insulin được chứng minh là không nhạy cảm với sự phát triển của viêm thận, tổn thương và xơ hóa và họ đã đánh giá vai trò của miR-451 trong việc khởi phát bệnh thận do HFD gây ra cho ăn. Đáng quan tâm, sự ức chế hệ thống kéo dài của miR-451 đã dẫn đến phì đại thận đáng kể, albumin niệu, tổn thương thận, xơ hóa và lắng đọng glycogen, cũng như rối loạn điều hòa quá trình tự thực ở chuột béo phì TallyHo/Jng (TH). Hơn nữa, các thí nghiệm trong ống nghiệm đã xác nhận YWHAZ và CAB39 là mục tiêu trực tiếp cho miR-451 và hỗ trợ vai trò của miR-451 trong việc giảm tổn thương ống thận bằng cách tăng cường quá trình tự thực ở chuột béo phì thông qua con đường truyền tín hiệu mTOR [99] .
miR-18a-5p đã được phát hiện là bị điều hòa giảm rõ rệt ở thận của những con chuột db/db béo phì với tổn thương và rối loạn chức năng cầu thận rõ ràng [100]. Việc điều chỉnh lại miR-18a-5p bằng cách điều trị bằng resveratrol ở chuột đã dẫn đến sự gia tăng bệnh tự thực và giảm quá trình chết theo chương trình ở thận bị ảnh hưởng, làm giảm tổn thương thận ở chuột béo phì. Một cách nhất quán, sự biểu hiện quá mức của miR-18a-5p trong các tế bào podocytes đã xác nhận kết quả in vivo, đề xuất miRNA này như một chất điều chỉnh tiêu cực quá trình chết theo chương trình thông qua điều chế quá trình tự thực. Các tác giả đã xác định gen đột biến Atactic telangiectasis (ATM) là mục tiêu trực tiếp của miR-18a-5p và đề xuất rằng tác động của miRNA này đối với quá trình tự thực và chết theo chương trình có thể được điều chỉnh thông qua việc nhắm mục tiêu ATM.
miR-130b cũng đã được nghiên cứu trong bối cảnh bệnh thận liên quan đến béo phì. Đặc biệt, các tác giả đã tìm thấy sự gia tăng rõ rệt về mức độ miR-130b và tăng tốc độ rối loạn chức năng thận ở chuột adiponectin KO (adipoKO) được cho ăn HFD [101]. Chuột AdipoKO được cho ăn HFD có dấu hiệu phì đại thận, albumin niệu, tích tụ lipid và giảm biểu hiện nephrin. Các tác giả đề xuất rằng sự biểu hiện gia tăng của miR-130b ở chuột adipoKO được cho ăn HFD có thể góp phần tích lũy lipid ở thận và sau đó dẫn đến sự tiến triển của bệnh thận khi không có tác dụng bảo vệ thận của adiponectin.
miR-21 là một trong những miRNA gây bệnh được điều tra rộng rãi trong bệnh thận, chủ yếu là do các đặc điểm xơ hóa của nó và sự tham gia vào con đường truyền tín hiệu TGF- 1 [110]. Quan tâm, Morrison et al. (2017) [102] đã điều tra sự liên quan của miR-21 trong rối loạn chức năng thận liên quan đến béo phì. In vivo , những con chuột biến đổi gen HuCRP được cho ăn HFD dựa trên mỡ lợn đã phát triển bệnh béo phì kèm theo albumin niệu, viêm thận, chấn thương và xơ hóa. Các tác giả đã chứng minh rằng những con chuột béo phì có biểu hiện gia tăng của miR-21 trong thận so với những con chuột được cho ăn thức ăn chow thông thường, tương quan đáng kể với biểu hiện của dấu hiệu tổn thương ống thận Kim-1 và mức độ tổn thương thận. xơ hóa. Các tác giả đề xuất con đường PPAR- như một liên kết có thể có trong việc điều chỉnh mức miR-21 trong bệnh thận do béo phì [102].
Như đã nêu ở trên, T2DN cũng được coi là một bệnh thận liên quan đến béo phì [111], trong khi sự tích tụ lipid ở thận và những thay đổi chuyển hóa liên quan đến béo phì là điều cần thiết cho sự khởi phát và tiến triển của T2DN. Một trong những mô hình động vật thường được sử dụng để nghiên cứu sự tiến triển bệnh lý của bệnh tiểu đường loại 2 và hậu quả của nó đối với các cơ quan khác là mô hình động vật gặm nhấm chứa nhiều chất béo chứa streptozotocin (HFD/STZ).
Do đó, Zhao et al. (2021) [103] đã mô tả vai trò của miR-365 đối với bệnh thận do điều trị HFD/STZ gây ra ở chuột. miR-365 đã được biểu hiện đáng kể trong mô thận bị bệnh cùng với BUN và creatinine huyết thanh tăng cao, albumin trong nước tiểu và các dấu hiệu viêm. Các tác giả đã đề xuất rằng miR-365 có một vị trí gắn kết tiềm năng cho BDNF và rằng sự gia tăng của miR-365 đã ức chế biểu hiện protein của BDNF và p-TrkB, do đó thúc đẩy tổn thương thận thông qua trục tín hiệu BDNF/TrkB. Quá trình điều hòa giảm của miR-365 dẫn đến giảm tiết các cytokine gây viêm và các dấu hiệu chức năng trong các tế bào biểu mô ống lượn gần ở người (HK2) được điều trị bằng glucose cao, trong khi biểu hiện BDNF tăng cho phép giảm tổn thương và rối loạn chức năng tế bào thận [103] .
Xu và cộng sự. (2018) [104] đã chứng minh sự tham gia của miR-34a-5p trong T2DN do HFD/STZ gây ra ở chuột và đề xuất miRNA này như một ứng cử viên đầy triển vọng để phát triển một công cụ trị liệu mới nhằm ngăn chặn / xử DN. Cụ thể, miR-34a-5p cho thấy sự điều hòa tăng đáng kể trong mô thận của chuột mắc bệnh tiểu đường do HFD/STZ và các tế bào HK2 được điều trị bằng glucose cao, cùng với sự gia tăng đáng kể của các dấu hiệu chức năng như collagen, fibronectin và TGF- 1. Các tác giả cung cấp bằng chứng rằng miR-34a-5p nhắm mục tiêu trực tiếp 30UTR của SIRT1 làm mục tiêu chính hãng của nó và đề xuất miR-34a-5p/SIRT/TGF{{16} } tín hiệu là yếu tố quan trọng trong tổn thương ống kẽ thận trong T2DN [104].
Lý và cộng sự. (2019) [105] đã đề xuất vai trò bảo vệ đối với miR-26a-5p trong rối loạn chức năng thận do điều trị HFD/STZ gây ra. Các tác giả đã chứng minh rằng việc ức chế miR-26a-5p trong các tế bào HK2 đã thúc đẩy phản ứng viêm trong các tế bào này, trong khi sự biểu hiện quá mức của nó làm cải thiện rối loạn chức năng tế bào. Bằng cách sử dụng thử nghiệm trình báo cáo TargetScan và luciferase, các tác giả đã xác nhận rằng miR-26a-5p đã nhắm mục tiêu trực tiếp vào 30 -UTR của CHAC1 trong các ô HK2, trong khi các thử nghiệm tăng và giảm chức năng tiếp theo tiết lộ rằng miR-26a-5p đã cải thiện phản ứng viêm trong tế bào thận thông qua con đường CHAC1/NF-kB. Thật thú vị, cùng một nhóm đã chỉ ra rằng miR-26a-5p đã giảm đáng kể trong exosome nước tiểu của bệnh nhân T2DN [105,106].
Shan và đồng nghiệp (2016) [107] đã đánh giá vai trò của miR-10a trong sự tích tụ chất nền ngoại bào ở thận của bệnh đái tháo đường do điều trị kết hợp HFD/STZ. Họ quan sát thấy rằng cả quản trị HFD và HFD/STZ đều làm giảm mức biểu hiện của miR-10trong thận chuột. Ngoài ra, việc tiêm miR-10a bắt chước vào tĩnh mạch ở đuôi làm suy giảm tỷ lệ albumin-creatinine (ACR) trong nước tiểu cao hơn và đảo ngược tổn thương thận do HFD/STZ gây ra, trong khi việc làm im lặng miR-10a lại làm tăng tỷ lệ ACR thận ở chuột ngây thơ. Quan tâm, Shan et al. đã chứng minh rằng miR-10a nhắm mục tiêu trực tiếp vào 3 0UTR của CREB1, do đó điều chỉnh quá trình sản xuất và tích lũy chất nền ngoại bào và chức năng thận trong bệnh thận do béo phì. Nhìn chung, các tác giả đề xuất con đường HDAC3/miR-10a/CREB1 như một cơ chế truyền tín hiệu khả thi mới điều chỉnh tổn thương thận ở bệnh tiểu đường loại 2.
Matboli và cộng sự. (2017) [108] đã mô tả vai trò của miR-133b, miR-342 và miR-30a trong bệnh thận do điều trị HFD/STZ ở chuột gây ra. Các miRNA được phân tích đã được điều chỉnh tăng đáng kể trong mô thận bị bệnh cùng với lipid huyết thanh và BUN tăng cao, độ thanh thải creatinine và albumin trong nước tiểu. Hơn nữa, các tác giả đã xác định các gen autophagy RB1CC1, MAP1LC3B và ATG-12 lần lượt là mục tiêu trực tiếp của miR-133b, miR-342 và miR-30a. Các tác giả đã đưa ra giả thuyết rằng HFD/STZ đã điều chỉnh tăng miR-133b, miR-342 và miR-30a với sự điều hòa giảm quá trình tự thực ở thận dẫn đến rối loạn chức năng thận có thể thông qua con đường AMPK/PI3K [108].
miR-214 được biểu hiện cao trong bệnh thận ở người và mô hình bệnh thận ở động vật [112]. Do đó, Yan et al. (2019) đã tìm thấy miR-214-3p được điều chỉnh tăng trong thận và huyết thanh của chuột được điều trị bằng phương pháp điều trị kết hợp HFD dài hạn và tiêm natri taurocholic ngắn hạn [109]. Chuột bị tổn thương thận và viêm tụy, sau đó là sự ức chế biểu hiện PTEN và tăng nồng độ pAkt ở thận. Điều trị chuột bằng anti-miR-214-3p đã đảo ngược tình trạng viêm và xơ hóa thận, cũng như các biểu hiện của PTEN và pAkt. Các tác giả đề xuất con đường miR-214- 3p/PTEN/Akt chịu trách nhiệm về tổn thương và xơ hóa mô trong mô hình chuột HFD/natri taurocholic.
Lý và cộng sự. [113] cho thấy sự rối loạn mạnh mẽ của hồ sơ biểu hiện miRNA ở cả mô hình lợn và đối tượng người mắc hội chứng béo phì và chuyển hóa (MetS). Cụ thể, việc cung cấp các túi ngoại bào được tạo ra bởi tế bào gốc trung mô mô mỡ từ lợn MetS béo phì đến động vật mắc bệnh mạch máu làm trầm trọng thêm tình trạng lão hóa và xơ hóa thận ở thận bị tổn thương [113].

6. miRNA như một Phương pháp Trị liệu Mới trong CKD: Ưu điểm và Quan điểm
Với nhiều bằng chứng về sự liên quan của miRNA trong cơ chế bệnh sinh của các bệnh khác nhau, có thể tin rằng việc điều chế miRNA và chức năng của chúng có thể được sử dụng như một phương pháp điều trị trong các bệnh thận khác nhau, bao gồm cả bệnh thận liên quan đến béo phì. miRNA đóng vai trò thiết yếu trong việc điều hòa gen và có khả năng tác động đến nhiều con đường gen [10]. Do các tính năng cụ thể của chúng, chẳng hạn như một chuỗi ngắn có thành phần nucleotide đã biết được bảo tồn cao, miRNA đại diện cho một loại mục tiêu hấp dẫn mới cho trung gian trị liệu tiềm năng [114].
Về cơ bản, chúng ta có thể phân biệt hai cách tiếp cận trong quá trình phát triển phương pháp trị liệu dựa trên miRNA: (a) ức chế và (b) phục hồi hoạt động/chức năng của miRNA. Hoạt động cụ thể của miRNA có thể bị vô hiệu hóa bằng cách sử dụng một số phương pháp bao gồm các chất ức chế antisense oligonucleotide (ASO) đã biến đổi về mặt hóa học hoặc giới thiệu chuyển gen của các vị trí lặp lại vị trí gắn miRNA song song (được gọi là công nghệ Mồi nhử hoặc Sponge) [115–117]. Các oligonucleotit đối nghĩa đã biến đổi (sau đây gọi là anti-miR) bao gồm một trình tự đảo ngược bổ sung đầy đủ hoặc một phần của miARN trưởng thành và có thể làm giảm mức bản địa của miARN cụ thể. Anti-miR hoạt động như một chất ức chế cạnh tranh của miRNA và phát huy tác dụng của nó sau khi gắn vào chuỗi hướng dẫn miRNA trưởng thành sau khi phức hợp im lặng do RNA gây ra đã loại bỏ chuỗi hành khách [118].
Theo Roij et al. [119], các yêu cầu thiết yếu để chống miR thành công và hiệu quả là (a) hóa học thấm qua tế bào; (b) bài tiết chậm; (c) độ ổn định in vivo; (d) tính đặc hiệu cao liên kết với miRNA quan tâm [119]. Do đó, một số sửa đổi đã được thực hiện trong bối cảnh này cho đến nay, chẳng hạn như sửa đổi hóa học để ổn định và liên hợp cholesterol để hấp thu tế bào tốt hơn [116]. Do đó, một số ví dụ về các phương pháp này là sự ức chế miR-122 bởi 2´-O-methoxyethyl phosphorothioate antisense oligos [120], antisense oligo 20 -O-Me được gắn thẻ cholesterol (antagomir{{12} }) [116], hoặc oligos biến đổi axit nucleic bị khóa antisense (LNA–anti-miR) [121] giúp cải thiện tình trạng tăng cholesterol máu trong mô hình chuột [116,120,121]. Ngoài ra, việc cung cấp LNA–anti-miR-122 một cách có hệ thống đã dẫn đến việc giảm tổng lượng cholesterol trong huyết tương trong một mô hình linh trưởng không phải người trong một thời gian dài mà không có bất kỳ bằng chứng nào về độc tính liên quan đến LNA, do đó xác nhận tiềm năng của các oligonucleotide biến đổi là một điều mới lạ. nhóm phương pháp điều trị cho các miRNA liên quan đến bệnh [115].
Một cách tiếp cận khác được mô tả để ức chế hoạt động cụ thể của miRNA là biểu hiện lặp lại song song của các vị trí gắn miRNA (Decoy hoặc Sponge) [117,122]. Cụ thể, bọt biển miRNA chứa các vị trí liên kết bổ sung với miRNA quan tâm, đặc biệt là vùng hạt giống của nó. Do đó, theo Ebert và cộng sự, bọt biển miRNA sẽ có thể chặn cả một họ miRNA có liên quan [117]. Trịnh và cộng sự. (2019) đã chứng minh rằng việc ức chế miR-155 ở thận bằng phương pháp điều trị bằng bọt biển miR-155 làm giảm hiệu quả tình trạng viêm thận do HFD gây ra, nhiễm độc mỡ, thâm nhiễm đại thực bào, cũng như tổn thương cấu trúc và chức năng của thận do béo phì ở chuột gây ra [ 95].
Trong các bệnh lý về thận trong đó miRNA bị điều hòa quá mức, một phương pháp điều trị tiềm năng sẽ là thiết lập lại chức năng của miRNA bằng cách sử dụng miRNA bắt chước. mô phỏng miRNA là các phân tử RNA sợi kép có thể tách nội bào khỏi RNA sợi đơn. Sau đó, một sợi tải vào RISC và hoạt động như một miRNA [114]. Khôi phục biểu hiện của một số miRNA như miR146, miR-155, miR-451, miR-10a và miR-18a-5p bằng công nghệ bắt chước RNA cải thiện đáng kể tổn thương thận và rối loạn chức năng trong các mô hình bệnh thận in vitro và in vivo khác nhau [96,98,100,107]. Mặc dù đã có những tiến bộ đáng kể trong công nghệ bắt chước miRNA, nhưng vẫn có những vấn đề cần được giải quyết trước khi sử dụng các mô phỏng miRNA trong thực hành lâm sàng. Những vấn đề như vậy sẽ là phân phối in vivo, liều lượng, phản ứng miễn dịch, sự hấp thu của tế bào và tính ổn định in vivo [112].
Nhắm mục tiêu miRNA trong thận tiếp tục là một thách thức quan trọng, đặc biệt nếu chúng ta muốn bỏ qua những hậu quả không mong muốn có thể xảy ra ở các mô và cơ quan khác, cũng như các tác động tiêu diệt mục tiêu [110]. Mặc dù có nhiều ví dụ về việc vận chuyển thành công các chất bắt chước và chất ức chế đến thận thông qua tiêm tĩnh mạch và tiêm dưới da [123], khía cạnh nhắm mục tiêu miRNA đến thận hoặc các tế bào thận cụ thể, đồng thời tránh độc tính và tác dụng phụ ở các mô khác và/ hoặc kích hoạt phản ứng miễn dịch thích ứng, vẫn là một vấn đề quan trọng cần được xem xét. Ngoài việc cung cấp miRNA và các mối lo ngại về an toàn, một khía cạnh khác cần được xem xét trong khi thiết kế các liệu pháp miRNA cho bệnh thận sẽ là sự thanh thải của các phân tử này. Hiện tại, có rất ít dữ liệu từ các nghiên cứu trên động vật về vấn đề này.
Tính ổn định của miRNA là một yêu cầu thiết yếu đối với các liệu pháp dựa trên miRNA. Tiến bộ đáng kể đã được thực hiện để tăng tính ổn định của RNA in vivo bằng các sửa đổi phân tử khác nhau của xương sống [114]. Trong bối cảnh này, sự phát triển của công nghệ axit nucleic bị khóa (LNA) hứa hẹn rất nhiều vì các oligonucleotide được biến đổi LNA (LNA-antimiRs) thể hiện ái lực liên kết cao với các mục tiêu RNA bổ sung và tính ổn định cao in vivo và in vitro [115,121]. Hơn nữa, để tăng cường ái lực cho các nucleotide bổ sung, các sửa đổi 2 0 -O-methoxyethyl (20 -MOE) và 20 -oxy-methyl (20 -OMe) đã được thiết kế và áp dụng thành công [116,120].
7. Kết luận
Ngày càng có nhiều bằng chứng chỉ ra rằng miRNA đóng vai trò tối quan trọng trong việc điều hòa gen và có thể điều chỉnh vô số con đường gen. Người ta đã chứng minh rằng miRNA có vai trò thiết yếu trong việc điều chỉnh sự phát triển và sinh lý bình thường của thận, trong khi biểu hiện bất thường của chúng có liên quan đến sự phát triển của các bệnh thận khác nhau. Hơn nữa, miRNA đã nổi lên như những nhân tố quan trọng trong sự khởi phát và phát triển của các bệnh liên quan đến béo phì bằng cách ảnh hưởng đến tình trạng và chức năng của các tế bào thận bản địa như RPTEC, tế bào podocytes và tế bào trung mô trong quá trình tích lũy lipid ở thận.
RPTEC, podocytes và tế bào trung mô dường như nhạy cảm nhất với sự tích tụ lipid do không có bộ máy phân tử cần thiết để xử lý tình trạng quá tải lipid lớn. Do đó, sự tích tụ lipid trong các tế bào này sẽ dẫn đến rối loạn chức năng và tổn thương tế bào bằng cách kích hoạt viêm, stress oxy hóa, suy giảm hoạt động của renin–angiotensin–aldosterone và kháng insulin. Rõ ràng là lượng lipid cao và nhiễm độc mỡ trong thận điều chỉnh sự biểu hiện của nhiều loại miRNA, và biểu hiện ở thận của chúng tương quan đáng kể với tổn thương tế bào nhiễm độc mỡ, viêm, stress oxy hóa, cũng như tổn thương cấu trúc và chức năng của thận.
Do những đặc điểm độc đáo của chúng, miRNA đã trở thành một loại mục tiêu hấp dẫn mới để can thiệp điều trị trong các bệnh thận khác nhau, bao gồm cả bệnh lý thận liên quan đến béo phì. Nhắm mục tiêu trực tiếp miRNA để ức chế hoặc thiết lập lại hoạt động/chức năng của chúng có thể là một chiến lược trị liệu đầy hứa hẹn. Mặc dù có nhiều thách thức cần giải quyết trên hành trình hướng tới phương pháp trị liệu thành công cho ứng dụng lâm sàng, miRNA vẫn hứa hẹn to lớn trong việc thiết kế một thế hệ trị liệu mới cho các loại bệnh thận khác nhau.
Sự đóng góp của tác giả:
Khái niệm hóa, MB; đánh giá văn học, MC, À.E. và MB; viết— chuẩn bị bản thảo gốc, MC, A.E. và MB; viết—đánh giá và chỉnh sửa, MC, À.E. và MB; minh họa và bảng biểu khoa học, MC và MB; giám sát, MB; quản trị dự án, MB; mua lại tài trợ, MB Tất cả các tác giả đã đọc và đồng ý với phiên bản đã xuất bản của bản thảo.

Kinh phí:
Nghiên cứu này được hỗ trợ bởi quỹ nghiên cứu Miguel Servet CP19/00027 từ Instituto de Salud Carlos III (ISCIII) và quỹ FEDER ''Una manera de hacer Europa". MB được hỗ trợ bởi hợp đồng Miguel Servet từ ISCIII (CP19/00027) được tài trợ bởi Fondo Social Europeo ''El FSE invierte en tu futuro". MC được tài trợ bởi RedInRen RETIC. À.E. được hỗ trợ bởi học viên PFIS từ ISCIII (FI19/00026).
Tuyên bố của Ủy ban Đánh giá Thể chế:
Không áp dụng.
Tuyên bố đồng ý có hiểu biết:
Không áp dụng.
Tuyên bố về tính khả dụng của dữ liệu:
Không áp dụng.
Xung đột lợi ích:
Các tác giả tuyên bố không có xung đột lợi ích.

Người giới thiệu
1. Sharma, tôi.; Liêu, Y.; Trịnh, X.; Kanwar, YS Đại dịch mới: Béo phì và bệnh thận liên quan. Đằng trước. y tế. 2021, 8, 673556. [CrossRef]
2. Lee, ES; Kwon, MH; kim, HM; Kim, N.; Kim, YM; Kim, HS; Lee, EY; Chung, CH Dibenzoylmethane cải thiện tình trạng viêm do lipid gây ra và tổn thương oxy hóa ở bệnh thận đái tháo đường. J. Nội tiết. 2019, 240, 169–179. [Tham khảo chéo]
3. Mathew, AV; Okada, S.; Sharma, K. Bệnh thận liên quan đến béo phì. Curr. Tiểu đường Rev. 2011, 7, 41–49. [Tham khảo chéo]
4. Lee, W.; Êm, DW; Jung, Y.; Yamabe, N.; Lee, S.; Jeon, Y.; Hoàng, YR; Lý, JH; Kim, YK; Khang, KS; et al. Dendrobium moniliforme làm giảm tổn thương thận do chế độ ăn nhiều chất béo gây ra ở chuột thông qua việc điều chỉnh stress oxy hóa do lipid gây ra. Là. J. Chín. y tế. 2012, 40, 1217–1228. [CrossRef] [PubMed]
5. Tsuboi, N.; Okabayashi, Y.; Shimizu, A.; Yokoo, T. Bệnh lý thận của bệnh béo phì. Thận Int. Dân biểu 2017, 2, 251–260. [CrossRef] [PubMed]
6. Quạt, PC; Trần, CC; Chen, YC; Chang, YS; Chu, PH MicroRNAs trong chấn thương thận cấp tính. Hừm. bộ gen. 2016, 10, 29. [CrossRef]
7. Chandrasekaran, K.; Karolina, DS; Sepramaniam, S.; Armugam, A.; Wintour, EM; Bertram, JF; Jeyaseelan, K. Vai trò của microRNA trong cân bằng nội môi và bệnh thận. Thận Int. 2012, 81, 617–627. [Tham khảo chéo]
8. Đường, J.; Yao, D.; Yên, H.; Chen, X.; Vương, L.; Zhan, H. Vai trò của MicroRNA trong cơ chế bệnh sinh của bệnh thận đái tháo đường. quốc tế J. Nội tiết. 2019, 2019, 8719060. [CrossRef] [PubMed]
9. Esteller, M. RNA không mã hóa trong bệnh ở người. tự nhiên Mục sư Genet. 2011, 12, 861–874. [Tham khảo chéo]
10. Mukhadi, S.; Hull, R.; Mbita, Z.; Dlamini, Z. Vai trò của MicroRNA đối với bệnh thận. RNA không mã hóa 2015, 1, 192–221. [CrossRef] [PubMed]
11. McCreight, JC; Schneider, SE; Wilburn, DB; Swanson, WJ Sự phát triển của microRNA ở loài linh trưởng. PLoS MỘT 2017, 12, e0176596. [CrossRef] [PubMed]
12. Pu, M.; Chen, J.; Tao, Z.; Miêu, L.; Tề, X.; Vương, Y.; Ren, J. Mạng quy định của miRNA trên mục tiêu của nó: Sự phối hợp giữa quy định phiên mã và sau phiên mã của biểu hiện gen. Tế bào. mol. Khoa học đời sống 2019, 76, 441–451. [CrossRef] [PubMed]
13. Stavast, CJ; Erkeland, SJ Các khía cạnh phi chính tắc của MicroRNA: Nhiều con đường dẫn đến quy định gen. Cells 2019, 8, 1465. [CrossRef] [PubMed]
14. Kozomara, A.; Birgaoanu, M.; Griffiths-Jones, S. miRBase: Từ trình tự microRNA đến chức năng. Axit nucleic Res. 2019, 47, D155–D162. [CrossRef] [PubMed]
15. Lưu, Z.; Vương, Y.; Thục, S.; Cái, J.; Đường, C.; Dong, Z. Các RNA không mã hóa trong chấn thương và sửa chữa thận. Là. J. Physiol.-Cell. vật lý. 2019, 317, C177–C188. [Tham khảo chéo]
16. Krek, A.; Grün, D.; Poy, MN; Sói, R.; Rosenberg, L.; Epstein, EJ; MacMenamin, P.; da Piedade, tôi.; Gunsalus, KC; Stoffel, M.; et al. Dự đoán mục tiêu microRNA tổ hợp. tự nhiên gien. 2005, 37, 495–500. [Tham khảo chéo]
17. Hà, M.; Kim, VN Quy định về sinh học microRNA. tự nhiên Mục sư Mol. Tế bào sinh học. 2014, 15, 509–524. [Tham khảo chéo]
18. Van der Hauwaert, C.; Glowacki, F.; Pottier, N.; Cauffiez, C. Các RNA không mã hóa là mục tiêu điều trị mới trong bối cảnh xơ hóa thận. quốc tế J. Mol. Khoa học. 2019, 20, 1977. [CrossRef]
19. Reda El Sayed, S.; Cristante, J.; Guyon, L.; Denis, J.; Chabre, O.; Cherradi, N. Liệu pháp MicroRNA trong Ung thư: Những Tiến bộ và Thách thức Hiện tại. Ung thư 2021, 13, 2680. [CrossRef]
20. Guo, L.; Yu, J.; Yu, H.; Triệu, Y.; Trần, S.; Từ, C.; Chen, F. Phân tích biểu hiện và tiến hóa của miR-#-5p và miR-#-3p ở cấp độ miRNA/isomiRs. sinh học. độ phân giải quốc tế 2015, 2015, 168358. [CrossRef]
21. Wang, X. Thành phần của chuỗi hạt giống là yếu tố chính quyết định các mẫu nhắm mục tiêu microRNA. Tin sinh học 2014, 30, 1377–1383. [Tham khảo chéo]
22. Leidinger, P.; Keller, A.; Meese, E. MicroRNAs-Các phân tử quan trọng trong nghiên cứu ung thư phổi. Đằng trước. gien. 2011, 2, 104. [CrossRef] [PubMed]
23. Vasudevan, S.; Tống, Y.; Steitz, JA Chuyển từ đàn áp sang kích hoạt: MicroRNA có thể điều chỉnh quá trình dịch mã. Khoa học 2007, 318, 1931–1934. [Tham khảo chéo]
24. Kim, ĐH; Saetrom, P.; Snøve, O.; Rossi, JJ MicroRNA-directed gen im lặng phiên mã trong các tế bào động vật có vú. Proc. tự nhiên. học viện. Khoa học. Hoa Kỳ 2008, 105, 16230–16235. [Tham khảo chéo]
25. Mặt trời, Y.; Koo, S.; Trắng, N.; Peralta, E.; Ê-sau, C.; Trưởng khoa, NM; Perera, RJ Phát triển một mảng vi mô để phát hiện các microRNA của người và chuột và đặc điểm biểu hiện trong các cơ quan của con người. Axit nucleic Res. 2004, 32, e188. [Tham khảo chéo]
26. Baskerville, S.; Bartel, DP Microarray profiling của microRNA cho thấy sự cùng tồn tại thường xuyên với các miRNA lân cận và gen chủ. ARN 2005, 11, 241–247. [CrossRef] [PubMed]
27. Cổ tử cung, DM; Bodnar, AJ; Phua, YL; Tự do hơn, R.; Hemker, SL; Walensky, LD; Hukriede, NA; Liều lượng gen Ho, J. Bim rất quan trọng trong việc điều chỉnh sự sống sót của tiền thân nephron trong trường hợp không có microRNA trong quá trình phát triển thận. FASEB J. 2017, 31, 3540–3554. [Tham khảo chéo]
28. Nagalakshmi, VK; Ren, Q.; Pugh, MM; Valerius, MT; McMahon, AP; Yu, J. Dicer điều chỉnh sự phát triển của các khoang thận và niệu quản trong thận của động vật có vú. Thận Int. 2011, 79, 317–330. [Tham khảo chéo]
29. Mã, L.; Qu, L. Chức năng của microRNA trong sự phát triển thận và sinh lý bệnh. J. Genet. bộ gen. 2013, 40, 143–152. [Tham khảo chéo]
30. Patel, V.; Noureddine, L. MicroRNA và xơ hóa. Curr. ý kiến. Nephrol. tăng huyết áp. 2012, 21, 410–416. [CrossRef] [PubMed]
31. Bijkerk, R.; Trimpert, C.; van Solingen, C.; de Bruin, RG; Florijn, BW; Kooijman, S.; van den Berg, R.; van der Veer, EP; Brewold, EOW; Rensen, PCN; et al. MicroRNA-132 kiểm soát cân bằng nội môi nước bằng cách điều chỉnh quá trình tổng hợp vasopressin qua trung gian MECP2-MECP. Là. J. Physiol.-Ren. vật lý. 2018, 315, F1129–F1138. [Tham khảo chéo]
32. van Zonneveld, AJ; Âu, YW; Stam, W.; van Gelderen, S.; Người quay, JI; Deen, PMT; Rabelink, TJ; Bijkerk, R. MicroRNA-132 điều chỉnh mức renin ở trạng thái ổn định phụ thuộc vào muối ở chuột. cộng đồng. sinh học. 2020, 3, 238. [CrossRef]
33. Ozbaki-Yagan, N.; Lưu, X.; Bodnar, AJ; Hồ, J.; Butterworth, MB Các microRNA do Aldosterone gây ra hoạt động như các bộ điều chỉnh phản hồi của tín hiệu thụ thể mineralocorticoid trong biểu mô thận. FASEB J. 2020, 34, 11714–11728. [CrossRef] [PubMed]
34. Lưu, hộ; Lý, XQ; Lưu, JF; Cui, S.; Lưu, H.; Hu, B.; Hoàng, SB; Vương, L.; Dương, W.; Vương, CC; et al. miR-6869-5p Được Vận Chuyển Bằng Các Túi Ngoại Tế Bào Trong Huyết Tương Làm Trung Gian Tổn Thương Ống Thận Và Kích Hoạt Hệ Thống Renin-Angiotensin Ở Béo Phì. Đằng trước. y tế. 2021, 8, 725598. [CrossRef] [PubMed]
35. Hagiwara, S.; McClelland, A.; Kantharidis, P. MicroRNA trong bệnh thận đái tháo đường: Renin-angiotensin, aAGE/RAGE, và con đường stress oxy hóa. J. Bệnh tiểu đường Res. 2013, 2013, 173783. [CrossRef] [PubMed]
36. Morris, BJ Renin, gen, microRNA và cơ chế thận liên quan đến tăng huyết áp. Tăng huyết áp 2015, 65, 956–962. [Tham khảo chéo]
37. Sequeira-Lopez, ML; Thời tiết, ET; Borges, GR; Monteagudo, MC; Pentz, ES; Harfe, BD; Cartero, O.; Sigmund, đĩa CD; Gomez, RA Công cụ xử lý enzyme xử lý microRNA duy trì các tế bào cạnh cầu thận. Mứt. Sóc. Nephrol. 2010, 21, 460–467. [Tham khảo chéo]
38. Hoàng, W.; Lưu, H.; Vương, T.; Trương, T.; Quảng, J.; Luo, Y.; Chung, SS; Nguyên, L.; Yang, JY Các microRNA đáp ứng với Tonicity góp phần tạo ra tối đa yếu tố phiên mã điều hòa thẩm thấu OREBP để đáp ứng với tính ưu trương của NaCl cao. Axit nucleic Res. 2011, 39, 475–485. [Tham khảo chéo]
39. Mladinov, D.; Lưu, Y.; Mattson, ĐL; Liang, M. MicroRNA góp phần duy trì các đặc điểm sinh lý cụ thể của loại tế bào: MiR-192 nhắm mục tiêu Na cộng /K cộng -ATPase 1. Axit nucleic Res. 2013, 41, 1273–1283. [CrossRef] [PubMed]
40. Tapia-Castillo, A.; Guanzon, D.; cọ, C.; Lài, A.; Barros, E.; Allende, F.; Vecchiola, A.; Fardella, CE; Salomón, C.; Carvajal, CA Điều chỉnh giảm miR-192-5p và miR-204-5p ngoại nhiễm sắc thể ở những đối tượng có dư thừa mineralocorticoid rõ ràng không cổ điển. J. Dịch. y tế. 2019, 17, 392. [CrossRef]
41. Bozić, M.; Nguyên nhân, M.; Rodrigues-Diez, RR; Pedraza, N.; Ruiz-Ortega, M.; Garí, E.; Gallel, P.; Panades, MJ; Martinez, A.; Fernández, E.; et al. Vai trò bảo vệ của alpha-synuclein ống thận gần trong cơ chế bệnh sinh của xơ hóa thận. tự nhiên cộng đồng. 2020, 11, 1943. [CrossRef]
42. Kosanović, M.; Llorente, A.; Glamoˇclija, S.; Valdivielso, JM; Bozic, M. Các túi ngoại bào và xơ hóa thận: Một cuộc phiêu lưu hướng tới một phương pháp trị liệu mới. quốc tế J. Mol. Khoa học. 2021, 22, 3887. [CrossRef]
43. Vương, B.; Komers, R.; Carew, R.; Winbanks, CE; Từ, B.; Herman-Edelstein, M.; Ko, P.; Thomas, M.; Jandeleit-Dahm, K.; Gregorovic, P.; et al. Ức chế biểu hiện microRNA-29 bằng TGF- 1 thúc đẩy biểu hiện collagen và xơ hóa thận. Mứt. Sóc. Nephrol. 2012, 23, 252–265. [CrossRef] [PubMed]
44. Châu, BN; Xin, C.; Hartner, J.; Ren, S.; Castano, AP; Linn, G.; Lý, J.; Trần, PT; Kaimal, V.; Hoàng, X.; et al. MicroRNA-21 thúc đẩy quá trình xơ hóa thận bằng cách làm im lặng các quá trình trao đổi chất. Khoa học. Bản dịch. y tế. 2012, 4, 121ra18. [CrossRef] [PubMed]
45. Chung, AC; Lan, HY MicroRNA trong xơ hóa thận. Đằng trước. vật lý. 2015, 6, 50. [CrossRef]
46. Bozić, M.; de Rooij, J.; Parisi, E.; Ortega, ÔNG; Fernandez, E.; Valdivielso, tín hiệu JM Glutamatergic duy trì kiểu hình biểu mô của tế bào ống lượn gần. Mứt. Sóc. Nephrol. 2011, 22, 1099–1111. [Tham khảo chéo]
47. Bozić, M.; Valdivielso, JM Tín hiệu canxi trong các tế bào ống thận. quảng cáo hết hạn y tế. sinh học. 2012, 740, 933–944. [CrossRef]\
48. Katô, M.; Trương, J.; Vương, M.; Lanting, L.; Nguyên, H.; Rossi, JJ; Natarajan, R. MicroRNA-192 ở cầu thận tiểu đường và chức năng của nó trong biểu hiện collagen do TGF-beta gây ra thông qua ức chế các chất ức chế E-box. Proc. tự nhiên. học viện. Khoa học. Hoa Kỳ 2007, 104, 3432–3437. [Tham khảo chéo]
49. Krupa, A.; Jenkins, R.; Luo, ĐD; Lewis, A.; Phillips, A.; Fraser, D. Mất MicroRNA-192 thúc đẩy quá trình tạo sợi trong bệnh thận do tiểu đường. Mứt. Sóc. Nephrol. 2010, 21, 438–447. [CrossRef] [PubMed]
50. Vương, B.; Ko, P.; Winbanks, C.; Coughlan, MT; McClelland, A.; Watson, A.; Jandeleit-Dahm, K.; Bỏng, WC; Thomas, MC; Hợp tác xã, TÔI; et al. miR-200a Ngăn chặn quá trình xơ hóa thận thông qua việc ức chế biểu hiện TGF- 2. Bệnh tiểu đường 2011, 60, 280–287. [Tham khảo chéo]
51. Caporali, A.; Meloni, M.; Völlenkle, C.; Bonci, D.; Sala-Newby, GB; Addis, R.; Spinetti, G.; Losa, S.; Masson, R.; Thợ làm bánh, AH; et al. Việc hủy bỏ quy định của microRNA-503 góp phần làm suy giảm chức năng nội mô do đái tháo đường và sự hình thành mạch máu sau khi thiếu máu cục bộ chi. Lưu hành 2011, 123, 282–291. [CrossRef] [PubMed]
52. Zha, F.; Bái, L.; Đường, B.; Lý, J.; Vương, Y.; Trịnh, P.; Ji, T.; Bai, S. MicroRNA-503 góp phần gây tổn thương tế bào mỡ thông qua việc nhắm mục tiêu E2F3 trong bệnh thận do tiểu đường. J. Tế bào. hóa sinh. 2019, 120, 12574–12581. [Tham khảo chéo]
53. Gholaminejad, A.; Abdul Tehrani, H.; Gholami Fesharaki, M. Xác định các dấu ấn sinh học microRNA ứng cử viên trong bệnh thận đái tháo đường: Một phân tích tổng hợp các nghiên cứu hồ sơ. J. Nephrol. 2018, 31, 813–831. [CrossRef] [PubMed]
54. Zampetaki, A.; Kiechl, S.; Drozdov, tôi.; Willeit, P.; Mayr, U.; Prokopi, M.; Mayr, A.; Weger, S.; Oberhollenzer, F.; Bonora, E.; et al. Hồ sơ microRNA huyết tương cho thấy sự mất mát của miR-126 nội mô và các microRNA khác trong bệnh tiểu đường loại 2. Vòng tròn. độ phân giải 2010, 107, 810–817. [CrossRef] [PubMed]
55. Lv, C.; Chu, YH; Ngô, C.; Thiệu, Y.; Lu, CL; Wang, QY Những thay đổi về nồng độ miR-130b trong huyết thanh người và mối tương quan với mức độ nghiêm trọng của bệnh thận do tiểu đường. Bệnh tiểu đường Metab. độ phân giải Rev. 2015, 31, 717–724. [Tham khảo chéo]
56. Vương, G.; Yên, Y.; Xu, N.; Huệ, Y.; Yin, D. Tái điều chỉnh microRNA-424 làm giảm bệnh thận do tiểu đường bằng cách nhắm mục tiêu Rictor thông qua tín hiệu mTOR Complex2/Protein Kinase B. J. Tế bào. vật lý. 2019, 234, 11646–11653. [CrossRef] [PubMed]
57. Lee, HW; Khan, SQ; Khaliqdina, S.; Altintas, MM; Grahammer, F.; Triệu, JL; Koh, KH; Tardi, NJ; Faridi, MH; Geraghty, T.; et al. Sự vắng mặt của miR-146a trong Podocytes làm tăng nguy cơ mắc bệnh cầu thận tiểu đường thông qua việc điều chỉnh tăng ErbB4 và Notch-1. J. Sinh học. hóa học. 2017, 292, 732–747. [Tham khảo chéo]
58. Vương, Q.; Vương, Y.; Minto, AW; Vương, J.; Shi, Q.; Lý, X.; Quigg, RJ MicroRNA-377 được điều chỉnh tăng và có thể dẫn đến tăng sản xuất fibronectin trong bệnh thận do tiểu đường. FASEB J. 2008, 22, 4126–4135. [Tham khảo chéo]
59. Jaswani, P.; Prakash, S.; Dhar, A.; Sharma, R.K; Prasad, N.; Agrawal, S. MicroRNAs tham gia vào sinh lý bệnh thận: Nhìn toàn cảnh. Ấn Độ J. Nephrol. 2017, 27, 337–341. [Tham khảo chéo]
60. Ramanathan, K.; Padmanabhan, G. miRNA như một dấu ấn sinh học tiềm ẩn của bệnh thận: Một đánh giá. Hóa sinh tế bào. chức năng. 2020, 38, 990–1005. [Tham khảo chéo]
61. Ejerblad, E.; Ford, CM; Lindblad, P.; Fryzek, J.; McLaughlin, JK; Nyrén, O. Béo phì và nguy cơ suy thận mãn tính. Mứt. Sóc. Nephrol. 2006, 17, 1695–1702. [Tham khảo chéo]
62. Từ, CY; McCulloch, CE; Irbarren, C.; Darbinian, J.; Go, AS Chỉ số khối cơ thể và nguy cơ mắc bệnh thận giai đoạn cuối. Ann. thực tập sinh. y tế. 2006, 144, 21–28. [CrossRef] 63. Foster, MC; Hwang, SJ; Khuân vác, SA; Massaro, JM; Hoffmann, U.; Fox, CS Thận nhiễm mỡ, tăng huyết áp và bệnh thận mãn tính: Nghiên cứu Tim mạch Framingham. Tăng huyết áp 2011, 58, 784–790. [CrossRef] [PubMed]
64. Deji, N.; Kume, S.; Araki, S.; Soumura, M.; Sugimoto, T.; Isshiki, K.; Chin-Kanasaki, M.; Sakaguchi, M.; Koya, D.; Haneda, M.; et al. Những thay đổi về cấu trúc và chức năng ở thận của những con chuột béo phì do chế độ ăn nhiều chất béo. Là. J. Physiol.-Ren. vật lý. 2009, 296, F118–F126. [CrossRef] [PubMed]
65. Stemmer, K.; Pérez-Tilve, D.; Ananthakrishnan, G.; Bort, A.; Seeley, RJ; Tschöp, MH; Ăn kiêng, DR; Pfluger, PT Béo phì do chế độ ăn nhiều chất béo gây ra một môi trường vi mô gây viêm và thúc đẩy khối u ở thận chuột. Dis. Người mẫu. Máy móc. 2012, 5, 627–635. [CrossRef] [PubMed]
66. Coimbra, TM; Janssen, U.; Gröne, HJ; Ostendorf, T.; Kunter, U.; Schmidt, H.; Brabant, G.; Floege, J. Các sự kiện ban đầu dẫn đến tổn thương thận ở chuột Zucker (béo) béo phì mắc bệnh tiểu đường loại II. Thận Int. 2000, 57, 167–182. [Tham khảo chéo]
67. Vịnh, HE; Toth, PP; Kris-Etherton, Thủ tướng; Abate, N.; Aronne, LJ; Nâu, WV; Gonzalez-Campoy, JM; Jones, SR; Kumar, R.; Lò rèn, R.; et al. Béo phì, mỡ và rối loạn lipid máu: Tuyên bố đồng thuận từ Hiệp hội Lipid Quốc gia. J. Lâm sàng. mỡ máu. 2013, 7, 304–383. [Tham khảo chéo]
68. Izquierdo-Lahuerta, A.; Martínez-García, C.; Medina-Gómez, G. Nhiễm độc mỡ như một yếu tố kích hoạt bệnh thận. J. Nephrol. 2016, 29, 603–610. [Tham khảo chéo]
69. Tiwari, S.; Ndisang, JF Vai trò của béo phì trong bệnh cơ tim và bệnh thận. Curr. dược phẩm. Des. 2014, 20, 1409–1417. [Tham khảo chéo]
70. Lý, Z.; Lý, J.; Miêu, X.; Cui, W.; Miêu, L.; Cai, L. Một bài đánh giá nhỏ: Vai trò của tín hiệu protein kinase (AMPK) được kích hoạt bằng AMP trong tổn thương thận liên quan đến béo phì. Khoa học đời sống 2021, 265, 118828. [CrossRef]
71. Kovesdy, CP; Xa hơn, SL; Zoccali, C.; Ủy ban, WKDS Béo phì và Bệnh thận: Hậu quả tiềm ẩn của Dịch bệnh. Có thể. J. Sức khỏe thận Dis. 2017, 4, 2054358117698669. [CrossRef] [PubMed]
72. Moorhead, JF; Chân, MK; El-Nahas, M.; Varghese, Z. Nhiễm độc thận do lipid trong bệnh cầu thận và ống kẽ thận tiến triển mãn tính. Lancet 1982, 2, 1309–1311. [Tham khảo chéo]
73. Bobulescu, IA Chuyển hóa lipid thận và nhiễm độc mỡ. Curr. ý kiến. Nephrol. tăng huyết áp. 2010, 19, 393–402. [CrossRef] [PubMed]
74. Weinberg, JM Nhiễm độc mỡ. Thận Int. 2006, 70, 1560–1566. [Tham khảo chéo]
75. Schaffer, JE Nhiễm độc mỡ: Khi các mô ăn quá nhiều. Curr. ý kiến. mỡ máu. 2003, 14, 281–287. [CrossRef] [PubMed]76. Pommer, W. Dự phòng thận: Vai trò của béo phì trong các giai đoạn khác nhau của bệnh thận mãn tính. Thận Dis. 2018, 4, 199–204. [Tham khảo chéo]
77. Declèves, AE; Mathew, AV; Cunard, R.; Sharma, K. AMPK làm trung gian cho sự khởi đầu của bệnh thận do chế độ ăn nhiều chất béo gây ra. Mứt. Sóc. Nephrol. 2011, 22, 1846–1855. [Tham khảo chéo]
78. Udi, S.; Hinden, L.; Earley, B.; Drori, A.; Reuveni, N.; Hadar, R.; Cinar, R.; Nemirovski, A.; Tam, J. Cannabinoid hình ống gần-1 Receptor điều chỉnh CKD do béo phì. Mứt. Sóc. Nephrol. 2017, 28, 3518–3532. [Tham khảo chéo]
79. Bấc, ĐN; Nguyên, TT; Breaux, C.; Kruger, C.; Stadler, K. Bệnh béo phì và bệnh thận do chế độ ăn kiêng - Tìm kiếm một mô hình chuột nhạy cảm. Biochimie 2016, 124, 65–73. [Tham khảo chéo]
80. Giang, T.; Vương, Z.; Giám đốc, G.; Moskowitz, S.; Liebman, Đông Nam; Rogers, T.; Lucia, MS; Lý, J.; Levi, M. Bệnh béo phì do chế độ ăn kiêng ở chuột C57BL/6J gây ra sự tích tụ lipid ở thận và xơ hóa cầu thận tăng lên thông qua con đường phụ thuộc vào protein-1c liên kết với yếu tố điều hòa sterol. J. Sinh học. hóa học. 2005, 280, 32317–32325. [Tham khảo chéo]
81. Kume, S.; Uzu, T.; Araki, S.; Sugimoto, T.; Isshiki, K.; Chin-Kanasaki, M.; Sakaguchi, M.; Kubota, N.; Terauchi, Y.; Kadowaki, T.; et al. Vai trò của quá trình chuyển hóa lipid ở thận bị thay đổi trong sự phát triển của tổn thương thận do chế độ ăn nhiều chất béo gây ra. Mứt. Sóc. Nephrol. 2007, 18, 2715–2723. [Tham khảo chéo]
82. Vương, XX; Giang, T.; Thần, Y.; Adorini, L.; Pruzanski, M.; González, FJ; Scherzer, P.; Lewis, L.; Miyazaki-Anzai, S.; Levi, M. Thụ thể farnesoid X điều chỉnh quá trình chuyển hóa lipid ở thận và viêm thận do chế độ ăn kiêng, xơ hóa và protein niệu. Là. J. Physiol.-Ren. vật lý. 2009, 297, F1587–F1596. [Tham khảo chéo]
83. Vương, Z.; Giang, T.; Lý, J.; Giám đốc, G.; McManaman, JL; Lucia, S.; Chua, S.; Levi, M. Điều chỉnh chuyển hóa lipid ở thận, tích lũy lipid và xơ hóa cầu thận ở chuột FVBdb/db mắc bệnh tiểu đường loại 2. Bệnh tiểu đường 2005, 54, 2328–2335. [CrossRef] [PubMed]
84. Công viên, CW; kim, CTNH; Ko, SH; Lim, JH; Ryu, GR; chung, CTNH; Hàn, SW; Tín, SJ; Bằng, BK; Breyer, MD; et al. Điều trị lâu dài peptide giống glucagon-1 exendin tương tự-4 giúp cải thiện bệnh thận do tiểu đường bằng cách cải thiện các bất thường về chuyển hóa ở chuột db/db. Mứt. Sóc. Nephrol. 2007, 18, 1227–1238. [CrossRef] [PubMed]
85. Dominguez, J.; Ngô, P.; Người đóng gói, CS; Temm, C.; Kelly, KJ Các kiểu hình gây độc và viêm ở chuột mắc hội chứng chuyển hóa không kiểm soát được và bệnh thận. Là. J. Physiol.-Ren. vật lý. 2007, 293, F670–F679. [CrossRef] [PubMed]
86. CN, L.; Halaihel, N.; Trương, W.; Rogers, T.; Levi, M. Vai trò của protein liên kết với yếu tố điều hòa sterol 1 trong quá trình điều hòa chuyển hóa lipid ở thận và xơ hóa cầu thận ở bệnh đái tháo đường. J. Sinh học. hóa học. 2002, 277, 18919–18927. [CrossRef] [PubMed]
87. Ohtsubo, T.; Matsumura, K.; Sakagami, K.; Fujii, K.; Tsuruya, K.; Noguchi, H.; Rovira, II; Finkel, T.; Sự suy giảm Iida, M. Xanthine oxidoreductase gây ra xơ hóa kẽ thận thông qua sự tích tụ lipid và purine bất thường trong ống thận. Tăng huyết áp 2009, 54, 868–876. [Tham khảo chéo]
88. Udi, S.; Hinden, L.; Ahmad, M.; Drori, A.; Iyer, ÔNG; Cinar, R.; Herman-Edelstein, M.; Tam, J. Ức chế kép cannabinoid CB. anh J. Dược phẩm. 2020, 177, 110–127. [Tham khảo chéo]
89. Bobulescu, IA; Dubree, M.; Trương, J.; McLeroy, P.; Moe, OW Ảnh hưởng của sự tích lũy lipid ở thận đối với sự trao đổi Na cộng với / H cộng với ống lượn gần và bài tiết amoni. Là. J. Physiol.-Ren. vật lý. 2008, 294, F1315–F1322. [Tham khảo chéo]
90. Magil, AB; Cohen, AH Monocytes và xơ hóa cầu thận khu trú. phòng thí nghiệm. Đầu tư. 1989, 61, 404–409.
91. Druilhet, RE; Lật úp, ML; Kirkendall, WM Cortical và lipid tủy của thận người bình thường và thận bị xơ cứng. quốc tế J. Hóa sinh. 1978, 9, 729–734. [Tham khảo chéo]
92. Jennette, JC; Falk, RJ Bệnh cầu thận thay đổi tối thiểu ở người trưởng thành bị suy thận cấp. Là. J. Thận Dis. 1990, 16, 432–437. [Tham khảo chéo]
93. Gubler, MC; Lenoir, G.; Grünfeld, JP; Ulmann, A.; Droz, D.; Habib, R. Thay đổi thận sớm ở bệnh nhân xuất huyết và dị hợp tử mắc bệnh Fabry. Thận Int. 1978, 13, 223–235. [CrossRef] [PubMed]
94. Sam, R.; Ngô, H.; Yue, L.; Mazzone, T.; Schwartz, MM; Arruda, JA; Dunea, G.; Singh, AK Bệnh cầu thận Lipoprotein: Một đột biến apolipoprotein E mới với sự gắn kết cầu thận được tăng cường. Là. J. Thận Dis. 2006, 47, 539–548. [CrossRef] [PubMed]
95. Trịnh, C.; Trương, J.; Chen, X.; Đinh, X.; Bạn, X.; Quạt, L.; Trần, C.; Zhou, Y. MicroRNA-155 làm trung gian cho tình trạng viêm và rối loạn chức năng thận do béo phì. Viêm 2019, 42, 994–1003. [CrossRef] [PubMed]
96. Hoàng, Y.; Lưu, Y.; Lý, L.; Su, B.; Dương, L.; Người hâm mộ, W.; Âm, Q.; Chen, L.; Cui, T.; Trương, J.; et al. Sự tham gia của miR-155 và miR-146a liên quan đến viêm trong bệnh thận đái tháo đường: Hệ lụy đối với tổn thương nội mô cầu thận. BMC Nephrol. 2014, 15, 142. [Tham khảo chéo]
97. Mặt trời, D.; Chen, J.; Ngô, W.; Đường, J.; Luo, L.; Trương, K.; Kim, L.; Lin, S.; Cao, Y.; Yên, X.; et al. MiR-802 gây ra bệnh thận bằng cách ức chế các yếu tố ức chế NF-κB ở chuột và người béo phì. J. Tế bào. mol. y tế. 2019, 23, 2863–2871. [Tham khảo chéo]
98. Mặt trời, Y.; Bành, R.; Bành, H.; Lưu, H.; Văn, L.; Ngô, T.; Yi, H.; Lý, A.; Zhang, Z. miR-451 ngăn chặn sự biểu hiện của các phân tử tiền viêm qua trung gian NF-kappaB thông qua việc ức chế LMP7 trong bệnh thận do tiểu đường. mol. Tế bào. nội tiết. 2016, 433, 75–86. [Tham khảo chéo]
99. Fluitt, MB; Shivapurkar, N.; Kumari, M.; Singh, S.; Lý, L.; Tiwari, S.; Ecelbarger, CM Ức chế miR-451 có hệ thống làm tăng tín hiệu xơ hóa và giảm phản ứng tự thực để làm trầm trọng thêm tổn thương thận ở chuột Tallyho/Jng. Là. J. Physiol.-Ren. vật lý. 2020, 319, F476–F486. [Tham khảo chéo]
100. Xu, XH; Đinh, DF; Yong, HJ; Đồng, CL; Bạn N.; Ye, XL; Chảo, ML; Mã, JH; Bạn, Q.; Lu, YB Resveratrol phiên mã điều chỉnh biểu hiện miRNA-18a-5p cải thiện bệnh thận do tiểu đường thông qua việc tăng khả năng tự thực. Ơ. Linh mục Med. dược phẩm. Khoa học. 2017, 21, 4952–4965.
101. Pereira, BMV; Thiême, K.; de Araujo, L.; Rodrigues, AC Thiếu adiponectin ở chuột làm tăng tốc độ tiến triển của bệnh thận mãn tính do chế độ ăn nhiều chất béo gây ra. Khoa học đời sống 2020, 257, 118061. [CrossRef]
102. Morrison, MC; Yakala, GK; Lương, W.; Wielinga, PY; Salic, K.; van Koppen, A.; Tomar, T.; Kleemann, R.; Heeringa, P.; Kooistra, T. Tác dụng bảo vệ của rosiglitazone đối với chức năng thận ở chuột chuyển gen CRP người bị thách thức về chất béo cao: Vai trò có thể có của adiponectin và miR-21? Khoa học. Dân biểu 2017, 7, 2915. [CrossRef]
103. Zhao, P.; Lý, X.; Lý, Y.; Chu, J.; Mặt trời, Y.; Hong, J. Cơ chế của miR-365 trong việc điều chỉnh trục tín hiệu BDNF-TrkB của HFD/STZ gây ra bệnh xơ hóa thận do bệnh tiểu đường và chức năng thận. quốc tế Urol. Nephrol. 2021, 53, 2177–2187. [Tham khảo chéo]
104. Xue, M.; Lý, Y.; Hu, F.; Gia, YJ; Trịnh, ZJ; Vương, L.; Xue, YM Đường huyết cao điều chỉnh microRNA-34a-5p để làm trầm trọng thêm tình trạng xơ hóa bằng cách nhắm mục tiêu SIRT1 trong các tế bào HK-2. hóa sinh. lý sinh học. độ phân giải cộng đồng. 2018, 498, 38–44. [Tham khảo chéo]
105. Lý, S.; Giả, Y.; Xue, M.; Hu, F.; Trịnh, Z.; Trương, S.; Ren, S.; Dương, Y.; Sĩ, Z.; Vương, L.; et al. Ức chế Rab27a trong các tế bào biểu mô ống thận làm giảm tình trạng viêm của bệnh thận do tiểu đường thông qua con đường miR-26a-5p/CHAC1/NF-kB. Khoa học đời sống 2020, 261, 118347. [CrossRef]
106. Xie, Y.; Giả, Y.; Cuihua, X.; Hu, F.; Xue, M.; Xue, Y. Hồ sơ microRNA Exosomal tiết niệu trong bệnh thận tiểu đường loại 2 mới chớm. J. Bệnh tiểu đường Res. 2017, 2017, 6978984. [CrossRef]
107. Sơn, Q.; Trịnh, G.; Chu, A.; Cao, L.; Lu, J.; Ngô, D.; Trương, Z.; Quạt, S.; Mặt trời, C.; Hu, B.; et al. Biến đổi biểu sinh của miR-10a điều chỉnh tổn thương thận bằng cách nhắm mục tiêu CREB1 trong bệnh đái tháo đường týp 2. chất độc. ứng dụng dược phẩm. 2016, 306, 134–143. [CrossRef] [PubMed]
108. Matboli, M.; Eissa, S.; Ibrahim, D.; Hegazy, MGA; Imam, SS; Habib, EK Caffeic Acid làm suy giảm bệnh thận do tiểu đường thông qua điều chế Autophagy trong chế độ ăn nhiều chất béo/Chuột mắc bệnh tiểu đường do Streptozotocin gây ra. Khoa học. Dân biểu 2017, 7, 2263. [CrossRef]
109. Yan, Z.; Zang, B.; Công, X.; Ren, J.; Wang, R. MiR-214-3p làm trầm trọng thêm tổn thương thận và tình trạng viêm do viêm tụy tăng lipid máu phức tạp với tổn thương thận cấp tính. Khoa học đời sống 2020, 241, 117118. [CrossRef] [PubMed]
110. Sakuma, H.; Hagiwara, S.; Kantharidis, P.; Gohda, T.; Suzuki, Y. Nhắm mục tiêu tiềm năng của xơ hóa thận trong bệnh thận do tiểu đường bằng cách sử dụng MicroRNA. Đằng trước. dược phẩm. 2020, 11, 587689. [CrossRef] [PubMed]
111. Dương, W.; Luo, Y.; Dương, S.; Zeng, M.; Trương, S.; Lưu, J.; Hân, Y.; Lưu, Y.; Chu, X.; Ngô, H.; et al. Tích tụ lipid lạc chỗ: Vai trò tiềm ẩn trong tổn thương và viêm ống thận ở bệnh thận do tiểu đường. lâm sàng. Khoa học. 2018, 132, 2407–2422. [Tham khảo chéo]
112. Gomez, IG; Nakagawa, N.; Duffield, JS MicroRNA là mục tiêu điều trị mới để điều trị chấn thương và xơ hóa thận. Là. J. Physiol.-Ren. vật lý. 2016, 310, F931–F944. [Tham khảo chéo]
113. Lý, Y.; Mạnh, Y.; Chu, X.; Saadiq, IM; Jordan, Kuala Lumpur; Eirin, A.; Lerman, LO Hội chứng chuyển hóa làm tăng các micro-RNA liên quan đến lão hóa trong các túi ngoại bào có nguồn gốc từ tế bào gốc/mô đệm trung mô của lợn và người. Tế bào cộng đồng. Tín hiệu. 2020, 18, 124. [CrossRef]
114. Lv, W.; Quạt, F.; Vương, Y.; Gonzalez-Fernandez, E.; Vương, C.; Dương, L.; Rượu, GW; Roman, RJ Tiềm năng điều trị của microRNA để điều trị xơ hóa thận và CKD. vật lý. bộ gen. 2018, 50, 20–34. [Tham khảo chéo]
115. Elmén, J.; Lindow, M.; Schutz, S.; Lawrence, M.; Petri, A.; Obad, S.; Lindholm, M.; Hedtjärn, M.; Hansen, HF; Berger, U.; et al. Làm im lặng microRNA qua trung gian LNA ở các loài linh trưởng không phải người. Thiên nhiên 2008, 452, 896–899. [CrossRef] [PubMed]
116. Krützfeldt, J.; Rajewsky, N.; Braich, R.; Rajeev, KG; Tuschl, T.; Manoharan, M.; Stoffel, M. Im lặng microRNA in vivo với 'antagomirs'. Thiên nhiên 2005, 438, 685–689. [CrossRef] [PubMed]
117. Ebert, MS; Neilson, JR; Bọt biển MicroRNA sắc nét, PA: Chất ức chế cạnh tranh của RNA nhỏ trong tế bào động vật có vú. tự nhiên Phương pháp 2007, 4, 721–726. [CrossRef] [PubMed]
118. Davis, S.; Lolo, B.; Freier, S.; Esau, C. Cải thiện nhắm mục tiêu của miRNA với oligonucleotide antisense. Axit nucleic Res. 2006, 34, 2294–2304. [CrossRef] [PubMed]
119. van Rooij, E.; Purcell, AL; Levin, AA Phát triển phương pháp trị liệu microRNA. Vòng tròn. độ phân giải 2012, 110, 496–507. [Tham khảo chéo
120. Ê-sau, C.; Davis, S.; Murray, SF; Yu, XX; Pandey, SK; lê, M.; Watts, L.; Booten, SL; Graham, M.; McKay, R.; et al. miR-122 quy định về chuyển hóa lipid được tiết lộ bằng cách nhắm mục tiêu antisense in vivo. Metab tế bào. 2006, 3, 87–98. [Tham khảo chéo]
121. Elmén, J.; Lindow, M.; Silahtaroglu, A.; Bak, M.; Christensen, M.; Lind-Thomsen, A.; Hedtjärn, M.; Hansen, JB; Hansen, HF; Straarup, EM; et al. Sự đối kháng của microRNA-122 ở chuột bằng LNA-antimiR được quản lý một cách có hệ thống dẫn đến việc điều chỉnh tăng một tập hợp lớn các mRNA mục tiêu được dự đoán trong gan. Axit nucleic Res. 2008, 36, 1153–1162. [CrossRef] [PubMed]
122. Carè, A.; Catalucci, D.; Felicetti, F.; Bonci, D.; Addario, A.; Gallo, P.; Bằng, ML; Segnalini, P.; Chàng trai.; Dalton, ND; et al. MicroRNA-133 kiểm soát chứng phì đại tim. tự nhiên y tế. 2007, 13, 613–618. [CrossRef] [PubMed]
123. Trionfini, P.; Benigni, A.; Remuzzi, G. MicroRNA trong sinh lý và bệnh thận. tự nhiên Mục sư Nephrol. 2015, 11, 23–33. [CrossRef] [PubMed]
For more information:1950477648@gmail.com