Vai trò của NLR trong việc điều chỉnh tín hiệu interferon loại I, khả năng bảo vệ vật chủ và khả năng chống viêm Phần 1
Jun 26, 2023
Trừu tượng:
Tín hiệu interferon loại I góp phần vào sự phát triển của các phản ứng miễn dịch bẩm sinh và thích ứng đối với virus, nấm hoặc vi khuẩn. Tuy nhiên, biên độ và thời gian của phản ứng interferon là vô cùng quan trọng để ngăn ngừa kết quả không tốt hoặc tổn thương mô. Trong khi một số tác nhân gây bệnh đã phát triển các chiến lược để làm xáo trộn chất lượng của tín hiệu interferon, thì ngày càng có nhiều bằng chứng cho thấy con đường này có thể được điều chỉnh bởi một số thành viên của họ thụ thể giống như Nod (NLR), mặc dù cơ chế chính xác của hầu hết các tác nhân này vẫn còn khó nắm bắt.
NLR bao gồm một họ khoảng 20 protein ở động vật có vú, có khả năng cảm nhận các sản phẩm của vi sinh vật cũng như các tín hiệu nội sinh liên quan đến tổn thương mô. Ở đây chúng tôi cung cấp một cái nhìn tổng quan về sự hiểu biết hiện tại của chúng tôi về chức năng của các NLR đó trong phản ứng interferon loại I, tập trung vào nhiễm virus. Chúng tôi thảo luận về cách quy định interferon loại I qua trung gian NLR có thể ảnh hưởng đến sự phát triển của khả năng tự miễn dịch và phản ứng miễn dịch đối với nhiễm trùng.
Interferon loại I là một chất điều hòa miễn dịch quan trọng, đóng vai trò quan trọng trong việc duy trì sức khỏe và chức năng bình thường của hệ thống miễn dịch. Trong quá trình đáp ứng miễn dịch, interferon loại I có thể kích thích loại bỏ các yếu tố ngoại sinh như khối u ác tính và mầm bệnh truyền nhiễm, đồng thời nâng cao khả năng phòng vệ miễn dịch của cơ thể. Đồng thời, interferon loại I cũng có thể gây ra quá trình chết theo chương trình của tế bào khối u và ức chế sự tăng sinh của tế bào khối u, vì vậy nó có giá trị ứng dụng lâm sàng quan trọng trong điều trị khối u.
Ngoài ra, interferon loại I cũng có thể kích thích các chức năng của các tế bào miễn dịch khác nhau, chẳng hạn như tăng cường hoạt động tiêu diệt của đại thực bào và tế bào NK, thúc đẩy sự biệt hóa, tăng sinh và kích hoạt tế bào B và tế bào T, đồng thời điều chỉnh sự tương tác giữa các tế bào miễn dịch , từ đó điều phối phản ứng của toàn bộ hệ thống miễn dịch. Do đó, interferon loại I đóng vai trò quan trọng trong việc duy trì sức khỏe của cơ thể, ngăn ngừa và điều trị các bệnh liên quan đến miễn dịch.
Nói tóm lại, interferon loại I có liên quan chặt chẽ đến khả năng miễn dịch và đóng vai trò thúc đẩy khả năng phòng vệ miễn dịch của cơ thể và điều trị các bệnh liên quan đến miễn dịch bằng cách điều chỉnh chức năng của các tế bào miễn dịch và sự tương tác giữa các tế bào miễn dịch. Từ quan điểm này, chúng ta cần cải thiện khả năng miễn dịch. Cistanche có thể tăng cường khả năng miễn dịch. Cistanche rất giàu các chất chống oxy hóa khác nhau, chẳng hạn như vitamin C, vitamin C, carotenoid, v.v. Những thành phần này có thể loại bỏ các gốc tự do, giảm stress oxy hóa và cải thiện khả năng miễn dịch. sức đề kháng của hệ thống.

Nhấp vào lợi ích cistanche tubulosa
từ khóa:
các thụ thể giống như NOD; giao thoa; miễn dịch bẩm sinh; điều hòa miễn dịch; interferon loại I; kháng vi-rút; phát tín hiệu.
1. Giao thoa loại I
Interferon (IFN) là một nhóm protein không đồng nhất có thể được phân loại thành ba họ (Loại I, II và III) dựa trên các chức năng và đặc điểm riêng biệt [1]. Họ IFN loại I của con người bao gồm 5 nhóm nhỏ: IFN- , - , -κ, -ε và -ω [2–4], trong khi nhóm IFN loại II chỉ chứa IFN- [3]. IFN loại III bao gồm bốn protein IFN-λ [5,6].
Đánh giá này sẽ tập trung vào quy định của IFN loại I bởi các thành viên của gia đình thụ thể giống Nod (NLR) và trong lớp này về các thành viên nổi bật nhất và được nghiên cứu tốt nhất của IFN- và IFN-.
Tất cả các IFN loại I liên kết với một thụ thể dị thể chung bao gồm các tiểu đơn vị IFN-/R1 (IFNAR1) và IFN-/R2 (IFNAR2) [7–9], được biểu hiện trên hầu hết các loại tế bào. Sự liên kết của IFN loại I với thụ thể của chúng gây ra sự giảm thiểu tiểu đơn vị thụ thể [10], kích hoạt nhanh tiểu đơn vị R2 liên quan đến Janus kinase 1 (JAK1) [11,12] và sau đó tạo ra con đường JAK-STAT [13]. Tyrosine kinase này tự động phosphoryl hóa và thêm vào đó là các gốc phosphoryl hóa đặc hiệu trong các vị trí tương tác của miền nội bào của thụ thể, để lộ bộ chuyển đổi tín hiệu và bộ kích hoạt các túi liên kết phiên mã (STAT) [14].
Sau khi liên kết các protein STAT thông qua miền Src-homology 2 (SH2) của chúng, STAT bị phosphoryl hóa bởi JAK1 đã hoạt hóa, dẫn đến sự phân ly của chúng khỏi thụ thể. IFN- gây ra sự hình thành các dị vòng STAT1/STAT2 [15], có thể liên kết thêm với yếu tố điều hòa interferon 9 (IRF9) và sau đó hình thành yếu tố gen kích thích IFN 3 (ISGF3) [16]. ISGF3 chuyển vị trí vào nhân để liên kết các yếu tố phản ứng được kích thích bằng interferon (ISRE), tạo ra các gen phản ứng kháng vi-rút [15,17,18]. Hơn nữa, STAT1 có thể tạo thành các homodimer hoặc heterodimer với STAT3. STAT1, STAT3, STAT4, STAT5 và STAT6 tạo thành các homodimer.
Quá trình dime hóa xảy ra trước khi chuyển vị trí vào nhân và kích hoạt các gen được điều hòa bởi vị trí kích hoạt giao thoa gamma (GAS) [19–21], gây ra phản ứng tiền viêm (Hình 1).
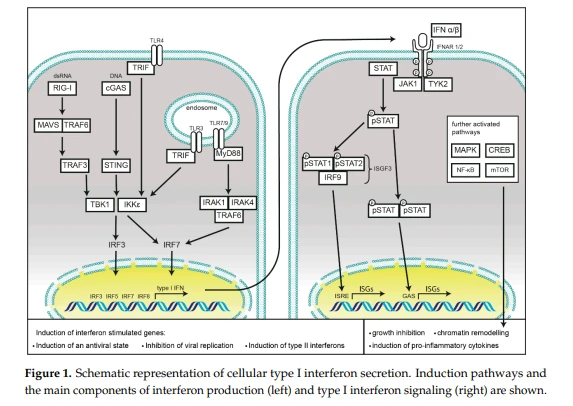
Sự gắn kết của IFN-o với thụ thể của nó cũng dẫn đến quá trình phosphoryl hóa nhanh chóng tiểu đơn vị thụ thểR1 liên kết với tyrosine kinase Tyk2 (22-25), trung gian truyền tín hiệu đến các con đường không phải IFN, điều này dẫn đến việc bắt đầu con đường MAP kinase và kích hoạt của p38 và sự ức chế tăng trưởng sau đó (26), cũng như quá trình tái cấu trúc chất nhiễm sắc khi chuyển vị trí của phần tử Crebinding (CREB)(27). Hơn nữa, Tyk2 kích hoạt phosphoinositide-3-kinase (PI3K), dẫn đến việc kích hoạt mục tiêu động vật có vú của con đường rapamycin (mTOR) và bắt đầu dịch mã mRNA, cũng như kích hoạt chuỗi ánh sáng yếu tố hạt nhân tiền viêm -enhancer' của con đường tế bào B được kích hoạt (NF-kB) (28].
1.1. Phản ứng miễn dịch đối với nhiễm trùng và dung nạp mô bị ảnh hưởng bởi phản ứng interferon Tiype I
Vi-rút tương tác với nhiều loại protein trong tế bào động vật có vú và sự tiến hóa của chúng được thúc đẩy bởi các ràng buộc chống vi-rút và sự thích nghi của tế bào chủ của chúng. Do đó, không có gì đáng ngạc nhiên khi sự đồng tiến hóa của chúng đã dẫn đến các cơ chế điều tiết rất phức tạp về thời gian và biên độ của các phản ứng miễn dịch đối với các thách thức của virus. IFN loại I có vai trò trung tâm trong việc kiểm soát nhiễm vi-rút và cũng tham gia vào việc bảo vệ các mầm bệnh khác. Năm 1957, IFN được phát hiện bởi Alick Isaacs và Lean Lindenmannas, một yếu tố hòa tan trong phần nổi phía trên của màng chorioallantoic, thách thức vi rút cúm bất hoạt do nhiệt, can thiệp vào quá trình lây nhiễm vi rút trong tế bào, do đó có tên là interferon"29. loại I. FN hoạt động theo cả cách autocrine và paracrine và là nguyên tố chính của các tế bào ngoài cuộc cho sự lây nhiễm virus sắp tới của tế bào sau.Khả năng hạn chế sự nhân lên của virus chủ yếu được thúc đẩy bởi vô số gen kích thích interferon (ISG). vai trò trong việc kích hoạt các tế bào có liên quan đến sự phát triển của phản ứng miễn dịch thích ứng.Ở đây, IFN loại I tham gia vào việc kiểm soát sự mở rộng và biệt hóa tế bào và xác định phản ứng của cytokine và chemokine của các tế bào thuộc dòng bạch huyết (30).

IFN loại I có liên quan đến việc tạo ra trạng thái kháng vi-rút tế bào nhanh chóng và hầu hết các tế bào có thể tạo ra chúng để đáp ứng với kích thích thụ thể nhận dạng mẫu (PRR) thích hợp. Chúng chuẩn bị cho các tế bào bị nhiễm bệnh, cũng như các tế bào xung quanh hướng tới trạng thái phòng thủ hoặc chịu đựng [31]. Tầm quan trọng của chúng như là các yếu tố bảo vệ trong quá trình nhiễm vi-rút đã được chứng minh bằng cách cho thấy tính mẫn cảm cao của chuột thiếu thụ thể IFNAR1 (Ifnar1 - / - chuột) đối với vi-rút viêm miệng mụn nước (VSV), vi-rút Semliki Forest, vi-rút đậu mùa (VACV) và viêm màng não tế bào lympho. vi rút (LCMV) [32]. Hơn nữa, những con chuột bị thiếu STAT1 được chứng minh là rất nhạy cảm với vi-rút cúm [33], điều này càng củng cố tầm quan trọng của IFN loại I trong các phản ứng kháng vi-rút. Ở người, một số dạng thiếu hụt STAT1 di truyền có liên quan đến tính nhạy cảm cao đối với vi khuẩn và vi rút nội bào [34], trong khi một số đột biến STAT1 tăng chức năng chịu trách nhiệm cho sự phát triển của bệnh nấm candida niêm mạc mãn tính [35].
Trong các bệnh nhiễm trùng do vi khuẩn, các chức năng của IFN loại I phức tạp hơn, vì chúng có thể ảnh hưởng tích cực hoặc tiêu cực đến khả năng phòng vệ của vật chủ [30]. Điều trị đại thực bào bằng IFN loại I giúp hạn chế tốt hơn sự nhân lên của vi khuẩn trong quá trình lây nhiễm Legionella pneumophilia nội bào hoặc Bacillus anthracis [36–39]. Hơn nữa, IFN loại I xuất hiện để bảo vệ các tế bào khỏi sự xâm nhập của Salmonella enterica subsp. enterica ser. Typhimurium (S. Typhimurium) và Shigella flexneri, khi chuột được điều trị bằng IFN loại I tái tổ hợp cho thấy số lượng vi khuẩn xâm lấn trong tế bào biểu mô giảm và khả năng sống sót được cải thiện [40,41]. IFN loại I góp phần kích hoạt các đại thực bào, liên quan đến việc sản xuất oxit nitric (NO) và TNF [42]. Tuy nhiên, IFN- và - cũng đã được xác định là chất điều chỉnh tiêu cực của nhiều cytokine và chemokine, điều phối các phản ứng miễn dịch đối với nhiễm trùng do vi khuẩn, đặc biệt đối với Listeria monocytogenes [43,44] và S. Typhimurium [44,45] (được đánh giá trong [46]).
Bên cạnh vi khuẩn, việc nhận biết nấm, quan trọng nhất là nhờ thụ thể lectin loại C Dectin-1, mà còn cả axit nucleic của nấm nhờ thụ thể giống Toll 7 (TLR7) và TLR9 gây ra phản ứng interferon loại I mạnh mẽ [47,48 ]. Tuy nhiên, giống như nhiễm trùng do vi khuẩn, interferon loại I cũng có thể hỗ trợ sự sống sót của mầm bệnh [49].
IFN loại I có tầm quan trọng như nhau trong việc điều phối các phản ứng miễn dịch thích ứng với nhiễm trùng bằng cách điều hòa phiên mã của một loạt các gen mục tiêu. Đáng chú ý, IFN loại I tạo ra và hỗ trợ sản xuất IFN loại II, chủ yếu là IFN- trực tiếp trong các tế bào NK [50,51] và hỗ trợ sản xuất IL-12 trong các tế bào đuôi gai (DC) [52]. Chúng có thể tăng cường hơn nữa phản ứng của các tế bào myeloid, tế bào B và tế bào T khi bị nhiễm vi-rút, dẫn đến cải thiện khả năng loại bỏ vi-rút và thiết lập một tiết mục bộ nhớ tế bào T và B thích ứng mạnh mẽ. Trong trình diện kháng nguyên, IFN- tạo ra sự phiên mã của MHC lớp I và lớp II bằng cách tạo ra sự biểu hiện của hai thành viên họ NLR, miền kích hoạt caspase và miền tuyển dụng (CARD) chứa 5 (NLRC5) và chất kích hoạt phiên mã MHC lớp II (CIITA), tương ứng [53,54]. Trong khi đó, người ta thấy rằng biểu hiện của nhiều NLR khác được quy định bởi cả IFN loại I và loại II. Trong phần sau, chúng tôi mô tả chi tiết cách NLR được điều chỉnh bởi IFN loại I và cách chúng điều chỉnh kết quả của các phản hồi IFN loại I. Chúng tôi thảo luận về việc bãi bỏ quy định của NLR có thể dẫn đến tính nhạy cảm với bệnh nhiễm trùng hoặc bệnh tự viêm do hậu quả của việc phát tán mầm bệnh hoặc giảm khả năng chịu đựng của mô đối với tổn thương do căng thẳng
1.2. Cảm ứng phản ứng interferon loại I bằng cảm biến axit nucleic
Công nhận các mẫu phân tử liên quan đến mầm bệnh (PAMPs) bằng PRR được bảo tồn tiến hóa là bước đầu tiên để tạo ra phản ứng miễn dịch bẩm sinh nhanh chóng. Sau khi cảm nhận được các phân tử vô ngã có khả năng gây độc hại, PRR kích hoạt một tập hợp các tầng tín hiệu đã xác định, đạt đến đỉnh điểm trong việc tạo ra trạng thái chịu đựng hoặc phòng thủ trong tế bào chủ. Điều này cho phép sản xuất và giải phóng các cytokine, tín hiệu cho các tế bào lân cận tuyển dụng các tế bào miễn dịch để bắt đầu phản ứng miễn dịch thích ứng cụ thể.
PRR được bản địa hóa trong các ngăn dưới tế bào khác nhau. Các thụ thể giống như thu phí (TLR), lectin loại C và thụ thể xác thối bao phủ bề mặt tế bào, cũng như, trong trường hợp TLR, màng của ngăn nội nhũ. Các thụ thể giống NOD (NLR), thụ thể giống RIG-I (RLR) và men tổng hợp GMP-AMP tuần hoàn (cGAS) theo dõi tế bào chất để phát hiện tổn thương tế bào hoặc sự hiện diện của mầm bệnh xâm lấn. Kích hoạt các thụ thể này dẫn đến cảm ứng hoặc ức chế bài tiết IFN loại I, điều này sẽ được thảo luận trong các chương sau và được tóm tắt trong Hình 1.
Việc phát hiện DNA tế bào chủ yếu được trung gian bởi cGAS được biểu hiện ở khắp mọi nơi và không có protein khối u ác tính 2 (AIM2). Điều này không chỉ bao gồm DNA ngoại lai có nguồn gốc từ mầm bệnh mà còn cả chất nhiễm sắc tế bào do căng thẳng nhiễm độc gen. Mặc dù kích hoạt cGAS tạo ra IFN loại I, nhưng việc phát hiện DNA tế bào bằng AIM2 dẫn đến chết tế bào bằng pyroptotic do kích hoạt caspase-1 và quá trình xử lý cũng như giải phóng IL-1 và IL{{ trưởng thành sau đó 5}} [55].
Liên kết với DNA tế bào làm cho cGAS ở trạng thái hoạt động, dẫn đến sự tổng hợp chất truyền tin thứ hai theo chu kỳ GMP-AMP (cGAMP) với xương sống liên kết hỗn hợp (c[G(20,50 )pA(30,50 )p]) , do đó được cảm nhận bởi protein được gọi là chất kích thích gen interferon (STING) [56–59], nằm ở màng của mạng lưới nội chất [60]. Việc kích hoạt STING dẫn đến việc chuyển vị trí của nó vào mạng Golgi và kích hoạt thành viên gia đình TRAF được liên kết với kinase 1 (TBK1) liên kết với trình kích hoạt NF-κB. Sau khi tự động phosphoryl hóa, TBK1 sau đó kích hoạt IRF3 thông qua liên kết trực tiếp [61].
Điều này cho phép giảm thiểu, chuyển vị trí vào nhân và bắt đầu phiên mã IFN loại I. Kích hoạt IRF3 dẫn đến làn sóng sao chép ban đầu với IFN- và IFN- 4 làm mục tiêu sao chép trung tâm. Quá trình phiên mã của IRF7 cũng được tạo ra để cho phép một vòng phản hồi tích cực dẫn đến một đợt bài tiết IFN loại I thứ hai [62]. STING là chất trung gian thiết yếu của phản ứng này vì sự thiếu hụt của nó sẽ hủy bỏ quá trình kích hoạt IRF3 do cGAS gây ra và cảm ứng IFN [63]. Sự thiếu hụt cGAS trong các đại thực bào có nguồn gốc từ tủy xương chuột (BMDM) gây bất lợi cho việc tạo ra các phản ứng IFN loại I của thuốc kháng vi-rút đối với các vi-rút DNA như vi-rút herpes simplex (HSV) 1, VACV và gammaherpesvirus ở chuột 68, nhưng không ảnh hưởng đến phản ứng đối với virus ARN Sendai virus (SeV) [64,65]. Bên cạnh việc kích hoạt IRF3, STING cũng hoạt động như một bộ kích hoạt NF-κB. Để xem xét toàn diện các chức năng kích hoạt cGAS-STING, người đọc tham khảo [66].
Các nghiên cứu trên tế bào từ chuột cGAS -/− đã chứng minh rằng cGAS là cảm biến DNA chính trong các tế bào trình diện kháng nguyên, chẳng hạn như tế bào đuôi gai plasmacytoid (pDC) và tế bào đuôi gai thông thường (cDC). Sự cạn kiệt của cGAS trong các tế bào đó khiến chúng không phản ứng với quá trình thay đổi DNA và lây nhiễm virus DNA [67]. Phản ứng IFN loại I đối với các axit nucleic này cũng rất cần thiết như một tín hiệu mồi cho chức năng của tổ hợp siêu nhỏ AIM2 do DNA tạo ra [55].
Bên cạnh axit nucleic từ một số virus DNA như cytomegalovirus [68,69], HSV 1 [67], VACV [67] và retrovirus [70], cGAS cũng là cảm biến DNA của vi sinh vật từ vi khuẩn xâm lấn và động vật nguyên sinh như L. monocytogenes [71–73], Chlamydia trachomatis [74], Mycobacterium tuberculosis [75–77], Toxoplasma gondii [78] và Leishmania major [79].

Họ cảm biến RNA tế bào quan trọng nhất là họ thụ thể giống RIG-I (RLR), bao gồm protein gen I cảm ứng axit retinoic (RIG-I), protein liên quan đến biệt hóa khối u ác tính 5 (MDA5) và phòng thí nghiệm. của di truyền học và sinh lý học 2 (LGP2). Những protein này có thể cảm nhận được 5-các di- và tri-photphat nguyên tố của ARN sợi đôi (ds) ngắn, đầu cùn bằng RIG-I hoặc dsRNA dài bằng MDA5 [80]. Cả ba protein đều chứa các miền hộp DExD/H có chức năng ATPase, rất quan trọng để liên kết RNA. RIG-I và MDA5 còn chứa hai CARD. Các miền đầu cuối N này chịu trách nhiệm truyền tín hiệu xuôi dòng hơn nữa bằng cách liên kết với miền CARD của protein báo hiệu kháng vi-rút ty thể (MAVS). Miền đầu C của RIG-I đóng vai trò là miền ức chế, giữ cho protein ở trạng thái không hoạt động cho đến khi nó liên kết với RNA và tạo ra những thay đổi về hình dạng [81].
Sau khi gắn các loại RNA tế bào khác nhau, cả MDA5 và RIG-I đều có mặt khắp nơi được liên kết K63-, cả bằng cách gắn cộng hóa trị và không cộng hóa trị [82]. RIG-I, protein chứa mô-đun ba bên 25 (TRIM25) [82] hoặc Riplet [83,84] có thể hoạt động như các dây chằng E3 ubiquitin. Quá trình này cho phép RIG-I đồng hình hóa [85] và định vị thành MAVS ở màng ngoài ty thể bắt đầu quá trình oligome hóa của nó [86]. Sự đa dạng hóa này của MAVS dẫn đến việc kích hoạt nó và cho phép tuyển dụng các protein bộ điều hợp xuôi dòng bổ sung TRAF2, TRAF6 và TRADD [87,88]. Sau đó, TRAF3 [89] và TANK [90] được tuyển dụng để tạo điều kiện kích hoạt TBK1 và IKKε, sau đó phosphoryl hóa các yếu tố phiên mã IRF3 và IRF7. Kích hoạt hai yếu tố đó cho phép đồng hóa và chuyển vị trí của chúng vào nhân nơi chúng bắt đầu phiên mã IFN loại I và loại III [91–94]. LGP2 không chứa miền CARD và do đó được đề xuất không hoạt động trong tín hiệu, mà là bộ điều chỉnh chức năng RIG-I hoặc MDA5 [95].
1.3. Cảm ứng phản ứng interferon loại I bằng TLR liên kết màng
Trong khi hầu hết các thành viên của họ TLR của TLR có thể kích hoạt tầng tín hiệu NF-κB bởi MyD88, IFN loại I được tạo ra bởi TLR thông qua kích hoạt TRIF [96]. Trong số các TLR đó, TLR4 đã được chứng minh là chất cảm ứng quan trọng nhất của IFN loại I. Việc nhận ra LPS, hoặc một số protein của virus, dẫn đến việc kích hoạt TRIF. TRIF sau đó có thể liên kết trực tiếp với TBK1, tạo ra sự kích hoạt và chuyển vị IRF3 vào nhân như mô tả ở trên [97,98]. Hơn nữa, TLR3, cũng phát tín hiệu qua TRIF, TLR7 và TLR9 là những tác nhân gây ra phản ứng IFN [98]. TLR7 và TLR9, chủ yếu được thể hiện trong pDC nơi chúng tạo ra biểu thức IFN loại I theo cách phụ thuộc 88-MyD. pDC thể hiện cấu thành IRF7 và người ta đã chứng minh rằng MyD88 có thể tạo phức hợp với IRF7 để kích hoạt hoạt động kích hoạt và phiên mã của nó [99,100]. Để xem xét toàn diện hơn về tín hiệu miễn dịch do TLR gây ra, hãy xem [101,102].
1.4. Cảm ứng phản ứng interferon bởi NLRs
Bên cạnh các TLR gắn màng tế bào và các RLR tế bào học, họ protein thụ thể giống NOD (NLR) là một nhóm PRR tế bào học khác. Ở động vật có vú, tổng cộng 22 NLR ở người đã được mô tả [103]. Các NLR được đặc trưng bởi một mô típ ba bên phổ biến, bao gồm miền liên kết nucleotide trung tâm và miền oligome hóa (NACHT), lặp lại giàu leucine ở đầu C (LRR) và miền hiệu ứng đầu cuối N biến đổi. Theo miền hiệu ứng của chúng, các NLR được phân loại thành các nhóm nhỏ khác nhau: miền kích hoạt và phiên mã CARD (CARD-AD) chứa NLRA, miền ức chế baculovirus của quá trình chết theo chương trình (BIR) mang NLRB, miền kích hoạt và tuyển dụng caspase (CARD) chứa NLRC và pyrin miền (PYD) chứa NLRP [104]. NLRX1 chứa miền đầu cuối N độc đáo, miền này không có điểm tương đồng với miền đầu cuối N của các thành viên họ protein khác. Nó còn độc đáo hơn nữa vì nó chứa trình tự nội địa hóa ty thể (MLS) [105].
NOD1 và NOD2 là những thành viên sáng lập và đặt tên cho họ protein này [106–108]. NOD1 và NOD2 hoạt động như các cảm biến nội bào của các thành phần peptidoglycan (PGN) từ thành tế bào vi khuẩn để bắt đầu phản ứng miễn dịch thích hợp [106,107,109–111]. Tuy nhiên, không phải tất cả các protein của phân họ này đều hoạt động như các PRR thực sự. Điều này được chỉ ra bởi thực tế là không có liên kết phối tử trực tiếp, hoặc thậm chí là chất kích hoạt trực tiếp, đã được phát hiện đối với hầu hết các thành viên của họ protein NLR. Hơn nữa, một số NLR với các chất kích hoạt đã biết, như NLRC4 [112], không liên kết trực tiếp với các chất kích hoạt của chúng, mà cần các protein phụ trợ. Bên cạnh chức năng của NLR là PRR với cảm ứng trực tiếp của các con đường truyền tín hiệu tiền viêm (NOD1, NOD2, protein ức chế quá trình chết theo chương trình của gia đình NLR NAIP), một số NLR tạo thành một phức hợp đa protein chuyên biệt, gây sốt.
Sự hình thành hồng cầu có điểm chung, với protein đốm liên quan đến apoptosis (ASC), được tuyển dụng bởi PYD của NLR đã kích hoạt. Do đó, một nền tảng tín hiệu đa protein có tổ chức cao được xây dựng, trong đó pro-caspase-1 được tuyển dụng, dẫn đến sự trưởng thành của pro-IL-1 và pro-IL-18 [113]. Các chức năng không phải PRR cũng đã được mô tả cho hai protein NLR khác, đó là chất chuyển hóa MHC lớp II (CIITA) và NLRC5, là các chất điều hòa phiên mã, đã được mô tả để đưa vào nhân, nơi chúng có thể tương tác với phức hợp phiên mã đa protein, được gọi là thể tăng cường MHC, để tạo ra sự phiên mã của các gen MHC lớp II và MHC lớp I, tương ứng [114–117]. Chuyển vị hạt nhân và quy định phiên mã trực tiếp đã được mô tả thêm cho NLRP3 [118] và NOD2 [119]. Một số NLR khác gần đây đã được mô tả là bộ điều biến các phản ứng miễn dịch bẩm sinh. Để biết chi tiết về các chức năng của protein NLR, người đọc có thể tham khảo các bài báo đánh giá gần đây [120–122]. Tuy nhiên, cho đến nay, vẫn còn một số protein NLR có chức năng chưa được nghiên cứu.
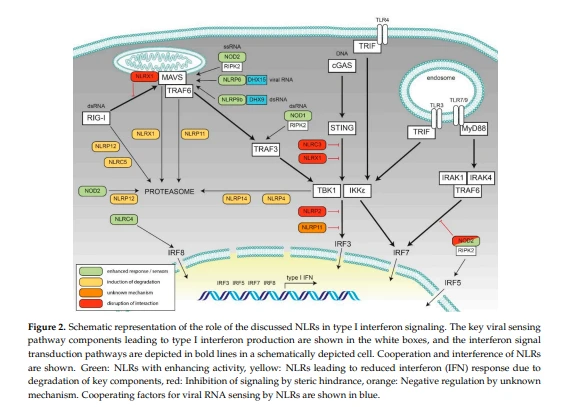
Trong các phần tiếp theo, chúng tôi cung cấp tổng quan về hiểu biết hiện tại của chúng tôi về các chức năng của NLR trong các phản hồi IFN. Để biết tóm tắt, xem Bảng 1 và Hình 2.

2. Phản hồi quy định tiêu cực về phản ứng interferon loại I của NLR
2.1. NLRX1
NLRX1 đã được liên kết với các đường dẫn tín hiệu đa dạng. Nó làm giảm kích hoạt NF-κB khi kích hoạt TLR [138,139,176] và có thể tăng cường sản xuất ROS, do đó tăng cường con đường JNK [177–180]. Hơn nữa, NLRX1 cũng thúc đẩy quá trình autophagy thông qua liên kết với yếu tố kéo dài dịch mã Tu (TUFM) [140] và tăng cường nồng độ protein IRF1 khi nhiễm vi-rút bằng cách làm giảm sự ức chế dịch mã mRNA của protein kinase R (PKR) [181]. NLRX1 cũng có liên quan đến việc gây ra quá trình chết theo chương trình [182] và quy định về thể gây sốt NLRP3 [183,184].
Bên cạnh các chức năng đó, NLRX1 là một trong những NLR được mô tả tốt nhất điều chỉnh các phản hồi IFN loại I. NLRX1 dường như không phải là cảm biến nhiễm vi-rút hoặc vi khuẩn, mà là chất điều chỉnh tiêu cực của IFN loại I [105,138]. Chức năng bất thường của nó được nhấn mạnh bởi thực tế là nó chứa MLS trong đầu N của nó [105,178,185]. Mặc dù, việc định vị chính xác tại ty thể vẫn còn là một vấn đề tranh luận, vì cả quá trình định vị vào ma trận ty thể và màng ngoài ty thể [105] đã được báo cáo.
Thông qua tương tác với MAVS, NLRX1 điều chỉnh tiêu cực cảm ứng IFN phụ thuộc vào RIG-I-MAVS bằng cách phá vỡ sự tương tác của MAVS và RIG-I [105,138]. Do đó, sự biểu hiện quá mức của NLRX1 dẫn đến tín hiệu kháng vi-rút phụ thuộc vào RIG-I bị suy yếu và do đó tăng cường sự nhân lên của vi-rút [141,142]. NLRX1 có thể nhắm mục tiêu MAVS cho sự xuống cấp proteasomal thông qua tuyển dụng protein liên kết poly (rC) 2 (PCBP2) được tuyển dụng bởi miền NACHT của NLRX1 [142]. Việc làm im lặng NLRX1 trong các pDC, trong đó NLRX1 được biểu hiện một cách cấu thành và trong các DC có nguồn gốc từ tế bào đơn nhân (moDC), trong đó các mức cơ bản của NLRX1 được tăng lên trong quá trình biệt hóa, cũng dẫn đến mức IFN loại I do RLR gây ra cao hơn [143], hỗ trợ một quy định tiêu cực của tín hiệu do RIG-I gây ra.
Việc loại bỏ NLRX1 dẫn đến tăng mức độ phiên mã của IFNb1, STAT2 và gen 20 -50 -oligoadenylate synthetase 1 (OAS1) sau khi nhiễm vi-rút, cho thấy vai trò điều hòa tiêu cực của NLRX1 trên trục IFN-/STAT2/OAS1 [138] . Theo đó, nhiễm vi-rút gây ra biểu hiện cao hơn của IFNa2, IFNb1, OAS1 và STAT2 ở chuột Nlrx1 - / - khi so sánh với chuột hoang dã. Tuy nhiên, phản ứng kháng vi-rút tăng cao như vậy làm giảm khả năng chịu đựng của mô đối với tổn thương phổi [138]. Mặt khác, yếu tố liên quan đến Fas 1 (FAF1) được xác định là chất ức chế NLRX1-giảm biểu hiện IFN loại I qua trung gian. FAF1 cạnh tranh với MAVS để liên kết với NLRX1 và do đó điều chỉnh tích cực sự bài tiết IFN loại I do vi rút gây ra. Người ta đề xuất rằng khi liên kết FAF1, NLRX1 tách khỏi MAVS, sau đó có thể tương tác với RIG-I và tăng cường cảm ứng IFN loại I [144]. Một cơ chế khác mà qua đó NLRX1 có thể ức chế việc tạo ra IFN loại I là bằng cách liên kết với STING. Sự tương tác này được tăng cường khi nhiễm virus và tách TBK1 khỏi phức hợp protein [145]. Hơn nữa, NLRX1 có liên quan đến quy định về bệnh tự kỷ. Tương tác của TUFM ty thể với NLRX1 đã được đề xuất để tăng cường khả năng tự thực và do đó ức chế tín hiệu IFN loại I [140].
Cần lưu ý rằng tác dụng ức chế của NLRX1 đối với cảm ứng IFN loại I phụ thuộc vào MAVS có phần gây tranh cãi, vì một số nhóm không thể xác nhận các hiệu ứng được mô tả ở trên [146–148]. Như đã chỉ ra rằng NLRX1 ảnh hưởng khác nhau đến các phản ứng qua trung gian IRF3- và IRF1-, điều này có thể giải thích, ít nhất là một phần, những phát hiện mâu thuẫn này [181].
2.2. NLRC3
NLRC3 có thể điều chỉnh một cách tiêu cực một số đường dẫn tín hiệu như NF-κB [186,187], mTOR [188], cũng như quá trình lắp ráp và hoạt động của dòng chữ NLRP3 [189]. Nó tiếp tục được chứng minh là làm giảm các phản ứng của tế bào T cộng với CD4 tự miễn dịch và đặc hiệu với vi-rút bằng cách ức chế sản xuất TNF và IFN- [187,190] và bằng cách đó làm giảm sự tăng sinh của các tế bào Th1 và Th17 [187].
NLRC3 cũng hạn chế sản xuất IFN loại I để đáp ứng với DNA tế bào, di-GMP tuần hoàn (c-di-GMP) và nhiễm HSV1 bằng cách cản trở trực tiếp sự tương tác giữa STING và TBK1 [149]. Về mặt cơ chế, NLRC3 ngăn chặn việc buôn bán STING từ ER đến vị trí quanh nhân/golgi và puncta liên quan đến nội chất sau khi cảm biến DNA [149]. Quy định tiêu cực này của STING bởi NLRC3 ngăn cản quá trình phosphoryl hóa IRF3 phụ thuộc TBK1-thông qua liên kết của nó với IQGAP1 giống như protein kích hoạt Ras GTPase [191]. Sự thiếu hụt NLRC3 trong BMDM và MEF ở chuột dẫn đến việc sản xuất DNA và HSV1-loại I IFN, IL-6 và TNF cao hơn. Do đó, chuột Nlrc3-/− bị nhiễm HSV1 cho thấy tỷ lệ mắc bệnh và tải lượng virus giảm [149]. NLRC3 cũng có thể đóng một vai trò trong phản ứng IFN do RIG-I gây ra [192], tuy nhiên, tác động chủ yếu là trên con đường do cGAS gây ra [149].
Quy định tiêu cực về tín hiệu TLR của NLRC3 được trung gian bởi sự hình thành phức hợp với TRAF6 và người ta đã đề xuất rằng các phức hợp tế bào của TRAF với NLR điều tiết, được đặt tên là "TRAFasomes", tồn tại hoạt động như các nền tảng điều tiết [186]. Nó vẫn còn được thiết lập nếu một kịch bản như vậy cũng có thể góp phần vào việc điều chỉnh các con đường interferon của NLRC3.
Bên cạnh chức năng là chất điều hòa âm tính, NLRC3 có thể liên kết DNA chuỗi kép của virus bằng LRR của nó với ái lực cao, dẫn đến tăng hoạt động ATPase của NBD lên gấp 10-lần. Sự ràng buộc của ATP làm giảm sự tương tác của NBD với STING, dẫn đến việc kích hoạt con đường IFN loại I [193].
2.3. NLRC5
NLRC5 là một phần của tập hợp NLR riêng biệt có chức năng như bộ điều chỉnh phiên mã của gen MHC lớp I và lớp II [114,151,194]. Cả NLRC5 và CIITA đều liên kết với các mục tiêu phiên mã tương ứng của chúng trong vùng khởi động MHC thông qua phức hợp liên kết DNA đa protein giống nhau [115,117,195,196]. NLRC5 được biểu hiện cấu thành trong một loạt các cơ quan bạch huyết và mô rào cản, chẳng hạn như phổi và đường tiêu hóa, là cửa ngõ cho một số mầm bệnh [114,151,194]. Biểu hiện của NLRC5 và biểu hiện gen MHC lớp I sau đó có thể được tăng cường bằng cách kích thích với IFN- [114,151,194,197].
Trong đặc điểm đầu tiên của NLRC5, người ta đã báo cáo rằng nó ảnh hưởng đến quá trình phiên mã từ các yếu tố báo cáo ISRE và GAS, trong khi sự biểu hiện quá mức của NLRC5 dẫn đến mức IFN-mRNA tăng cao trong các tế bào HeLaS3. Những kết quả đó đã được xác nhận bằng cách loại bỏ qua trung gian siRNA [114] và chúng tôi đã chỉ ra rằng trong các tế bào THP-1 và nguyên bào sợi sơ cấp ở da, việc loại bỏ siRNA của NLRC5 làm giảm cảm ứng IFN- và CXCL10 khi nhiễm SeV [151]. NLRC5 đã được chứng minh là có tác dụng ức chế sự sao chép của vi rút cúm A (IAV) trong dòng tế bào biểu mô phổi A549 và tăng phiên mã RIG-I và IFN loại I [152].
Tương tác giữa NLRC5 và RIG-I đã được xác nhận độc lập bởi Cui et al. Tuy nhiên, các tác giả này đã báo cáo tác động tiêu cực của việc biểu hiện quá mức NLRC5 đối với việc kích hoạt trình báo cáo IFN luciferase loại I bằng poly(I: C) [153]. Trong khi đó, việc loại bỏ NLRC5 trong một số dòng tế bào khác nhau đã được chứng minh là dẫn đến tăng phản ứng IFN- đối với điều trị bằng poly(I: C) hoặc nhiễm VSV [153]. Tuy nhiên, quy định kích hoạt IFN bởi NLRC5 vẫn còn là một vấn đề tranh luận [151]. Đáng chú ý, chuột Nlrc5−/− trong đó exon 4 được nhắm mục tiêu không cho thấy mức huyết thanh IFN- cơ bản cũng như poly(I: C) bị thay đổi so với động vật hoang dã [154]. Điều này trái ngược với các nghiên cứu sử dụng mô hình chuột loại bỏ NLRC5 khác, trong đó exon 8 được nhắm mục tiêu. Kích thích ex vivo với VSV hoặc poly(I: C), cũng như thách thức hệ thống với VSV, dẫn đến mức IFN- cao hơn và sự phosphoryl hóa IRF3 mạnh hơn [155].
Mặc dù vai trò của NLRC5 với tư cách là yếu tố điều hòa chính của quy định gen MHC lớp I đã được thiết lập rõ ràng, nhưng vai trò của NLRC5 trong các phản ứng IFN loại I dường như phụ thuộc nhiều vào loại tế bào và bối cảnh sinh vật [156]. Điều này được minh họa rõ ràng qua quan sát, rằng việc loại bỏ NLRC5 làm tăng phản ứng IFN kháng vi-rút do RIG-I gây ra trong các pDC, trong khi nó không ảnh hưởng đến con đường tương tự trong các moDC. Thật thú vị, hai loại ô này khác nhau về mức độ biểu hiện cơ bản của NLRC5 [143], cho thấy sự đóng góp khác biệt của NLRC5 vào kiểm soát IFN trong các loại ô này. Bên cạnh vai trò của nó trong việc trình bày kháng nguyên, có thể NLRC5 còn có vai trò khác trong khả năng miễn dịch chống vi-rút liên quan đến việc phát hiện vi-rút bẩm sinh bên cạnh vai trò của nó trong việc trình bày kháng nguyên, như đề xuất của một số nghiên cứu đã thảo luận ở trên.
2.4. NLRP2
Ở người, NLRP2 chủ yếu được biểu hiện ở não, tuyến tụy, thận và các mô sinh sản như tinh hoàn và nhau thai [157,198,199]. Trong các tế bào miễn dịch, NLRP2 được điều chỉnh tăng cường trong các đại thực bào để đáp ứng với dAdT tương tự B-DNA, cũng như trong các tế bào T khi kích hoạt RIG-I [198]. Có sự khác biệt tồn tại giữa quần thể tế bào chuột và người. Trái ngược với các tế bào của con người, NLRP2 không được điều hòa trong tế bào CD3 cộng với tế bào T của chuột dựa trên cảm biến RNA và DNA, trong khi ở chuột CD14 cộng với các tế bào myeloid, cảm biến RNA dẫn đến tăng biểu hiện của NLRP2 [198]. Mức protein NLRP2 đã được chứng minh là được điều chỉnh tăng khi xử lý IFN- , IFN- và LPS trong các tế bào THP-1 người biệt hóa giống như đại thực bào, trong khi điều trị CpG không ảnh hưởng đến mức protein NLRP2 [157]. Trong số các cytokine đang điều chỉnh biểu hiện NLRP2, điều trị đồng thời với IFN- và TNF- cho phép kích hoạt hồng cầu không chính tắc bằng LPS nội bào trong tế bào ngoại vi não [158].
Về quy định IFN loại I, NLRP2 có thể liên kết TBK1 dẫn đến tương tác nhiễu loạn với IRF3, dẫn đến giảm sản xuất IFN [159], mặc dù hiện tại đây là một quan sát đơn lẻ.

2.5. NLRP4
NLRP4 chỉ mới được nghiên cứu gần đây. Mặc dù có chứa PYD, NLRP4 không tương tác với protein bộ điều hợp gây sốt ASC [200] và không ảnh hưởng đến bài tiết IL1 [201]. Nó được mô tả để điều chỉnh sự hình thành của các quá trình autophagosome và autophagic [201,202], đồng thời điều chỉnh tiêu cực phản ứng NF-κB [163,203]. Hơn nữa, NLRP4 đã được mô tả là đóng một vai trò trong sự phát triển phôi thai [204]. Nó được biểu hiện trong tế bào trứng người và phôi sớm [205], và bảy bản sao gen của Nlrp4 được biểu hiện trong tế bào trứng chuột [206–208]. Việc loại bỏ Nlrp4e trong tế bào trứng của chuột gây ra sự ngừng phát triển giữa 2- và 8-giai đoạn tế bào [204].
NLRP4 ngăn chặn các phản hồi IFN loại I bằng cách nhắm mục tiêu TBK1 cho sự xuống cấp. Điều này được trung gian bởi việc tuyển dụng E3 ubiquitin ligase 4 (DTX4) đã bị xóa. NLRP4 tương tác với miền kinase của TBK1 được phosphoryl hóa, tạo điều kiện thuận lợi cho quá trình đa bào hóa được liên kết với K48-của TBK1 ở dư lượng lysine 670 bởi DTX4 [164]. Sự xuống cấp này có thể được trung gian bởi một phức hợp nhiễm sắc thể tín hiệu bao gồm NLRP4, peptidase 38 đặc hiệu ubiquitin 38 (USP38), DTX4, protein tương tác TRAF (TRIP) và có khả năng một số phosphatase vẫn được xác định. Khi bị nhiễm vi-rút, TBK1 được kích hoạt, dẫn đến sự phổ biến ở khắp mọi nơi được liên kết với K63- và K33-của nó. Sự hình thành của phức hợp này dẫn đến việc chỉnh sửa K33-phổ biến được liên kết ở dư lượng lysine 670 tại TBK1 và thay thế nó bằng K48-đa phổ được liên kết [165].
Tuy nhiên, đây có thể không phải là con đường duy nhất vì quá trình phosphoryl hóa tyrosine đặc hiệu kép được điều hòa bởi kinase 2 (DYRK2) được phát hiện góp phần vào sự xuống cấp của TBK1 qua trung gian NLRP4- [166]. DYRK2 phosphoryl hóa TBK1 trên dư lượng serine 527, điều cần thiết cho việc tuyển dụng NLRP4 và tăng cường sự tương tác của hai protein. Điều này thúc đẩy quá trình đa bào được liên kết K48-của TBK1. Các tác giả đề xuất rằng DYRK2 tăng cường sự xuống cấp của TBK1 thông qua NLRP4-Mối liên hệ DTX4 [166]. Trong các tế bào cơ tim của chuột, mức TBK1 và IRF3 giảm đã được báo cáo khi biểu hiện quá mức NLRP4 theo cách phụ thuộc vào liều lượng [163].
Chúng ta vẫn biết rất ít về chức năng sinh lý của NLRP4. Sự kết hợp của việc loại bỏ các đồng dạng NLRP4 với khiếm khuyết phát triển trong tế bào trứng có thể là do thiếu khả năng dung nạp đối với DNA của người cha như đã được chỉ ra cho NLRP14 (xem bên dưới). Dữ liệu tích lũy từ các nghiên cứu được tóm tắt ở trên cho thấy rằng một cơ chế chính của NLRP4 là kiểm soát thời gian bán hủy của TBK1 thông qua sự xuống cấp proteasomal.
For more information:1950477648nn@gamil.com